肺炎研究带来根本的突破
饶 饶议科学约 69 分钟
【近二十年,非典和新冠带来的病毒性肺炎,带来对人类生命的严重威胁。
百年前,细菌性肺炎危害人类生命,而且带来的死亡远多于现在。
百年前有多种围绕细菌性肺炎的诊断和治疗的研究,而最后控制细菌性肺炎的最有效方式是抗生素。抗生素研究本身不是围绕肺炎所进行的。
而研究肺炎的致病菌(肺炎球菌),带来的最根本的突破,又不是针对肺炎本身,而是对于生命的本质:遗传信息,DNA。
那是波澜壮阔的科学研究前沿。相比而言, 病毒性肺炎研究,迄今还差很远。】 《生物学概念与途径》第三章 遗传信息的载体: DNA 基础研究通过推进人类认知前沿可能解决人类面临的问题;人类面临的问题通过刺激科学研究可能推进人类认识前沿。遗传的科学问题与肺炎的医疗问题合力揭示了基因的物质基础。
科学前沿可以出现不同研究途径的意外交汇。从生物功能的角度诞生了遗传学: 1866 年 Mendel 开创遗传学, 1880 年德国的 Flemming 发现染色体, 1902 年德国的 Boveri 获证据支持染色体为遗传的物质基础, 1910 年后美国的 Morgan 及其学生丰富和发展了染色体的遗传学说。从化学成分的角度出现了生物化学: 1869 年,瑞士的 Miescher 在研究伤口脓细胞化学成分的过程中发现核素,其后德国的 Kossel 发现了核酸中的嘌呤和嘧啶,二十世纪初美国的 Levene 确定以核苷酸连接为基础的核酸一级结构,瑞典的 Caspersson 等证明染色体含核酸和蛋白质。
但是,当时研究 DNA 生物化学和生物物理的专家以为 DNA 无特异性、缺乏信息携带能力。
1928 年,研究肺炎致病性细菌的过程中,英国的 Griffith 分析不同类型病例分布后推测不同型的肺炎球菌可能会变化,之后设计实验发现了转化现象。 1944 年,美国洛克菲勒医学研究所的 Avery 、 MacLeod 和 McCarty 研究转化的物质基础,提出脱氧核糖核酸( DNA )是改变细菌可遗传特性的转化因子。其后验证 DNA 的转化活性、证明 DNA 有特异性、发现转化活性不局限于特定细菌的特定性状。
DNA 是遗传的物质基础这一概念,刺激了进 ⼀ 步研究。其中最重要的工作是,在 Franklin 和 Wilkins 对 DNA 进 ⾏ X 线衍射实验的基础上, Watson 和 Crick 于 1953 年提出了 DNA 双螺旋结构模型,标志着遗传学和生物化学共同催生出 分子生物学。 3.1 核酸及其化学结构 3-1-1 核酸的发现
1868 年春,米歇尔毕业于巴塞尔医学院后,因不感兴趣行医、自己听觉有问题、而舅舅认为“组织发育的剩余问题只能依据化学基础来解决”( Dahm , 2005 , 2008 ),米歇尔到德国图宾根接受科学训练。他在有机化学实验室工作一学期后转入 Felix Hoppe-Seyler ( 1825-1895 )实验室。
Hoppe-Seyler 乃时称“生理化学”(后称生物化学)的先驱,他发现血红蛋白的可逆性氧化、并命名( hemoglobin ),他命名蛋白质为 proteid (后称 protein )。 Hoppe-Seyler 建议米歇尔研究淋巴细胞的化学成分,米歇尔因难以从淋巴结获足够量的纯化淋巴细胞,转而研究可大量获得的白细胞,其来源为外科诊所绷带上的脓。
1869 年,米歇尔离开图宾根 Hoppe-Seyler 的实验室到莱比锡,在那里写好论文于当年投稿给 Hoppe-Seyler 主编的杂志。 Hoppe-Seyler 以前的学生 Otto Liebreich 于 1865 年曾经发表过一篇文章,号称从脑中分离到新的物质 protagon ,一度得到 Hoppe-Seyler 的支持,结果是错的。 Hoppe-Seyler 因此担心再有学生发现新物质是乌龙事件。直到自己、两位学生( Pál Plósz , 1844-1902 和 Nikolai Nikolaevich Lubavin )重复米歇尔的实验后, Hoppe-Seyler 才于 1871 年在其主编的医学化学杂志同时发表五篇核素的文章,首先是米歇尔的“脓细胞的化学组成”( Miescher , 1871a ; Dahm , 2008 );其次是 Plósz 验证核素只存在于(鸡和蛇的)有核红细胞、而不存在于(牛的)无核红细胞( Plósz , 1871 );第三篇为 Lubavin 在奶酪中发现核素( Lubavin , 1871 );第四篇为 Hoppe-Seyler 完全肯定米歇尔的工作,并验证核素的磷含量高( Hoppe-Seyler , 1871 );第五篇为 Miescher 后投稿的一篇报道他在蛋黄中发现核素( Miescher , 1871b )。虽然这些文章相当稳固地验证了 Miescher 的发现,曾有几十年还继续争论 Miescher 发现是是否真的新物质( Lamm, Harman and Veigl , 2020 )。
德国科学家 Richard Altmann ( 1852-1900 )改进了核酸制备方法,产物无蛋白质,于 1889 年提出核酸的名词( Altmann , 1889 ),米歇尔认为核酸和核素相同,无需改名。
以化学分析为开端的核酸研究,起初不是为了特定生物功能的分子基础。 Hoppe-Seyler 认为发现细胞核的物质很重要,米歇尔认为自己发现的新物质其重要性不亚于蛋白质。米歇尔发现精子中有核素后,提出“如果单个物质可以是受精的特异原因的话,那么无疑首先应该考虑的是核素”。但他又觉得不太可能是一种物质,其原因之一是核素好像不可能有很大的多样性,难以解释个体性状的多样性( Dahm , 2005 )。 3-1-2 核酸的化学分析 1872 年, Hoppe-Seyler 在斯特拉斯堡大学建立了世界第二个生理化学(生物化学)系。
当年, Albrecht Kossel ( 1853-1927 )入斯特拉斯堡大学,听过 Hoppe-Seyler 的生理化学和病理化学课。 1877 年 Kossel 毕业于 Rostock 大学并考完行医执照后,加入 Hoppe-Seyler 的实验室, 1879 年开始发表有关核素的研究( Kossel , 1879 ; Jones , 1953 ), 1883 年到柏林大学工作。
3-1-3 核酸的化学结构
1901 年, Levene 发现不同来源的核酸不是都含 4 种嘌呤、而只含 A 和 G 两种。 1906 年, Steudel 也同意胸腺核酸只含两种嘌呤,且等分子数( equimolecular )。 C 和 T 两种嘧啶不是嘌呤的衍生物而是核酸所含的原始碱基,也是二十世纪初经过争论和实验所验证( Levene and Bass , 1931 )。 1903 年, Levene 发现酵母核酸含 U 不含 T 。 1909 年, Levene 认为酵母核酸含两种嘌呤、两种嘧啶。
1914 年,德国的 Robert Feulgen ( 1884-1955 )发现 DNA 在溶液中通过盐酸(暴露出 DNA 的醛基)和 Schiff 试剂(品红亚硫酸,可与醛基反应)两步可显紫红色, RNA 不能显色,后称 Feulgen 反应( Kasten , 2003 )。 瑞典卡罗琳斯卡医学院的
Torbjörn Caspersson
(
1910-1997
)发现核酸对
260nm
紫外线有最佳吸收峰(
Casperson
,
1932
,
1936
)。
Morgan
最后的研究生
Jack Schultz
(
1904-1971
)与
Caspersson
用紫外检测证实
DNA
定位于细胞核(
Schultz and Caspersson
,
1940
)。
3-2-2
核酸与染色质
Schultz and Caspersson 还观察到果蝇唾液腺多线染色体条带变化后核酸含量变化、果蝇卵母细胞染色体数量变化可以改变核酸含量( Caspersson and Schultz , 1938 )。
Caspersson 与同事 Einar Hammarsten ( 1889-1958 )合作分析染色体的核酸和蛋白质组分,用蛋白酶消化蛋白质后得到高纯度的核酸( Caspersson , Hammarsten and Hammarsten , 1935 )。他们观察到果蝇多线型染色体条带与核酸的关系非常逼近核酸与遗传的关系。
Hammarsten 和 Caspersson 发现 DNA 不是短链、而是长链,分子量很大( 50 万到 100 万),所含嘌呤环和嘧啶环的平面与链的长轴垂直( Signer, Caspersson, Hammarsten , 1938 )。
英国 Leeds 大学纺织物理实验室的 William Astbury ( 1898-1961 )和研究生 Florence Bell ( 1913-2000 )通过 X 线衍射分析发现垂直于长轴的两个核苷酸之间距离为 3.34 Å ( Astbury and Bell , 1938a ),他们还提出了第一个核酸结构的模型( Astbury and Bell , 1938b )。
至 1940 年代初期,确切知道 DNA 存在于细胞核的染色体上。不过,染色体上即能检测到 DNA 、也能检测到染色体上的 RNA 和蛋白质,并不能仅仅由亚细胞定位确定 DNA 是遗传物质。 3-3 遗传物质是蛋白质还是核酸? 染色体既含核酸、也含蛋白质,携带遗传信息的分子究竟是什么 ?
二十世纪上半叶,已知蛋白质很重要。十九世纪提出酶为生物催化剂的概念,到二十世纪初争论酶是蛋白质还是其他分子。因研究叶绿体而获 1915 年诺贝尔化学奖的德国犹太科学家 Richard Willstätter ( 1872-1942 )认为酶是蛋白质制备中的其他污染物质。其他科学家的工作,特别是 1926 年美国 Cornell 大学的 James Sumner ( 1887-1955 )和 1930 年洛克菲勒医学研究所的 John Northrop ( 1891-1987 )分别获得结晶纯的尿素酶和胃蛋白酶,证明酶的分子本质是蛋白质。在这样的背景下,已知染色体有蛋白质和核酸时,很多人怕再次犯低估蛋白质重要性的错误( Judson , 1979 )。
对细胞核的核酸与蛋白质都有研究的 Kossel 于 1910 年因为其蛋白质部分的工作而获奖,他于 1912 年发表的文章称要从蛋白质的化学特性理解发生细胞传递种系特异性( Kossel , 1912 )。核酸专家 Walter Jones 称“生理化学家公认所有核酸与酵母和胸腺核酸之一相同”( Jones, 1914 )。 Levene 认为所有种属器官、组织来源的核酸结构不变,没有个性,没有特异性,不可能是孟德尔性状的携带者( Levene, 1917b )。细胞生物学家 Edmund Wilson 在其权威教科书认为遗传物质是蛋白质不是核酸( Wilson, 1925 )。四核苷酸假说到 1931 年比较强调四种核苷酸等分子数( Levene and Bass, 1931 ),在 Signer, Caspersson and Hammarsten ( 1938 )确定 DNA 分子量很大、是很长的链以后,仍未及时改变核酸像淀粉一样不太可能携带信息的错误观念。 用染色确定 DNA 存在于细胞核中的 Caspersson 、 Hammarsten 、 Brachet 皆未提出核酸是遗传的物质基础。 Caspersson 认为染色体中的蛋白质可能是遗传物质( Caspersson , 1936 )。
Jack Schultz 试图区分蛋白质和核酸哪一个携带遗传信息。 1941 年 Schultz 认为按遗传学预计的基因应该是线性、有特异性、存在于染色体上、能自我复制、能影响细胞的合成代谢,而核酸与蛋白的复合体( nucleoprotein )符合这些条件、应该是基因的物质基础( Schultz , 1941 )。他在分别讨论染色体的核酸和蛋白质时,认为蛋白质确实有特异性,而核酸是否有特异性尚不清楚:虽然一般以为核酸单调,他指出当时分析过结构的核酸只有来源于胸腺的,不能排除不同细胞的核酸有特异性的可能性。 1943 年,他指出病毒肯定有基因,从病毒、细菌到高等动植物都有核酸和蛋白质复合体,而它们都能复制,所以细菌是否有细胞核并不重要,有核酸和蛋白质复合体为基础的基因。他依据已知三种含氨基酸不同的烟草镶嵌病毒( TMV )所含核酸在当时检测显示很恒定,提出应该是蛋白质给予病毒特异性、而核酸不能( Schultz , 1943 )。最接近提出核酸是遗传物质基础的 Schultz 因当时检测手段的限制退而认为蛋白质是遗传物质。 3-4 肺炎球菌的分型和分类
细菌性肺炎长期困扰人类,肺炎可以通过空气传染,其流行为国家所关注。在抗生素应用以前常导致死亡,二十世纪初美国每年因肺炎去世逾 5 万人。即使现在全世界每年也有上亿肺炎患者,肺炎是疾病导致儿童死亡的最大原因,每年近百万 5 岁以下儿童死于肺炎( Henriques-Normark and Tuomanen, 2013 )。 1918 年,著名内科医生 William Osler ( 1849-1919 )称肺炎为“人类死亡的罪魁祸首”。
1881 年,美国细菌学家 George Sternberg ( 1838-1915 )和法国细菌学家巴斯德分别发现肺炎球菌( Streptococcus pneumoniae )( Sternberg, 1881; Pasteur, 1881 )。 1884 年,德国的犹太医生 Albert Fränkel ( 1864-1938 )证明肺炎球菌为大叶性肺炎的致病菌。
以抗原性( antigenicity )对肺炎球菌进行分型,原因是二十世纪初治疗肺炎是用抗血清(它含抗体,免疫见第七章),而治疗不同抗原性的肺炎球菌需要不同的抗血清,含不同抗原的肺炎球菌与不同的抗体反应。德国细菌学家 Friedrich Neufeld ( 1869-1945 )提出这些抗体既可抑制特定类型的肺炎,又可用来将肺炎球菌分成 I 、 II 、 III 型( Neufeld and Händel, 1909 , 1912 )。
美国洛克菲勒研究所附属医院的 Alphonse Dochez ( 1882-1964 )发现肺炎球菌还有 IV 型,且 IV 型中还有多种( Dochez and Gillespie, 1913 )。 1913 年 Oswald Avery ( 1877-1955 )加入洛克菲勒, 1917 年他与 Dochez 等发现 IV 型更多种类( Avery et al. , 1917 )。 1922 年,英国卫生部病理实验室的 Frederick Griffith ( 1879-1941 )发现 IV 型中至少有 12 种不同的类型( Griffith , 1922 )。 I 型和 II 型常致病强, IV 型致病弱、存在于有些正常人的口中, IV 型内不同株的差异较大、有些也有致病性。一般来说,一种肺炎球菌只含这四型的一种抗原。
不同抗原型的肺炎球菌因何不同? 1917 年, Dochez 和 Avery 报道肺炎球菌的抗原不是肺炎球菌细胞破裂后从细胞内掉到细胞外的物质,而是细菌表面的物质,可溶于培养液和体液( Dochez and Avery , 1917a )。他们曾误认为是蛋白质( Dochez and Avery , 1917b )。这些研究由 Dochez 开始,其后合作,一战以后 Dochez 入伍赴法国( Dubos , 1976 )。 1918 年从美国 Kansas 首先爆发所谓“西班牙”流感带来的全球恐慌(最后估计感染 5 亿人,死亡数千万到一亿), Avery 与洛克菲勒医院都研究流感病毒。
1922 年,几经劝说后,化学家 Michael Heidelberger 加入 Avery 的肺炎研究( Heidelberger , 1977 )。他和 Avery 实验室其他人从 1923 年至 1934 年一系列实验阐明肺炎球菌分型的抗原不是蛋白质、而是多糖( polysaccharide )(如: Heidelberger and Avery, 1923; Avery and Goebel, 1933; Goebel, Avery and Babers, 1934 )。这些抗原为细菌细胞荚膜的完整性所需,也就对肺炎球菌的致病性重要。 Avery 等的研究是免疫化学的重要工作。
Heidelberger 和 Avery 于 1923 年提出多糖、而非蛋白质决定细菌抗原特异性,在当时很不为大家接受,但到 1932 年后几乎每年因此获得诺贝尔奖提名( Reichard, 2002 )。 3-4-2 肺炎球菌类的转换
细菌的类型能否变化? 1880 年,巴斯德发现禽霍乱体外培养后致病性降低。 1887 年,细胞免疫学创始人、俄国的 Ilya Metchnikoff ( 1845-1916 )发现炭疽杆菌在抗血清中培养后致病性降低。 1915 年南非的 AR Friel 发现肺炎球菌在抗血清培养后降低致病性并改变抗原性。 1916 年, Avery 实验室的研究生 Laura Stryker 发现肺炎球菌的致病性经抗血清培养后下降,而进入动物体内可以恢复( Stryker, 1916 )。 1921 年,伦敦 Lister 研究所的 Joseph Arkwright ( 1864-1944 )总结他研究的几种肠道细菌,同一种细菌不仅有致病性不同的类,而且形态不同:致病性强的表面形态光滑( smooth )为 S 类、致病性弱的表面粗糙( rough )为 R 类( Arkwright, 1921 )。 Arkwright 提出这些差别是遗传突变所致, S 和 R 类的存在多寡为达尔文的自然选择所定。
1922 年, Griffith 向英国卫生部报告 1920 年至 1922 年 150 例大叶性肺炎病人中肺炎球菌分型的情况( Griffith , 1922 )。 1923 年, Griffith 向卫生部报告,致病的表面光滑( S 类)与不致病的表面粗糙( R 类)有不同抗原性,可以分别有抗 S 的抗血清和抗 R 的抗血清。在体外培养肺炎球菌时如有抗血清,肺炎球菌的致病性和形态会改变,从 S 类变成 R 类,还观察到 R 类变成 S 类( Griffith, 1923 )。
1925 年,洛克菲勒的 Hobart Reimann ( 1897-1986 )验证在血清或胆盐、甚至一般培养基中培养 I 型 S 类的肺炎球菌后,致病的 S 类细菌有些变成 R 类,失去致病性、改变形态和抗原性,但在他的实验中 R 类无论在体外还是动物体内都不能变成 S 类( Reimann , 1925 )。霍普金斯大学的 Harold Amoss ( 1886-1956 )也验证了 Griffith 的结果:致病类的 I 型肺炎球菌,可以在体外培养变成不致病类;但 Amoss 未观察到不致病类回复为致病类( Amoss , 1925 )。因为 Reimann ( 1925 )、 Amoss ( 1925 )用了分离的单菌落做实验,较 Stryker ( 1916 )和 Griffith ( 1923 )更有说服力,证明单个 S 类的菌变成 R 菌、而不是最初 S 类菌落中混有 R 菌个体。 Reimann 还发现有些型的肺炎球菌也可以在动物(如兔、豚鼠、马,但非狗)体内从 S 类变成 R 类( Reimann , 1927 )。 3-5 肺炎球菌型间转化实验 1928 年, Griffith 在《卫生学杂志》上发表细菌转化的论文( Griffith, 1928 )。首先,他分析了 1920 年至 1927 年的流行病资料,发现如果将病例分成三个时间段( 1920 至 1922 、 1922 至 1924 、 1924 至 1927 ),那么随着时间推移,感染 I 型和 III 型的人数无规则性变化,但 II 型的减少(从 32.6% 变为 7.4% )、 IV 型的增多( 30.0% 变为 53.7% )。
Griffith 从 1922 年一位含多型肺炎球菌之病人的痰中获得 I 型肺炎球菌,接种老鼠可以致病,从老鼠中获得肺炎球菌再接种下一群老鼠,这样系列传代( serial passage ),发现后来可以出现 IV 型的肺炎球菌,从而显示 I 型可以变成 IV 型。他再从多位病人获得 I 型肺炎球菌、在老鼠接种验证可以变成 IV 和 III 型,从多位病人获得 II 型肺炎球菌、在老鼠可以变成 III 型。
Griffith 认为已有证据还不足以区分型变与多重感染两种假说,需要继续实验。
他发现,一般来说无论肺炎球菌依据抗原分型是哪种( I 、 II 、 III 或 IV ),都有致病的 S 类和不致病 R 类。无论哪种抗原分型,其致病的 S 类如果在老鼠传代接种,都可变成不致病的 R 类。也有两种方式可在体外培养让 S 类变成 R 类:一种是将某型的 S 类细菌(如 I 型的 S 类)在相应的抗血清中培养(如含 I 型抗血清),其后可获同型的非致病菌(如 I 型的 R 类);另一方式是不加抗血清,在固体培养基中培养,传多代后也能从 S 类获 R 类。不过每次的菌株变化的情况不同、传代后的菌株稳定性也不同,有些变成 R 类后可以很快回复为 S 类,有些变成 R 类后很稳定、难以回复为 S 类。回复变化只能在同一抗原分型之内,如: I 型的 R 类可以变成 I 型的 S 类,而 I 型的 R 类不变成 II 型的 S 类。保存在冰箱但未被允许生长分裂的肺炎球菌不出现 R 类和 S 类之间的变化。
Griffith 用加热的 I 型 S 类菌与 II 型的 R 类菌共同注射老鼠时,可以致病,不过加热时的温度需要注意, 60 ° C 可以、而 100 °C 会灭活 I 型 S 类菌的转化活性。所以,在一定条件下不同抗原型的肺炎球菌,在加热失去致病性后,仍可将另一抗原型中无致病性的 R 类细菌转化为可致病的 S 类细菌。如果两类型都加热了,同时注射无致病性。 Griffith 用 60°C 和 100 °C 加热处理过其他型的 S 类肺炎球菌,然后检测其结果。他发现多数型的 S 类都能转变其他型的 R 类(如加热的 I 型 S 类变 II 型 R 类为 I 型 S 类、加热的 II 型 S 类变 I 型 R 类为 II 型 S 类、加热的 III 型 S 类变 I 型 R 类为 III 型 S 类、加热的 I 型 S 类变 IV 型的 R 类为 I 型 S 类),少数转化不行(如 IV 型的 S 不能变 I 型的 R 为 IV 型的 S ,但能促进 I 型的 R 回复为 I 型的 S )。一型的 R 类加热后不能转化另一型的 R 类、也不能促进另一型的 R 类回复为 S 类。
Griffith 提出了转化的机理: S 类的菌含 S 物质, S 物质是蛋白质,它帮助制造细菌荚膜有抗原性的多糖。他当时认为, I 型的肺炎球菌同时有 I 型和 II 型的 S 抗原,只是 I 型的细菌含 I 型的 S 抗原多于 II 型的 S 抗原,而 R 类的 I 型细菌其 S 抗原大多数变成了 R 结构。在加热后的 I 型 S 类细菌提供 S 物质的情况下, II 型 R 细菌获得 I 型的 S 抗原、获得致病性。也可因加热的 I 型 S 类菌含少量 II 型的 S 抗原,后者转 II 型 R 类菌 荚膜 导致 II 型 R 类菌回复为 II 型 S 类菌。
Griffith 的解释是从细菌抗原和致病性的角度,没有考虑遗传突变、回复突变和基因转导。但他一步一步从病例观察到提出和证明细菌转化,做出了关键的贡献。可惜, 1941 年 Griffith 和同事一道逝于德国飞机轰炸。 3-6 Avery 实验室的主线:诊断、治疗和预防 Avery 实验室主要研究目的是在理解肺炎球菌的基础上,帮助诊断、治疗和预防细菌性肺炎,这些多数达到了、但时间不同,有些在几十年后他的学生的学生做到。
在理论方面, 1916 年 Dochez 和 Avery 提出“抗生长免疫”的概念,认为抗体抑制肺炎球菌细胞内的酶活性,从而抑制代谢( Dochez and Avery , 1916 )。此理论当时就不为洛克菲勒内部其他学者(包括院长)所认同。一般认为抗血清导致细胞凝集后继发细菌生长减慢、代谢降低。 Avery 这次错误使他以后特别谨慎。
在诊断方面, Avery 实验室从 1923 至 1934 年阐明细胞荚膜多糖抗原后,用细胞荚膜多糖抗原分型仍为今天追踪肺炎球菌的方法,到 2013 年知道有 93 型( Henriques-Normark and Tuomanen , 2013 ),所以 Avery 的研究对诊断有帮助。
在预防方面, 1914 年 Wright 等就曾为南非矿工制造疫苗以预防肺炎 (Wright et al. , 1914) 。 Avery 的学生 Colin MacLeod 有独立实验室后于 1945 年制造了有效的针对多糖的治疗性抗血清( MacLeod et al. , 1945 )。不巧正好抗生素被迅速推广,而青霉素成为治疗肺炎的标准药物,多糖的抗血清未得应用,而且很多人以为无需疫苗预防。但是, 1964 年 MacLeod 的学生 Robert Austrian ( 1916-2007 )发现细菌性肺炎仍有很高致死率( Austrian and Gold , 1964 ),重新提出研发和使用疫苗的必要性。 Austrian 再度依据多糖抗原发明了多效价疫苗,成功地预防儿童肺炎( Austrian et al. , 1976 ),这一方法也是迄今肺炎疫苗的主流,所以在预防方面 Avery 本人播种而结果于他去世二十多年后他的学生的学生。
Avery 实验室有心栽花是诊断、治疗、预防,有些开了、有些没开、有些很晚开了。 3-7 Avery 实验室的支流:转化和遗传 Avery 实验室做转化实验初为无心插柳,最后成荫、成林 … 到今天是漫山遍野的万紫千红。
细菌转化实验是 Avery 实验室的支流。发现了现象最初不知其意义多大,断断续续地追踪,但最后意义远超出细菌性肺炎一种传染病,而是整个生物学的革命,也改观了传染病和非传染病的诊断、治疗和预防。
1916 年, Avery 实验室的 Stryker 就知道致病性和非致病性肺炎球菌的变化( Stryker , 1916 )。
1923 年 Griffith 第一次初步报道致病性和非致病性的肺炎球菌是 S 和 R 类后, 洛克菲勒医院的 Reimann 于 1925 和 1927 年重复了 Griffith 的研究结果( Reimann , 1925 , 1927 )。
1928 年 Griffith 经典的转化实验发表前,德国柏林细菌研究所的 Neufeld 访问 Griffith 实验室得知其结果并进行了重复( Downie , 1972 ),同年 Neufeld 发表验证文章( Neufeld and Levinthal, 1928 )。 1927 年 10 月离开纽约到洛克菲勒基金会支持的北平协和医学院内科任副教授的 Reimann ,很快在北京继续肺炎研究, 1928 年 10 月提交的文章于 1929 年发表( Reimann , 1929 ):他验证了 Griffith 的结果,而且用 Reimann 于 1925 年发现的不能自身在体外或体内变成 S 类的 I 型 R 类细菌,用 Griffith 的方法可以被转化为 S 类细菌,其抗原型取决于用来做转化的加热处理过的 S 类细菌的抗原型( I 、 II 、 III )。
Griffith 文章发表后, Avery 对其有怀疑。那几年他自己的注意力集中于寻找降解荚膜多糖的分子。
Avery 实验室从英属加拿大区来的博士后 MH Dawson (1896-1945) 相信英国人 Griffith 的结果( Dubos , 1976 ),并在体内重复验证( Dawson , 1928 , 1930 ),但他试图在体外做转化实验未成功( Dawson , 1930 )。 1930 年 Dawson 搬到哥伦比亚大学有独立实验室后,与协和医学院赴美国进修的谢和平( 1895-1970 )在体外细胞培养的条件下进行转化实验,他们发现加热后的一型 S 类的细菌能在体外共培养时转化另一型 R 类细菌( Dawson and Sia , 1931 ; Sia and Dawson , 1931 )。但 Sia 与 Dawson 用肺炎球菌的提取物未能做成转化( Sia and Dawson , 1931 )。已知用来分型的抗原为多糖,而 R 类也有多糖的缺陷(才造成细胞荚膜缺陷),但把 S 类的多糖加到 R 类的细菌却不能将 R 类变成 S 类,所以转化物质不是多糖( Sia and Dawson , 1931 )。
Alloway 于 1932 年离开 Avery 实验室后, Edward Rogers 从 1932 到 1934 继续其研究。 1934 年,加拿大的 Colin MacLeod ( 1909-1972 )到美国加入 Avery ,他们继续试图从 S 类细菌的提取物中获得转化 R 类细菌活性物质。 Avery 自己也做一些实验( Dubos , 1976 )。
Avery 患 Graves 病引起甲状腺亢进, 1934 年做甲状腺切除术后短时休息, 1935 年 Avery 参与过转化实验。 1940 年 10 月 MacLeod 和 Avery 两人合作做提取转化因子的实验( McCarty , 1985 )。以前每次用几升细菌做提取的起始,现在他们用 36 升。为了离心这么多有致病性的细菌,专门请人改装了密闭房间放置离心机。他们于 1941 年 1 月 28 日第一次记录转化活性的粗提物中有少量 DNA (用二苯胺检测),而不仅有大量的 RNA 。 3 月 11 日 Avery 的记录表明,他试图先加热灭活肺炎球菌(这样先灭活了菌中可能降解转化物质的酶),再用脱氧胆酸钠破碎细胞制备提取,以便提高转化物质的产量。但 MacLeod 似乎有不同意见, 3 月 18 日他们两人同时做实验,比较原来方法和 Avery 先加热的方法,觉得先加热有优点,以后都先加热( McCarty , 1985 )。 Avery 给洛克菲勒的年度报告转化活性不为蛋白水解酶所降解、也不为 RNA 酶降解,因此不像是蛋白质或者 RNA 。当时有两个原因导致他们认为转化活性有可能是酯:几种含酯酶的生物制备可以灭活转化活性、能够抑制酯酶活性的氟化物可以抑制那些生物制备对转化活性的灭活作用( Dubos , 1976 ; McCarty , 1985 )。 1941 年 7 月, MacLeod 离开 Avery 实验室到纽约大学任微生物系主任。
摸索不同条件后, McCarty 和 Avery 综合为提取方法:培养细菌离心后置 65 o C 加热,用生理盐水洗(洗掉多糖),用脱氧胆酸处理,用乙醇沉淀获得纤维状物质(包括还存在的多糖、蛋白质和 DNA ),用 Sevag 的氯仿去除蛋白质,加 Dubos 的多糖酶( SIII ),降解多糖,直到用多糖抗体检测不出多糖,再次用 Sevag 方法氯仿去多糖酶(也是蛋白质),最后再用乙醇沉淀,这时被乙醇可以沉淀的多糖已经没有了,只剩 DNA 可以被乙醇沉淀,逐渐加入乙醇导致沉淀的 DNA 形成纤维状物质用搅棒收集。一般他们用 200 升细菌,可以得到 45 毫克的终产物。
1942 年 11 月和 12 月,他们得到的转化物质,元素分析其氮和磷含量都相同于 DNA ,并于 1943 年 2 月和 3 月重复。 1943 年 4 月 Avery 给洛克菲勒科学顾问委员会的报告中写道:转化因子 -- 核酸 — 可比为基因( gene ),它导致合成的终产物多糖为基因产物( gene product ) … 转化一旦发生可以不断传代的事实支持对转化的遗传理解( McCarty, 1985 )。 1942 年 10 月 Avery 到了 65 岁的退休年龄,预计 1943 年 6 月退休搬到田纳西州他弟弟 Roy Avery 附近, 1943 年 5 月, Avery 写信给弟弟说明为什么不马上搬,讲述了转化因子的工作:谁能猜到是 DNA… 是可预计和遗传的变化 — 遗传学家的梦想 … 听起来是病毒,可能是基因 (Dubos, 1976) 。
1943 年 5 月他们继续实验,得到产物的活性很强( 3x10 -9 克有作用)。请物理化学的同事 Theodore Shedlovsky ( 1898-1976 )做电泳实验,他们提取的转化物质只有一条带,且电泳后还有活性,进一步支持提纯的 DNA 分子在起作用。其后, Avery 还不放心,他们专门咨询了几位生化学家,其中一次是 Avery 、 MacLeod 、 McCarty 三人一同到当时还在纽约城外 Princeton 的洛克菲勒研究所分部见蛋白质化学专家、 1946 年诺贝尔化学奖得主 John Northrop ( 1891-1987 )和 Wendell Stanley ( 1904-1971 )。只在德国移民到洛克菲勒工作的蛋白质化学家 Max Bergmann ( 1886-1944 )处得到有用的信息:所谓无论哪里来的 DNA 都一样的说法是胡说,如果它们是大的多聚物,完全可能有无穷的组合,导致化学结构不同而元素组成相同。 McCarty 于 7 月补了实验,证明被转化的细菌中可以提取到转化因子( McCarty , 1985 )。
Avery 在缅因州度假写文章, McCarty 写实验方法, MacLeod 写前期的结果, Avery 提出是否按资历、与课题相关时间排作者顺序也不一定合适,可能按字母顺序, McCarty 说两种方法的结果都是一样的: Avery 、 MacLeod 、 McCarty ,同意。 1943 年 10 月 Avery 向洛克菲勒研究人员宣读研究结果,当时只有鼓掌、无人提问。 11 月 1 日 Avery 把稿件交给洛克菲勒主板的《实验生物学杂志》的主编 Peyton Rous ( 1879-1970 ), Rous 对稿件有修改建议,包括要求删除“核酸的重要性能否与氨基酸链相媲美成为一个问题”。 1944 年 2 月 1 日文章出版。 3-9 转化因子( Transforming Principle ) 1944 年 Avery 、 MacLeod 、 McCarty 共同发表论文( Avery, MacLeod and McCarty , 1944 ),一般认为与 Watson 和 Crick ( 1953 )并列为二十世纪生物学最重要的文章。
Avery-MacLeod-McCarty 开篇高屋建瓴,完全不同于前面一系列限于肺炎球菌的文章,而是将问题提高到遗传的分子机理层面。首先指出很多生物学家试图用化学的方式在高等生物诱导特异、可预见、能够遗传的变化。其次认为微生物中可以实验诱导、重复发生的、可遗传的特殊变化最好的例子是肺炎球菌型的转化实验。其后他们简介 Griffith 的实验结果,以及 Dawson 、 Alloway 等的进一步工作。
Avery-MacLeod-McCarty 的研究目的是找有转化活性的因子( principle ),并初步确定其化学性质、化学分子的类型。达到宏大的目标需要能解决问题的具体方法。用来获得提取物的是 III 型 S 类菌株( A66 ),与被转化的 II 型 R 类有很大的形态和大小差别。用于检测转化活力的细菌,需不易自身转变、而同时对转化活性有反应,这就是 MacLeod 用 II 型 S 传 36 代后获得的 R36A 菌株。他们注意到即使是 R36A 还可衍生不同的菌株,有些可被转化、有些不能,而 R 菌破损释放的酶能降解 S 菌的转化活性,所以需选生长良好的 R 以免检测的不稳定。转化实验用的培养液, MacLeod 用炭可去除不稳定性。以前谢和平与 Dawson 认为血清提供抗 R 的抗体, Avery-MacLeod-McCarty 认为与抗体无关,但仍需血清的某种其他成分,因血清含灭活转化活性的酶,需将血清加热到 60 °C ,灭活此酶。他们采用 Sevag (1934) 发明的方法用氯仿去除蛋白质、接着用乙醇多次沉淀 。 用 Avery 实验室发现的降解多糖的酶去除多糖,再逐滴用乙醇达到临界浓度沉淀活性物质,得到絮状纤维沉淀,用小棒搅出来再溶解。乙醇沉淀 DNA 的方法是 Mirsky 告诉 McCarty ( Mirsky and Pollister, 1942 ; Darnell , 2011 )。
提取的活性物质在生理盐水中很稳定可保存数月、但在水中不稳定, 65 °C 一小时不能灭活 。 用两种检测蛋白质的方法(双缩脲和 Millon 检测)结果显隐性,用 DNA 的检测方法( Dische 氏二苯胺反应)显强阳性, RNA 检测方法( Bial 氏地衣酚反应)显弱阳性,但他们用同样浓度的提取的胸腺 DNA 看到用地衣酚反应也显弱阳性。反复用乙醇和乙醚提取不降低活性,推测活性分子不是脂肪。
他们请同事对四批提取的转化物质进行了元素含量检测,含 C 约 34% 、 H 约 3.8% 、 N 约 15% 、 P 约 9% ,都接近纯化的胸腺 DNA 中元素的含量( 34% 、 3.2% 、 15% 、 9% )。 N/P 比例为 1.58 到 1.75 ,也接近 DNA 预计值 1.69 。
他们从洛克菲勒的酶专家 Northrop 和 Kunitz 获结晶纯的胰蛋白酶、糜蛋白酶和 RNA 酶,它们都不能灭活转化因子,说明转化活性非 RNA 、也非这些蛋白酶能降解的蛋白质。
他们从几种动物组织制备粗提物, a 狗小肠粘膜、 b 兔骨磷酸酶、 c 猪肾磷酸酶、 d 肺炎球菌自溶物、 e 狗和兔血清。在酶活性方面,他们观察到这些粗提物除 d 外都有磷酸酶活性、除 c 外都有甘油三丁酸酯酶活性、除 b 和 c 外都有 DNA 酶活性(检测 DNA 酶活性的 DNA 由洛克菲勒的 Mirsky 提供)。他们发现只有 a 、 d 和 e 能够灭活转化物质,比较磷酸酶、酯酶和 DNA 酶活性的相关性后,这些结果支持 DNA 是转化因子。
他们用不同温度和时间处理狗和兔血清,观察到热灭活 DNA 酶活性负相关于这些制备对转化因子的灭活。而温度灭活血清中甘油三丁酸酯酶的活性与转化活性无关。这些结果也与 DNA 是转化因子相一致。
他们试了一些化合物能否抑制灭活转化因子的酶,发现氟化钠有显著作用,它可以抑制所有已知来源(如肺炎球菌、狗小肠粘膜、胰腺、血清)的 DNA 酶的活性,也抑制这些来源 DNA 酶制备物对转化因子的灭活,进一步支持 DNA 与转移因子的相关性。
转化因子本身对 III 型抗血清无反应,不是 III 型的抗原本身,也就不是荚膜多糖。
他们请生物物理学家 Alexandre Rothen 分析,发现在超速离心中,转化物质显示均质性和非对称性,分子量约 50 万。电泳行为也显示类似核酸的一种分子。 UV 光谱显示吸收峰在 260nm ,也与核酸一致。
转化因子活性很强: 2.25 毫升溶液含 0.003 微克仍有活性,六亿分之一的比浓度。
在讨论中,他们说从 III 型肺炎球菌分离了 DNA 组分可以将 II 型衍生的无荚膜 R 类菌转化为完整荚膜的 III 型菌。肺炎球菌有 RNA 是 1938 年洛克菲勒的 ` 科学家所发现( Thompson and Dubos , 1938 ),而 1944 年前尚无人报道肺炎球菌的 DNA 。他们强调转化因子的化学性质不同于其导致产生的荚膜多糖。他们指出“本文所呈现的资料强烈提示核酸,至少是脱氧类型的,具有转化因子选择性作用所证明的不同特异性”。他们也知道细菌一旦被转化后,获得的性状可以传代,转化带来的变化“可预计、有型的特异性、可遗传”。
对转化的机理, Avery-MacLeod-McCarty 讨论了三种,其中第二种是遗传学家 Theodosius Dobzhansky ( 1900-1975 )提到的转化可能是遗传突变 ( “如果转化被描述为遗传突变 — 很难避免如此描述 — 我们就在面对特别处理导致特异突变的真实例子” ) ( Dobzhansky , 1941 ), Avery-MacLeod-McCarty 认为这是比拟转化因子是基因。
他们承认还可能有其他物质吸附在核酸上起作用。但如果确实能证明就是核酸起转化作用,那么核酸应该具有尚未确定化学基础的生物学特异性。
全文的结论:出示的证据支持脱氧类的核酸是 III 型肺炎球菌转化因子的根本单位( the evidence presented supports the belief that a nucleic acid of the desoxyribose type is the fundamental unit of the transforming principle of Pneumococcus Type III )。
Avery-MacLeod-McCarty ( 1944 )的文章是 1943 年 11 月提交,措辞含蓄可能是因为 Avery 早期错过一次而在提出多糖抗原时也经历过争议有经验。而在 1943 年 5 月 26 日 Avery 在给自己弟弟的信中,他清楚地说明转化是可以遗传、可以预计的变化,可能是基因( Dubos , 1976 )。
1945 年,英国神经药理学家、 1936 年诺贝尔奖得主 Henry Dale ( 1875-1968 )在给 Avery 发英国皇家学会的 Copley 奖时,提到 Avery 发现了基因( Dale , 1946 )。而诺贝尔奖委员会受其研究核酸的成员 Hammarsten 影响直到 1952 年以前都不认同 DNA 是遗传的物质基础( Reichard , 2002 )。
1943 年 Avery 到了强制性退休年龄,但二战期间美国怕出现战时传染病而请微生物学家为国家工作,洛克菲勒医学研究所也给 Avery 荣誉研究员、实际继续主持实验室。终生未娶的 Avery 于 1947 年离开纽约去田纳西州,与任教 Vanderbilt 大学微生物系的弟弟 Roy Avery ( 1885-1971 )比邻而居过退休生活, 1955 年去世。 3-10 对新概念的反应 当时的科学家如何理解 1944 年 Avery 、 MacLeod 、 McCarty 的文章?知道 Avery-MacLeod-McCarty 工作的科学家面临三种很重要的的选择:不理不睬、检测真伪、走下一步。
1949 年, McCarty 应邀到 Johns Hopkins 大学医学院学术演讲,正好安排在一位晕船研究者后,大批听众在听完晕船报告后离开,只有 35 人耐心听 McCarty 讲 DNA 与细菌转化( McCarty, 1985 )。 1950 年,为遗传学五十周年举行纪念的学术活动中, 26 位撰稿人只有一位提到 Avery 的 DNA 工作( Dunn , 1951 ),而这位还是 Avery 的同事 Mirsky ,他并不认为 Avery 的工作证明了遗传物质是 DNA 而非蛋白质。 3-10-1 很难排除 DNA 之外完全无蛋白质
十九世纪核酸的生物化学权威是 Miescher 和 Kossel ,二十世纪 1940 年以前核酸的生化权威是洛克菲勒的 Levene ,而 1940 和 1950 年代核酸生化的权威为 Alfred Mirsky ( 1900-1974 )。 Mirsky 于 1927 年加入洛克菲勒医学研究所前期研究蛋白质(特别是血红蛋白), 1940 年代后主要研究细胞核的核酸和蛋白质。 Levine 和 Mirsky 皆低估核酸的重要性。
Mirsky 和 Pollister 主要依赖不同浓度的 NaCl ,从精子、肝、胰、肾等将细胞核中核酸和蛋白质的复合体(时称“核蛋白” nucleoprotein )与细胞质分开,获纤维状物质( Mirsky and Pollister , 1942 )。他们还能分开复合体的核酸和蛋白。 Mirsky 改进方法后不仅可从动植物等真核细胞获得细胞核的核蛋白,且可从原核生物(细菌)中提取核蛋白。他们提出所有细胞都有 DNA 和组蛋白,在组蛋白以外染色体还含其他蛋白质( Mirsky and Pollister, 1946 )。他们用来提取核酸和蛋白质的细菌正是 Avery 给他们的 III 型肺炎球菌,并提到 Avery-MacLeod-McCarty 提取转化因子的方法部分参考了 Mirsky 和 Pollister 方法( Mirsky and Pollister, 1946 ),与 McCarty 后来的回顾一致( Darnell, 2011 )。 Mirsky 和 Pollister ( 1946 )指出核蛋白的纤维状是因多聚体的 DNA ,而非 1937 年诺贝尔奖得主 Albert Szent-Györgyi ( 1893-1986 )等误认为与肌球蛋白( myosin )相似。他们也用提取的核蛋白(当时他们还曾称为 chromosin )验证了 Avery-MacLeod-McCarty 的转化实验,但他们指出很难获得完全不含蛋白质的纯 DNA ,而当时的方法无法检测出低于 2% 的蛋白质,所以不能断定转化活性是 DNA 、还是蛋白质,他们认为还需一步一步去除蛋白质、同时检测转化活性( Mirsky and Pollister, 1946 )。他们曾认为可以用氯仿 - 辛醇反复 6 、 7 次去除蛋白质、再用乙醇沉淀后获纯化的 DNA ( Mirsky and Pollister, 1946 ),但他们未进一步用自己提出的方法来验证转化因子是核酸还是蛋白质。 Mirsky 多次较强烈公开表示反对只有 DNA 而无蛋白质参与转化。
1947 年, Mirsky 和同事在提取染色体后确定 DNA 占其质量的 37% 和蛋白占 59% ( Mirsky and Ris, 1947 )。他们继而发现同一生物的不同体细胞中 DNA 含量相同,而体细胞 DNA 含量是精子 DNA 的两倍。因为体细胞是二倍体有两套染色体、而精子是单倍体,所以 DNA 含量与染色体数量相关, Mirsky 也相信 DNA 可能是遗传物质的一部分,但并不表明基因只有核酸没有其他( Mirsky and Ris, 1949, 1951 )。 Mirsky 至 1951 年仍不信仅由 DNA 而无蛋白质携带遗传信息( Mirsky , 1951 )。
Mirsky 与 Avery 的关系因为前者在私下和公开批评 Avery-MacLeod-McCarty 而恶化, Avery 还在洛克菲勒工作的最后几年,他们之间断绝了直接交流( McCarty , 1985 )。
Avery-MacLeod-McCarty ( 1944 )认为转化因子是 DNA 非蛋白质的证据之一是 DNA 酶( DNase )可以降解转化因子,而蛋白酶、 RNA 酶不能。但是,当时用的 DNase 并非纯化的 DNase ,而是很粗糙的制备,含很多其他的酶, Avery-MacLeod-McCarty 只比较了这些制备物含磷酸酶、酯酶和 DNase 的相对分布,所以他们也承认有关转化因子的酶学证据是间接的( McCarty and Avery, 1946a )。实际上, DNase 不过是 1940 年才由美国国立健康研究院癌症研究所的 Jesse Greenstein ( 1902-1959 )和 Wendell Jenrette 所发现、 1943 年命名,要到 1948 年洛克菲勒的 Kunitz 才能获结晶纯的 DNase ( Kunitz , 1948 )。 1944 年 Avery-MacLeod-McCarty 文章发表时,全世界谁也没有纯化的 DNase 。
1944 年, McCarty 到当时在 Princeton 的洛克菲勒研究所的分部,跟 Kunitz 学习分离结晶蛋白质。 Kunitz 跟 Northrop 成了专家,不仅结晶了 RNA 酶,还获得了结晶纯的好几个酶。 McCarty 学会了他的技术, Kunitz 能结晶的五个酶, McCarty 回到纽约的分部也都能结晶,只有 DNase 虽然纯化度提高了、但不能结晶。 1946 年 McCarty 发表论文,报道获的相当纯化 DNase 、活性很高,不含 RNA 酶、酯酶、磷酸酶、但含很低的蛋白水解酶活性( McCarty, 1946a )。镁离子 (Mg ++ ) 和锰离子 (Mn ++ ) 可激活、柠檬酸可抑制 DNase ,特异的抗血清也可抑制 DNase ( McCarty, 1946a )。用经过一定纯化制备的 DNase ,他们再检验转化因子是否 DNA ( McCarty and Avery, 1946a )。这次,他们也观察了相关性。镁离子激活 DNase 活性的作用可以被柠檬酸抑制,而锰离子激活 DNase 活性的作用不被柠檬酸抑制。而这些作用都与柠檬酸能否抑制镁离子和锰离子对转化活性的作用相关,支持转化因子是 DNA 。对 DNase 制备物还含微量蛋白水解酶活性的问题,他们用稀释的方法予以排除。制备物在含蛋白质每毫升 0.2 毫克以上时可以检测到蛋白水解酶的活性,但他们稀释到蛋白质浓度低于每毫升 0.01 微克、直至每毫升含 0.0025 (甚至 0.00125 )微克时,还有 DNase 的活性和降解转化活性的作用,而这时无蛋白水解酶活性(需要浓度提高十万倍才有),这样的结果很难否定转化因子是 DNA 的可能性。
发现柠檬酸对 DNase 的抑制作用后, McCarty 和 Avery 再重新提取 III 型 S 类菌的转化因子,在提取过程中加柠檬酸,提高了转化因子产量五倍( McCarty and Avery, 1946b )。他们从 II 型和 VI 型肺炎球菌也找到了转化因子,对 II 型转化因子的分析也支持是 DNA 。
1946 年 Rollin Hotchkiss ( 1911-2004 )加入转化因子研究。 1948 年 Kunitz 获得结晶纯的 DNase 后, Hotchkiss 证明它可以灭活转化因子( McCarty , 1985 )。至 1949 年, Hotchkiss 可以做到提取的转化物质中蛋白质含量低于 0.02% 却仍有转化活性,而且在纯化过程中虽然蛋白质含量越来越低、但转化活性不降低,如果转化因子还是蛋白质,那就非常不同于其他蛋白质( Hotchkiss, 1952 )。 3-10-3 核酸的特异性和信息量
Levene 的“四核苷酸假说”导致误解:核酸单调无信息含量。
核酸生化权威如此,而在二战前后都研究核酸生物物理的英国科学家 William Astbury ( 1898-1961 )也认同四核苷酸假说 ( Astbury , 1947 )。
哥伦比亚大学的旅美奥地利犹太生物化学家 Erwin Chargaff ( 1905-2002 )受 Avery-MacLeod-McCarty ( 1944 )结果的激动,从脂类研究转向核酸研究。他实验室用生化方法检测不同组织、细胞来源的 DNA 是否含等量的四种核苷酸。他们将 1944 年发明的纸层析方法用于分开嘌呤和嘧啶等碱基、用紫外线分光光度仪检测碱基,提高了灵敏性与可靠性( Vischer and Chargaff, 1947, 1948 )。几年内,他们很快发现 A:G:C:T 不等于 1:1:1:1 ,推翻了单调重复的四核苷酸假说、支持 Avery-MacLeod-McCarty 提出的核酸可能具有化学特异性( Chargaff et al ., 1949; Vischer et al. , 1949 )。有了 DNase 以后,他们将牛胰 DNA 降解为多个片段,发现不同片段含 A 、 G 、 C 、 T 量不同,从而提出 DNA 链中核苷酸有非单调的排列( Zamenhof and Chargaff, 1950; Tamm et al ., 1953 )。
认同 Avery-MacLeod-McCarty ( 1944 )工作有很大意义的科学家也认为当时还不能完全接受 DNA 是遗传物质。因为即使转移因子只含 DNA 而无蛋白质, Avery-MacLeod-McCarty ( 1944 )的结果还可以有多种解释, 1958 年的诺贝尔奖获得者 Joshua Lederberg ( 1925-2008 )在 1956 年总结为:转化因子 1 )不是遗传物质,而是一种突变剂; 2 )多糖合成的自身催化剂; 3 )能够诱导宿主细胞荚膜合成反应的细菌病毒; 4 )细胞质基因或形态发生源; 5 )未进入细胞起作用; 6 )细菌遗传机构中能检测的一部分; 7 )特有的机制、无普遍性( Lederberg, 1956 )。
1946 年, McCarty 在美国细菌学会获奖时已经说明转化因子的作用是可遗传的,被转化的细菌不仅性状传代,而且从后代提取到的转化活性可以高于最初用的转化活性,说明转化因子不仅仅能诱导荚膜多糖合成,而且能在细菌中自我复制,这些特性既与基因相似、也与病毒相似( McCarty and Avery, 1946b )。 所以 Lederberg 在 1956 年都没意识到他提的 7 点有很多可为 1946 年 McCarty 已知的结果所排除,而 Lederberg 还属于特别推崇 Avery-MacLeod-McCarty 者之一 。
几个实验解决了转化是否有普遍性的问题。 1947 年法国的 André Boivin 报道可用来自一种抗原性的大肠杆菌的 DNA 转化另一大肠杆菌的抗原性,他称为定向突变( directed mutation )( Boivin, 1947 )。 1949 年 Austrian 和 MacLeod 在肺炎球菌可同时做到三个性状的转化( Austrian and MacLeod, 1949 )。 1951 年 Hotchkiss 发现从青霉素抵抗的细菌可得 DNA ,将青霉素抗药性转给其他细菌( Hotchkiss, 1951 )。
DNA 可在多种细菌之间转化多种可以检测的性状,转化后的性状都可在代间遗传,从被转化的细菌的后代获得的 DNA 本身也有转化活性,证明 DNA 的作用之普遍性和可遗传性。 3-10-5 Hershey-Chase 实验
应该说 1946 年 McCarty 和 Avery 文章后, DNA 是转化因子的可能性非常大, 而 Hotchkiss ( 1952 )纯化的转化因子蛋白质含量低于 0.02% , 1951 年 Alexander 与 Leidy 用结晶纯的 DNA 酶可降解流感杆菌的转化活性就基本证明了 DNA 的转化因子。但如果要一直质疑,还可以说降解了 DNA 链后导致上面附着的微量蛋白质活性不稳定。要完全证明只有 DNA 是转化因子,需要确定某些基因的核苷酸序列、然后化学合成同样的序列、再用来转基因,而当时在知识上和技术上都不可能做到,只能依靠不断增强的外围证据。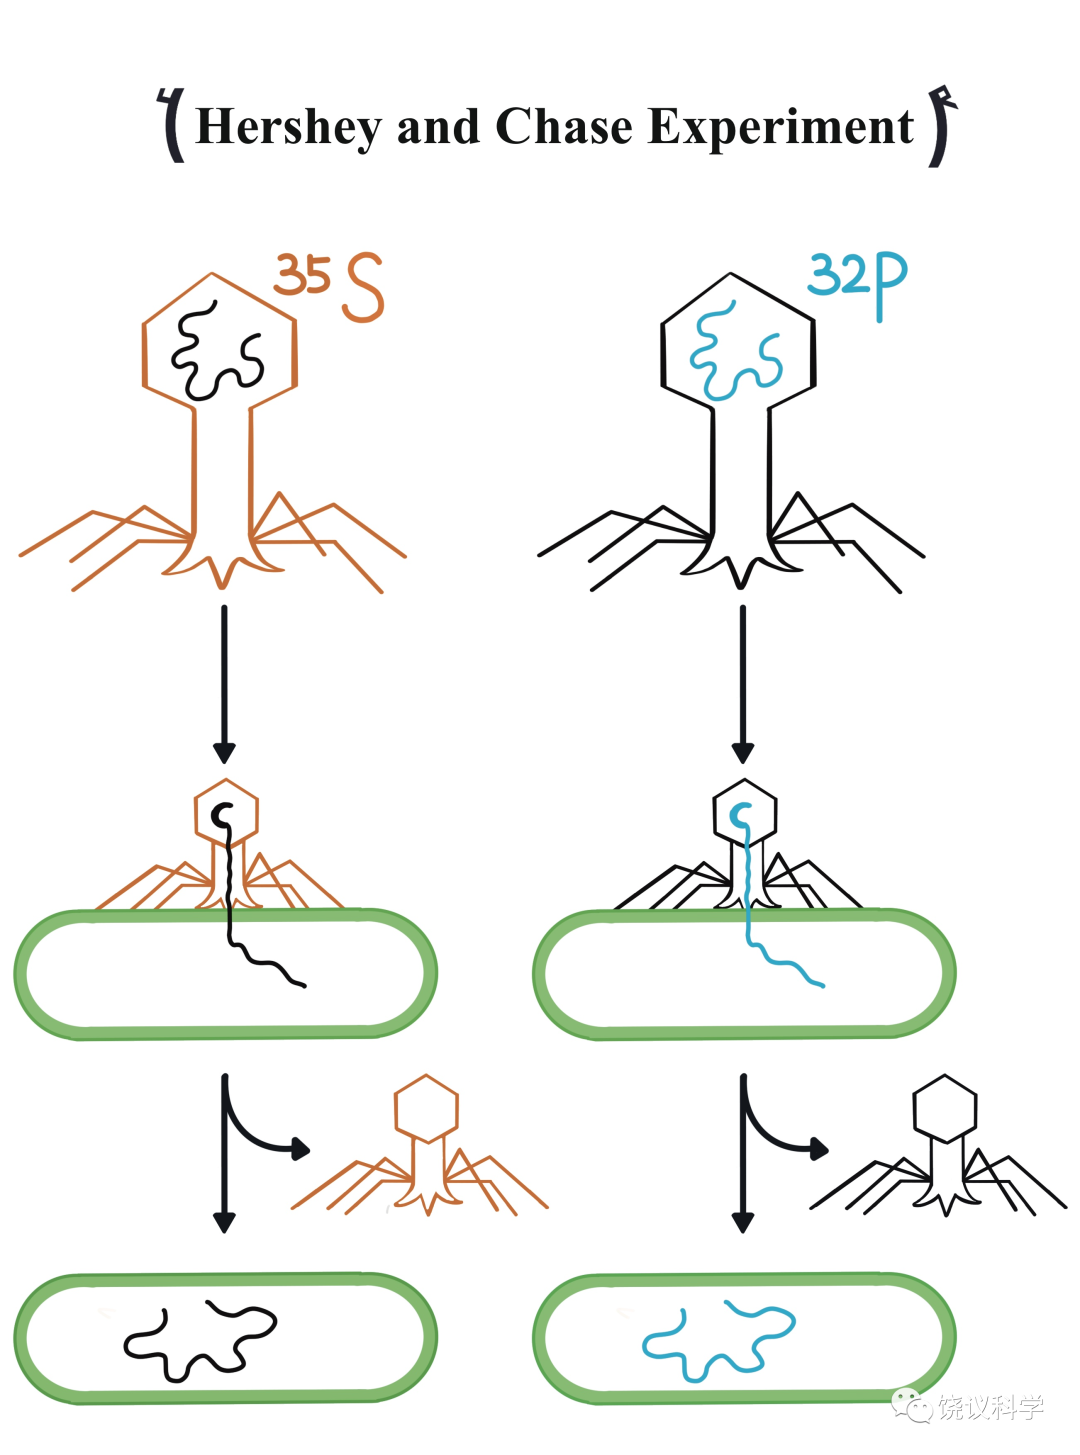
1950 年代影响很大的工作是 Hershey-Chase 实验( Hershey and Chase, 1952 )。 Alfred Hershey ( 1908-1997 )研究细菌的病毒(噬菌体), 1950 年到冷泉港实验室工作, Martha Chase ( 1927-2003 )为其助手。噬菌体可以感染细菌,并在细胞内复制、细菌间传代。噬菌体外壳为蛋白质、内含 DNA 。 Hershey 和 Chase 用放射性同位素标记核酸和蛋白质, 32 P 用于追踪 DNA (所有 DNA 都含磷)、 35 S 用于追踪蛋白质(有些氨基酸含硫)。在噬菌体感染细菌几分钟后, Hershey 和 Chase 摇动培养将细菌与细胞外的噬菌体分开,再检测磷和硫分别多少进入细胞、多少留在胞外,结果发现 30% 的 32 P 留在细胞外、 80% 的 35 S 留在细胞外;代间观察发现, 30% 的 32 P 传代、少于 1% 的 35 S 传代。这一实验被认为提供了很强的证据表明 DNA 是遗传物质、蛋白质不是。如果要比较,当然这些结果在纯度上远不如 1946 年 McCarty 和 Avery 已经达到的程度,更不如 Hotchkiss ( 1952 )的程度。
Avery-MacLeod-McCarty 后续 研究的一个方面是以上 验证 DNA 是转化因子、并推广其意义,另一方面是刺激以后的发展。
1943 年,意大利裔美国犹太生物学家 Salvador Luria ( 1912-1991 )和德裔美国物理学家 Max Delbrück ( 1906-1981 )借助数学模型分析细菌对噬菌体抵抗性的统计规律,证明细菌可以自发出现遗传突变( Luria and Delbrück, 1943 )。 1941 年美国遗传学家 George Beadle ( 1903-1989 )与 Edward Tatum ( 1909-1975 )通过遗传突变研究红色面包霉( Neurospora )的生化反应( Beadle and Tatum, 1941 )确立一个基因一个酶的概念。 Tatum 于 1944 年和 1945 年研究了细菌( K12 大肠杆菌)的突变。
还在哥伦比亚大学念医学院的 Lederberg 从本科阶段就参加科学研究,其指导老师曾跟随 Tatum 用粗糙链胞霉。 1945 年 1 月, Lederberg 从一位研究生那里获 Avery -MacLeod-McCarty 全文,读后兴奋不已。他想用链胞霉研究转化,结果发现他们最初用的链胞霉突变种很容易自发回复,没做成他预计的实验,但发表了他第一篇论文。他再转向研究细菌是否有“性”。他的老师听说 Tatum 要来东海岸到耶鲁工作,建议他到 Tatum 实验室一道研究。 Lederberg 给 Tatum 写信提出他的研究目的:细菌的性重组( sexual recombination )。他们在耶鲁很快出了结果,发现细菌的性生活:一个细菌将信息给另一细菌( Lederberg and Tatum, 1946; Lederberg, 1947 )。细菌遗传学在 1950 和 1960 年代为遗传学的核心,其所用的细菌、发现的质粒( Lederberg , 1952 )等也成为分子生物学和 1970 年代诞生的生物技术产业的重要工具。 3-10-7 解析 DNA 三维结构
注 2 : 1944 年, Avery 已 67 岁,属很少见的在年龄很大的时候做出重要工作的科学家。 MacLeod 只有 35 岁, McCarty 只有 33 岁。 MacLeod 一直是“少年得志”类, 15 岁高中毕业, 23 岁毕业于 McGill 大学医学院,到纽约大学任微生物系主任时仅 32 岁。
注 3 :据 Hammarsten 的学生 Reichard ( 2002 )在研读解密的文件后介绍, 1932 年至 1946 年几乎每年 Avery 都因发现细菌多糖的抗原性而被提名诺贝尔奖。 1946 年后提名开始提到他的转化工作,但当时诺贝尔医学奖委员会懂核酸的关键成员 Hammarsten 虽首先提议委员会考虑这一工作,但他每次都认为不行,前几年是考虑到提取物易污染、难排除蛋白质起转化作用的可能性,等到 1952 年 Hershey 和 Chase 文章、 1953 年 Watson 和 Crick 文章后,他和其他成员相信 DNA 是转化因子, Hammarsten 的评估报告认为 DNA 是转化因子,但其作用机理不明、所以得奖还早。 1953 年诺奖给三羧酸循环的发现者 Hans Krebs ( 1900-1981 )和辅酶 A 的发现者 Fritz Lipmann ( 1899-1986 )、 1954 年奖给脊髓灰质炎病毒的发现者们。而 1955 年 Avery 去世后,核酸方面的诺贝尔奖都比较快,包括 1959 年发错了一半。
注 4 : Kossel 获 1910 年诺贝尔化学奖,因为“通过其对蛋白质的研究,包括核物质,对细胞化学知识的贡献”,委员会看重他研究蛋白质,而他的诺贝尔演讲前面大半内容是核酸。 Kossel 于 1884 年发现的组蛋白,在二十世纪末和二十一世纪初为分子生物学研究的热点。 1974 年,美国 Stanford 大学的 Roger Kornberg ( 1947- )提出 DNA 重复地、规则地环绕组蛋白形成核小体( Kornberg and Thomas , 1974 ; Kornberg , 1974 )。美国洛杉矶加州大学( UCLA )的 Michael Grunstein 实验室通过酵母遗传学证明组蛋白和核小体对基因转录的重要性。 1996 年美国的 David Allis 实验室发现组蛋白乙酰转移酶后( Brownell et al. , 1996 ),组蛋白修饰成为很多人研究的表观遗传学的核心问题之一。
注 5 : Lederberg 于 1946 和 1947 年发表重要结果后,不再念哥伦比亚大学的医学院而转到耶鲁做研究生( Lederberg , 1987 ),他的研究生工作使他在 33 岁与 Beadle 和 Tatum 共享 1958 年诺贝尔奖。 Arthur Kornberg ( 1918-2007 )因于 1956 年发现 DNA 多聚酶获 1959 年诺贝尔奖。 Perutz 与 Kendrew 因研究血红蛋白和肌球蛋白的三维结构获 1962 年诺贝尔化学奖。 Watson 、 Crick 和 Wilkins 获 1962 年诺贝尔生理或医学奖。 Delbrück 、 Luria 和 Hershey 获 1969 年诺贝尔奖。
注 6 :法裔科学家 René Jules Dubos 多才多艺, 1948 年因研究土壤细菌及其抗生素与导师 Selman Waksman ( 1888-1973 )共享 Lasker 奖( Waksman 因为发现链霉素获 1952 年诺贝尔奖,但他另一研究生 Albert Schatz ( 1920-2005 )认为自己是发现链霉素的主力)。 Dubos 被 Avery 招到洛克菲勒以后,除几年在哈佛任教外都在洛克菲勒。他写了很多包括科普的书,其中 1968 年出版的《如此人性的动物》( So Human an Animal )一书获 1969 年普利策奖。 Avery 找到 Dubos 是巧遇, Dubos 于 1927 年研究生毕业时,有人建议他到洛克菲勒求教法国同胞、 1912 年诺贝尔奖得主 Alexis Carrel ( 1873-1944 ),他们到餐厅午餐时 Dubos 旁边正好坐着 Avery ,两人一拍即合, Avery 说了他面临的问题(肺炎球菌荚膜多糖), Dubos 说肯定可以从土壤细菌中找到降解的酶。
注 7 :发现肺炎球菌的 Albert Fränkel 因为是犹太人,在 1930 年代已年迈后没有被希特勒得势后的虐犹者所放过,被剥夺教授职位和行医执照。一大批科学家被整和出逃导致有辉煌科学历史的德国迅速落后。
注 8 : Dochez 一战时入伍, 1919 年到霍普金斯大学任教, 1921 年回纽约在哥伦比亚大学任教,长期是 Avery 的室友和朋友。其研究自 1919 年改为链球菌, 1928 年改为流感病毒。
注 9 : Horace Judson 于 1979 年出版的 The Eighth Day of Creation 一般认为很好的有关分子生物学历史的书。但是,他依赖访谈,不善阅读关键原始论文,对 Avery 等工作理解不够充分、不清楚 1946 年的文章,且未采访当时健在的 MacLeod 和 McCarty , McCarty 自己出书有更可靠的一手材料( McCarty , 1985 )。 PPT
Alexander HE and Leidy G (1951) Determination of inherited traits of H. influenzae by desoxyribonucleic acid fractions isolated from type-specific cells. Journal of Experimental Medicine 93:345-359. Alexander HE and Leidy G (1953) Induction of streptomycin resistance in sensitive Hemophilus influenzae by extracts containing desoxyribonucleic acid from resistant Hemophilus influenzae . Journal of Experimental Medicine 97:17-31. Alexander HE and Redman W (1953) Transformation of type specificity of meningococci: Change in heritable type induce by type-specific extracts containing desoxyribonucleic acid. Journal of Experimental Medicine 97:797-806. Alloway JL (1932) The transformation in vitro of R pneumococci into S forms of different specific types by the use of filtered pneumococcus extracts. Journal of Exerimental Medicine 55:91-99. Alloway JL (1933) Further observations on the use of pneumococcus extracts in effecting transformation of type in vitro . Journal of Experimental Medicine 57:265-278. Altmann R (1889). Ueber Nucleinsäuren. Archiv für Anatomie und Physiologie. Physiologische Abteilung 524-536, Leipzig. Amoss HL (1925) The composite nature of a pure culture of a virulent pneumococcus. Journal of Experimental Medicine 41:649-662. Arkwright JA (1921) Variation in bacteria in relation to agglutination both by salts and by specific serum. Journal of Pathology and Bacteriology 24:36-60. Astbury WT and Bell FO (1938a) X-ray study of thymonucleic acid. Nature 141:747-748. Astbury WT and Bell FO (1938b) Some recent developments in the X-ray study of proteins and related structure. Cold Spring Harbor Symposia on Quantitative Biology 6:109-118. Austrian R and MacLeod CM (1949) Acquition of M protein by pneumococci through transformation reactions. Journal of Experimental Medicine 89:451-460. Austrian R and Gold J (1964) Pneumococcal bacteremia with especial reference to bacteremic pneumococcal pneumonia. Annals of Internal Medicine 60:759-776. Austrian R, Douglas RM, Schiffman G (1976) Prevention of pneumococcal pneumonia by vaccination. Transactions of the Association of American Physicians 89:184-189. Avery OT, Chickering HT, Cole R, Dochez AR (1917) Acute lobar pneumonia: prevention and serum treatment. Monograph No. 7, New York: Rockefeller Institute for Medical Research. Avery OT and Dubos R (1931) Protective action of a specific enzyme against type III pneumococcus infection in mice. Journal of Experimental Medicine 54:73-90. Avery OT and Goebel WF (1933) Chemoimmunological studies on the soluble specific substance of Pneumococcus: I. the isolation and properties of the acetyl polysaccharide of Pneumococcus type I. Journal of Experimental Medicine 58:731-755. Avery OT, MacLeod CM and McCarty M (1944) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 79: 137-158. Bernal JD and Crowfoot DM (1934) X-ray photographs of crystalline pepsin. Nature 133:794-795. Beadle GW, Tatum EL (1941). Genetic control of biochemical reactions in Neurospora . Proceedings of the National Academy of Sciences 27:499-506. Boivin A (1947) Directed mutation in colon bacilli, by an inducing principle of desoxyribonucleic nature: its meaning for the general biochemistry of heredity. Cold Spring Harbor Symposium on Quantitative Biology 12:7-17. Brachet J (1942) La localization des acides pentosennucléiques dans les tissus animaux et les oeufs d’Amphibiens en voie de développeent. Archiv de Biologie 53:207-257. Brown R (1833) Obesrvation on organs and mode of fecundation in Orchideae and Asclepiadeae. Transactions of the Linnean Society of London 16:685-716. Brownell JE, Zhou J, Ranalli T, Kobayashi R, Edmondson DG, Roth SY, Allis CD (1996). Tetrahymena histone acetyltransferase A: a homolog to yeast Gcn5p linking histone acetylation to gene activation. Cell 84:843-851. Caspersson T (1932) Die quantitative bestimmung vom Thymonucleinsäure mittels fuchsinschwefliger Säure. Biochem Zeitschtift 353:97-. Caspersson T (1935). Ueber die localization der nucleinsäure im Zellkern. Naturwissenschaften 30:527-. Casspersson T (1936). Ueber den chemischen Aufbau der strukturen des Zellkernes. Skan Arch Physiol 73(Suppl. 8):1-51. Caspersson T, Hammarsten E and Hammarsten H (1935). Interactions of proteins and nucleic acid. Transactions of the Faraday Society 31:367-389. Caspersson T and Schultz J (1938) Nucleic acid metabolism of the chromosomes in relation to gene reproduction. Nature 142:294-295. Caspersson T and Schultz J (1939). Pentose nucleotides in the cytoplasm of growing tissues. Nature 143:602. Chargaff E (1950) Chemical specificity of nucleic acids and mechanism of their enzymic degradation. Experientia 6:201-209. Chargaff E and Zamenhof S (1948) The isolation of highly polymerized dexoxypentosenucleic acid from yeast cells. Journal of Biological Chemistry 173:327-335. Chargaff E, Vischer E, Doniger R, Green C and Misani F (1949) The composition of the desoxypentose nucleic acids of thymus and spleen. Journal of Biological Chemistry 177:405-416. Chargaff E, Lipshitz R, Green C and Hodes ME (1951) The composition of the deoxyribonucleic acid of Salmon sperm. Journal of Biological Chemistry 192:223-230. Cobb M (2014) Oswald Avery, DNA, and the transformation of biology. Current Biology 24:R55-R60. Dahm R (2005). Friedrich Miescher and the discovery of DNA. Developmental Biology 278:274-288. Dahm R (2008). Discovering DNA: Friedrich Miescher and the early years of nucleic acid research. Human Genetics 122:565-581. Dale HH (1946) Address of the president. Proceedings of the Royal Society B 133:123-139. Darnell J (2011) RNA, life’s indispensable molecule. pp. 43-44, Cold Spring Harbor Laboratory Press, New York. Dawson MH (1928) The interconvertibility of “R” and “S” forms of pneumococcus. Journal of Experimental Medicine 47:577-591. Dawson MH (1930) The transformation of pneumococcal types: II the interconvertibility of type-specific S pneumococci. Journal of Experimental Medicine 51:123-147. Dawson MH and Sia RHP (1931) In vitro transformation of pneumococcal types. I. A technique for inducing transformation of pneumococcal types in vitro . Journal of Experimental Medicine 54:681-699. Dubos RJ (1976) The professor, the institute, and DNA. Rockefeller University Press, NY. Dobzhansky T (1941) Genetics and the origin of the species, p. 47, Columbia University Press, New York. Dochez AR and Avery OT (1917a). Soluble substance of pneumococcus origin in the blood and urine during lobar pneumonia. Proceedings of the Society of Experimental Biology and Medicine 14:126-127. Dochez AR and Avery OT (1917b). The elaboration of specific soluble substance by pneumococci during growth. Journal of Experimental Medicine 26:477-493. Dochez AR and Gillespie LJ (1913) A biologic classification of pneumococcus by means of immunity reactions. Journal of the American Medical Association 61:727-732. Dochez AR and Avery OT (1916) Antiblastic immunity. Journal of Experimental Medicine 23:61-68. Downie AW (1972) Pneucococcal transformation-a backward view: Fourth Griffith Memorial Lecture. Journal of General Microbiology 73:1-11. Dunn LC (1951) Genetics in the Twentieth Century: Essays on the Progress of Genetics during its First Fifty Years. Macmillan, NY. Feulgen R and Rossenbeck H (1924). Mikroskopisch-chemischer Nachweis einer Nucleins ä ure von Typus der Thyomonucleins ä ure and die darauf beruhende elective F ä rbung von Zellkernen in microskopicschen Praparaten. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 135: 203-248. Fränkel A (1884) Über die genuine Pneumonie. Verhandlungen des Congresses für Innere Medicin, Dritter Congress 3:17-31. Franklin R and Gosling RG (1953) Molecular configuration in sodium thymonucleate. Nature 171:740-741. Goebel WF, Avery OT, Babers FH (1934). Chemo-immunological studies on conjugated carbohydrate proteins. IX. The specificity of antigens prepared by combining the p-aminophenol glysides of disaccharides with protein. Journal of Experimental Medicine 60:599-617. Griffith F (1922) Types of pneumococci obtained from cases of lobar pneumonia. In Reports on Public and Medical Subjects , № 13, pp. 20-45, His Majesty’s Stationery Office, London. Griffith F (1923) The influence of immune serum on the biological properties of pneumococci. In Reports on Public and Medical Subjects , № 18, pp. 1-13. His Majesty’s Stationery Office, London. Griffith F (1928) The significance of pneumococcal types. Journal of Hygiene 27:113-159. Heidelberger M and Avery OT (1923) The soluble specific substance of Pneumococcus. Journal of Experimental Medicine 38:73-79. Heidelberger M (1977) A “pure” organic chemist’s downward path. Annual Review of Microbiology 31:1-12. Henriques-Normark B and Tuomanen EI (2013) The pneumococcus: epidemiology, microbiology and pathogenesis. Cold Spring Harbor Perspective doi:10.1101. Hershey AD and Chase M (1952) Independent functions of viral protein and nucleic in the growth of bacteriophage. Journal of General Physiology 36:39-56. Hoppe-Seyler EFI (1871) Ueber die chemische Zusammensetzung des Eiters. Medisch-chemische Untersuchungen 4:486. Hotchkiss RD (1948) The quantitative separation of purines, pyrimidines and nucleosides by paper chromatography. Journal of Biological Chemistry 175:315-332. Hotchkiss RD (1951) Transfer of penicillin resistance in pneumococci by the desoxyribonucleate derived from resistant cultures. Cold Spring Harbor Symposium on Quantitative Biology 16:457-461. Hotchkiss RD (1952) The biological nature of the bacterial transforming factors. Experimental Cell Research Supplement 2:383-389. Hotchkiss RD (1965) Oswald T Avery: 1877-1955. Genetics 51:1-10. Itakura K, Hirose T, Crea R, Riggs AD, Heyneker HL, Bolivar F, Boyer HW (1977) Expression in Escherichia coli of a chemically synthesized gene for the hormone somatostatin. Science 198:1056-1963. Jones W (1914) Nucleic Acids: Their Chemical Properties and Physiological Conduct. Longmans, Green and Co., London. Jones ME (1953). Albrecht Kossell, a biographical sketch. Yale Journal of Biology and Medicine 26:80-97. Judson H (1979) The eighth day of creation: makers of the revolution in biology. Simon and Schuster. Kasten FH (2003) Robert Feulgen and his histochemical reaction for DNA. Biotechnic and Histochemistry 78:45-49. Kornberg R and Thomas JO (1974). Chromatin structure: oligomers of the histones. Science 184:865-868. Kornberg R (1974). Chromatin structure: a repeating unit of histones and DNA. Science 184:868-871. Kossel A (1879). Ü ber das Nuclein in der Hefe I. Zschar Physiol Chem 3:284-291. Kossel A (1891) Ü ber die chemische Zusammensetzung der Zelle. DuBois-Reymond’s Arch 181:181-186. Kossel A (1912) The proteins. Bulletin of the Johns Hopkins Hospital 23:65-76. Kunitz M (1940) Crystalline ribonuclease. Journal of General Physiology 24:15-32. Kunitz M (1948) Isolation of crystalline desoxyribonuclease from beef pancreas. Science 108:19-20. Kunitz M (1950) Crystalline desoxyribonuclease. Journal of General Physiology 35:349-377. Lamm E, Harman O and Veigl SJ (2020) Before Watson and Crick in 1953 came Friedrich Miescher in 1869. Genetics 215:291-296. Lederberg J (1947) Gene recombination and linked segregations in Escherichia coli . Genetics 32:505-525. Lederberg J (1952) Cell genetics and hereditary symbiosis. Physiological Reviews 32:403-430. Lederberg J (1956) Genetic transduction. American Scientist 44: 264-280. Lederberg J (1994) The transformation of genetics by DNA: an anniversary celebration of Avery, MacLeod and McCarty (1944). Genetics 136:423-426. Lederberg J (1987) Genetic recombination in bacteria: a discovery account. Annual Review of Genetics 21:23-46. Lederberg J and Tatum EL (1946) Gene recombination in Escherichia coli . Nature 158:558. Levene PA, Mandel JA (1908) Über die Darstellung und Analyse einiger der Nucleinsäuren. XIII. Mitteilung. Über ein Verfahren zur Gewinnung der Puribasen. Biochemische Zeitschrift 10:215-220. Levene PA (1909) Über die Hefenucleinsaeure. Biochemische Zeitschrift 17:120-121. Levene PA and Jacobs WA (1912). On the structure of thymus nucleic acid. Journal of Biological Chem istry 12: 411-420. Levene PA (1917a). The structure of yeast nucleic acid. Journal of Biological Chemistry 31:591-598. Levene PA (1917b). The chemical individuality of tissue elements and its biological significance. Journal of American Chemical Society 39:828-837. Levene PA (1919). The structure of yeast nucleic acid: IV. ammonia hydrolysis. Journal of Biological Chemistry 40: 415-424. Levene PA (1920a). The structure of yeast nucleic acid: V. ammonia hydrolysis. Journal of Biological Chemistry 41:19-23. Levene PA (1920b). The structure of yeast nucleic acid: ammonia hydrolysis: the so called trinucleotide of Thannhauser and Dorfmüller. Journal of Biological Chemistry 43:379-382. Levene PA and London ES (1929). The structure of thymonucleic acid. Journal of Biological Chemistry 83:793-802. Levene PA and Bass LW (1931) Nucleic Acids. Chemical Catalog Company, New York. Levene PA Tipson RS (1935) The ring structure of thymidine. Journal of Biological Chemistry 109:623-630. Liu S and Wu H (1938) Mechanism of the recovery of antibody recovery from immune precipitate. Chinese Journal of Physiology 13:449-462. Lubavin (1871) Ueber die künstliche Pepsin-Verdauung des Caseins und die Einwirkung von Wasser auf Eiweissubstanzen. Medisch-chemische Untersuchungen 4: 485. Luria SE, Delbrück M (1943) Mutations of bacteria from virus sensitivity to virus resistance. Genetics 28:491–511. MacLeod CM, Hodges RG, Heidelberger M, Bernhard WG (1945) Prevention of pneumococcal pneumonia by immunization with specific capsular polysaccharides. Journal of Experimental Medicine 82:445-465. Mandel JA, Levene PA (1905) Darstellung und Analyse einiger der Nucleinsäuren. XI. Mitteilung. Über die Nucleinsäure der Kuhmilchdrüse. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 46:155-158. McCarty M (1945) Reversible inactivation of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 81:501-514. McCarty M (1946a) Purification and properties of desoxyribonuclease isolated from beef pancreas. Journal of General Physiology 29:123-139. McCarty M (1946b) Chemical nature and biological specificity of the substance inducing transformation of pneumococcal types. Bacteriology Reviews 10:63-71. McCarty M and Avery OT (1946a) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. II. Effect of desoxyribonucleose on the biological activity of the transforming substance. Journal of Experimental Medicine 83:89-96. McCarty M and Avery OT (1946b) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. III. An improved method for the isolation of the transforming substance and its application to pneumococcus types. Journal of Experimental Medicine 83:97-104. McCarty M (1985) The transforming principle, discovering that genes are made of DNA. Norton, NY. Miescher JF (1871a) Ueber die chemische Zusammensetzung der Eiterzellen. Medisch-chemische Untersuchungen 4:441-460. Miescher JF (1871b) Die Kerngebilde im Dotter des Hühnereis. Medisch-chemische Untersuchungen 4:502. Miescher JF (1874) Die Spermatozoen einiger Wirbelthiere. Ein Beitrag zur Histochemie. Verhandlungen der Naturforschenden Gesellschaft in Basel 6: 138-208. Mirsky AE (1951). Some chemical aspects of the cell nucleus, in Leslie C. Dunn, ed., Genetics in the 20th Century , pp. 127-153, New York. Mirsky AE, Pollister AW (1942) Nucleoproteins of cell nuclei. Proceedings of the National Academy of Sciences 28:344-352. Mirsky AE, Pollister AW (1946) Chromosin, a desoxyribose nucleoprotein complex of the cell nucleus. Journal of General Physiology 30:117-148. Mirsky AE, Ris H (1947) The chemical composition of isolated chromosomes. Journal of General Physiology 31:7-18. Mirsky AE, Ris H (1949) Variable and constant components of chromosomes. Nature 163:666-667. Mirsky AE and Ris H (1951) The desoxyribonucleic acid content of animal cells and its evolutionary significance. Journal of General Physiology 34:451-462. Morgan TH (1910) Sex-linked inheritance in Drosophila. Science 32:120-122. Morgan AH, Sturtevant AH, Muller HM, and Bridges CB (1915). The mechanisms of Mendelian heredity. Henry Holt & Co., New York. Neufeld F and Händel L (1909). Über Herstellung und Prüfung von Antipneumokokken-Serum und über die Aussichten einer spezifischen Behandlung der Pneumonie. Zeitschrift für Immuntätsforschun 3:159-171. Neusfld f and Händel L (1912). Zur Frage der Serumtherapie der Pneumonie und der Werbestimmung des Pneumokokken-Serums. Berliner Klinische Wochenschrift 49:680-683. Neufeld F and Levinthal W (1928) Beiträge zur Variabilität der Pneumokokken. Zeitschtift für Immunitätsforschung 55:324-340. Osborne TB, Harris IF (1902) Die Nucleinsäure des Weizenembryos. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 36:85-123. Pasteur L (1880) De l’atténuation du virus du choléra des poules. C R Acad Sci 91:673-680. Pasteur L (1881) Note sur la maladie nouvelle provoquée par la salive d’un enfant mort de la rage. Bulletin de l’Académie de Médicine (Paris) 10:94-103. Piccard J (1874) Über Protamin, Guanin und Sarkin als Bestandteile des Lachssperma. Chemische Berichte 7:1714-1719. Plósz P (1871) Ueber das chemische Verhalten der Kerne de Vogel- und Schlangenblutkorperchen. Medisch-chemische Untersuchungen 4:463-484. Reichard P (2002) Oswald T Avery and the Nobel Prize in medicine. Journal of Biological Chemistry 277:13355-13362. Reimann HA (1925) Variations in specificity and virulence of Pneumococci during growth in vitro . Journal of Experimental Medicine 41:587-600. Reimann HA (1927) The occurrence of degraded pneumococci in vivo. Journal of Experimental Medicine 45:807-814. Reimann HA (1929) The reversion of R to S Pneumococci . Journal of Experimental Medicine 49:237-249. Schultz J and Caspersson T (1940) Ribonucleic acids in both nucleus and cytoplasm and the function of the nucleolus. Proc Natl Acad Sci USA 26:507-515. Schultz J (1941) The evidence of the nucleoprotein nature of the gene. Cold Spring Harbor Symposium on Quantitative Biology 9:151-167. Schultz J (1943) Physiological aspects of genetics. Annual Review of Physiology 5:35-62. Sevag MG (1934) Eine neue physikalische enteiweissungemethode zur darstellung biologisch wirksamer subsanzen. Biochem Z 273:419. Sia RHP (1926) Presence of type specific pneumocco-opsonins in sera of animals naturally resistant to pneumococcus infection. Experimental Biology and Medicine 24:709-711. Sia RHP and Dawson MH (1931) In vitro transformation of pneumococcal types II. The nature of the factor responsible for the transformation of pneumococcal types. Journal of Experimental Medicine 54: 701-710. Signer R, Caspersson T, Hammarsten E (1938) Molecular shape and size of the thymonucleic acid. Nature 141:122. Sternberg GM (1881) A fatal form of septicaemia in the rabbit produced by the subcutaneous injection of human saliva. An experimental research. Bulletin of the National Board of Health 2:781-783. Stryker LM (1916) Variations in the pneumococcus induced by growth in immune system. Journal of Experimental Medicine 24:49-68. Steudel H (1906) Die Zusammensetzung der Nucleinsäuren aus Thymus und das Heringsmilch. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 49:406-409. Tamm C, Shapiro HE, Lipshitz R and Chargaff E (1953) Distribution density of nucleotides within a desoxyribonucleic acid chain. Journal of Biological Chemistry 203:673-688. Thomas R (1992) Molecular genetics under an embryologist’s microscope: Jean Brachet, 1909-1988. Genetics 131:515-518. Thompson RHS and Dubos RJ (1938) The isolation of nucleic acid and nucleoprotein fractions from pneumococci. Journal of Biological Chemistry 125:65-74. Vischer E and Chargaff E (1947) The separation and characterization of purines in minute amounts of nucleic acid hydrolysates. Journal of Biological Chemistry 168:781-782. Vischer E and Chargaff E (1948) The separation and quantitative estimation of purines and pyridines in minute amounts. Journal of Biological Chemistry 176:703-714. Vischer E, Zamenhof S and Chargaff E (1949) Microbial nucleic acids: the desoxypentose nucleic acids of avian tubercle bacilli and yeast. Journal of Biological Chemistry 177:429-438. Watson JD (1968) Double helix. Atheneum, New York. Watson JD and Crick FHC (1953a) A structure for deoxyribose nucleic acid. Nature 171:737-738. Watson JD and Crick FHC (1953b) Genetical implications of the structure of deoxyribonucleic acid. Nature 171:964-967. Wilkins MHF, Stokes AR and Wilson HR (1953) Molecular structure of deoxypentose nucleic acids. Nature 171:738-740. Wilson EB (1925) The cell in development and inheritance. Macmillan. Wright AE, Morgan WP, Colebrook L, Dodge RW (1914). Observations on prophylactic inoculation against pneumococcus infections and on the result which have been achieved by it. Lancet 1:1-10, 87-95. Zamenhof S and Chargaff E (1950) Dissymmetry in nucleotide sequence of desoxypentose nucleic acids. Journal of Biological Chemistry 187:1-14.
本章要求阅读文献: Griffith F (1928) The significance of pneumococcal types. Journal of Hygiene 27:113-159. Avery OT, MacLeod CM and McCarty M (1944) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 79: 137-158.
百年前,细菌性肺炎危害人类生命,而且带来的死亡远多于现在。
细菌性肺炎,在同一次流行,有明显的减弱过程。但,不同流行期,不能预计,而有时可以出现症状更强的细菌性肺炎。如果新的流行期出现的肺炎症状弱于上一时期,那么细菌性肺炎早就不造成人类的问题了。事实并非如此。
现在流行的冠状病毒,在同一时期流行就有多种突变,有些相互无关,所以同一次流行期间的症状强弱变化就不可预计。最近北大研究者对近期免疫逃逸有局限的预计,但不改变还不能预计症状等其他特征的事实。而不同时期的流行,更不能预计。
百年前有多种围绕细菌性肺炎的诊断和治疗的研究,而最后控制细菌性肺炎的最有效方式是抗生素。抗生素研究本身不是围绕肺炎所进行的。
而研究肺炎的致病菌(肺炎球菌),带来的最根本的突破,又不是针对肺炎本身,而是对于生命的本质:遗传信息,DNA。
那是波澜壮阔的科学研究前沿。相比而言, 病毒性肺炎研究,迄今还差很远。】 《生物学概念与途径》第三章 遗传信息的载体: DNA 基础研究通过推进人类认知前沿可能解决人类面临的问题;人类面临的问题通过刺激科学研究可能推进人类认识前沿。遗传的科学问题与肺炎的医疗问题合力揭示了基因的物质基础。
科学前沿可以出现不同研究途径的意外交汇。从生物功能的角度诞生了遗传学: 1866 年 Mendel 开创遗传学, 1880 年德国的 Flemming 发现染色体, 1902 年德国的 Boveri 获证据支持染色体为遗传的物质基础, 1910 年后美国的 Morgan 及其学生丰富和发展了染色体的遗传学说。从化学成分的角度出现了生物化学: 1869 年,瑞士的 Miescher 在研究伤口脓细胞化学成分的过程中发现核素,其后德国的 Kossel 发现了核酸中的嘌呤和嘧啶,二十世纪初美国的 Levene 确定以核苷酸连接为基础的核酸一级结构,瑞典的 Caspersson 等证明染色体含核酸和蛋白质。
但是,当时研究 DNA 生物化学和生物物理的专家以为 DNA 无特异性、缺乏信息携带能力。
1928 年,研究肺炎致病性细菌的过程中,英国的 Griffith 分析不同类型病例分布后推测不同型的肺炎球菌可能会变化,之后设计实验发现了转化现象。 1944 年,美国洛克菲勒医学研究所的 Avery 、 MacLeod 和 McCarty 研究转化的物质基础,提出脱氧核糖核酸( DNA )是改变细菌可遗传特性的转化因子。其后验证 DNA 的转化活性、证明 DNA 有特异性、发现转化活性不局限于特定细菌的特定性状。
DNA 是遗传的物质基础这一概念,刺激了进 ⼀ 步研究。其中最重要的工作是,在 Franklin 和 Wilkins 对 DNA 进 ⾏ X 线衍射实验的基础上, Watson 和 Crick 于 1953 年提出了 DNA 双螺旋结构模型,标志着遗传学和生物化学共同催生出 分子生物学。 3.1 核酸及其化学结构 3-1-1 核酸的发现
1868 年春,米歇尔毕业于巴塞尔医学院后,因不感兴趣行医、自己听觉有问题、而舅舅认为“组织发育的剩余问题只能依据化学基础来解决”( Dahm , 2005 , 2008 ),米歇尔到德国图宾根接受科学训练。他在有机化学实验室工作一学期后转入 Felix Hoppe-Seyler ( 1825-1895 )实验室。
Hoppe-Seyler 乃时称“生理化学”(后称生物化学)的先驱,他发现血红蛋白的可逆性氧化、并命名( hemoglobin ),他命名蛋白质为 proteid (后称 protein )。 Hoppe-Seyler 建议米歇尔研究淋巴细胞的化学成分,米歇尔因难以从淋巴结获足够量的纯化淋巴细胞,转而研究可大量获得的白细胞,其来源为外科诊所绷带上的脓。
1869 年,米歇尔离开图宾根 Hoppe-Seyler 的实验室到莱比锡,在那里写好论文于当年投稿给 Hoppe-Seyler 主编的杂志。 Hoppe-Seyler 以前的学生 Otto Liebreich 于 1865 年曾经发表过一篇文章,号称从脑中分离到新的物质 protagon ,一度得到 Hoppe-Seyler 的支持,结果是错的。 Hoppe-Seyler 因此担心再有学生发现新物质是乌龙事件。直到自己、两位学生( Pál Plósz , 1844-1902 和 Nikolai Nikolaevich Lubavin )重复米歇尔的实验后, Hoppe-Seyler 才于 1871 年在其主编的医学化学杂志同时发表五篇核素的文章,首先是米歇尔的“脓细胞的化学组成”( Miescher , 1871a ; Dahm , 2008 );其次是 Plósz 验证核素只存在于(鸡和蛇的)有核红细胞、而不存在于(牛的)无核红细胞( Plósz , 1871 );第三篇为 Lubavin 在奶酪中发现核素( Lubavin , 1871 );第四篇为 Hoppe-Seyler 完全肯定米歇尔的工作,并验证核素的磷含量高( Hoppe-Seyler , 1871 );第五篇为 Miescher 后投稿的一篇报道他在蛋黄中发现核素( Miescher , 1871b )。虽然这些文章相当稳固地验证了 Miescher 的发现,曾有几十年还继续争论 Miescher 发现是是否真的新物质( Lamm, Harman and Veigl , 2020 )。
德国科学家 Richard Altmann ( 1852-1900 )改进了核酸制备方法,产物无蛋白质,于 1889 年提出核酸的名词( Altmann , 1889 ),米歇尔认为核酸和核素相同,无需改名。
以化学分析为开端的核酸研究,起初不是为了特定生物功能的分子基础。 Hoppe-Seyler 认为发现细胞核的物质很重要,米歇尔认为自己发现的新物质其重要性不亚于蛋白质。米歇尔发现精子中有核素后,提出“如果单个物质可以是受精的特异原因的话,那么无疑首先应该考虑的是核素”。但他又觉得不太可能是一种物质,其原因之一是核素好像不可能有很大的多样性,难以解释个体性状的多样性( Dahm , 2005 )。 3-1-2 核酸的化学分析 1872 年, Hoppe-Seyler 在斯特拉斯堡大学建立了世界第二个生理化学(生物化学)系。
当年, Albrecht Kossel ( 1853-1927 )入斯特拉斯堡大学,听过 Hoppe-Seyler 的生理化学和病理化学课。 1877 年 Kossel 毕业于 Rostock 大学并考完行医执照后,加入 Hoppe-Seyler 的实验室, 1879 年开始发表有关核素的研究( Kossel , 1879 ; Jones , 1953 ), 1883 年到柏林大学工作。
3-1-3 核酸的化学结构
1901 年, Levene 发现不同来源的核酸不是都含 4 种嘌呤、而只含 A 和 G 两种。 1906 年, Steudel 也同意胸腺核酸只含两种嘌呤,且等分子数( equimolecular )。 C 和 T 两种嘧啶不是嘌呤的衍生物而是核酸所含的原始碱基,也是二十世纪初经过争论和实验所验证( Levene and Bass , 1931 )。 1903 年, Levene 发现酵母核酸含 U 不含 T 。 1909 年, Levene 认为酵母核酸含两种嘌呤、两种嘧啶。
1914 年,德国的 Robert Feulgen ( 1884-1955 )发现 DNA 在溶液中通过盐酸(暴露出 DNA 的醛基)和 Schiff 试剂(品红亚硫酸,可与醛基反应)两步可显紫红色, RNA 不能显色,后称 Feulgen 反应( Kasten , 2003 )。
Schultz and Caspersson 还观察到果蝇唾液腺多线染色体条带变化后核酸含量变化、果蝇卵母细胞染色体数量变化可以改变核酸含量( Caspersson and Schultz , 1938 )。
Caspersson 与同事 Einar Hammarsten ( 1889-1958 )合作分析染色体的核酸和蛋白质组分,用蛋白酶消化蛋白质后得到高纯度的核酸( Caspersson , Hammarsten and Hammarsten , 1935 )。他们观察到果蝇多线型染色体条带与核酸的关系非常逼近核酸与遗传的关系。
Hammarsten 和 Caspersson 发现 DNA 不是短链、而是长链,分子量很大( 50 万到 100 万),所含嘌呤环和嘧啶环的平面与链的长轴垂直( Signer, Caspersson, Hammarsten , 1938 )。
英国 Leeds 大学纺织物理实验室的 William Astbury ( 1898-1961 )和研究生 Florence Bell ( 1913-2000 )通过 X 线衍射分析发现垂直于长轴的两个核苷酸之间距离为 3.34 Å ( Astbury and Bell , 1938a ),他们还提出了第一个核酸结构的模型( Astbury and Bell , 1938b )。
至 1940 年代初期,确切知道 DNA 存在于细胞核的染色体上。不过,染色体上即能检测到 DNA 、也能检测到染色体上的 RNA 和蛋白质,并不能仅仅由亚细胞定位确定 DNA 是遗传物质。 3-3 遗传物质是蛋白质还是核酸? 染色体既含核酸、也含蛋白质,携带遗传信息的分子究竟是什么 ?
二十世纪上半叶,已知蛋白质很重要。十九世纪提出酶为生物催化剂的概念,到二十世纪初争论酶是蛋白质还是其他分子。因研究叶绿体而获 1915 年诺贝尔化学奖的德国犹太科学家 Richard Willstätter ( 1872-1942 )认为酶是蛋白质制备中的其他污染物质。其他科学家的工作,特别是 1926 年美国 Cornell 大学的 James Sumner ( 1887-1955 )和 1930 年洛克菲勒医学研究所的 John Northrop ( 1891-1987 )分别获得结晶纯的尿素酶和胃蛋白酶,证明酶的分子本质是蛋白质。在这样的背景下,已知染色体有蛋白质和核酸时,很多人怕再次犯低估蛋白质重要性的错误( Judson , 1979 )。
对细胞核的核酸与蛋白质都有研究的 Kossel 于 1910 年因为其蛋白质部分的工作而获奖,他于 1912 年发表的文章称要从蛋白质的化学特性理解发生细胞传递种系特异性( Kossel , 1912 )。核酸专家 Walter Jones 称“生理化学家公认所有核酸与酵母和胸腺核酸之一相同”( Jones, 1914 )。 Levene 认为所有种属器官、组织来源的核酸结构不变,没有个性,没有特异性,不可能是孟德尔性状的携带者( Levene, 1917b )。细胞生物学家 Edmund Wilson 在其权威教科书认为遗传物质是蛋白质不是核酸( Wilson, 1925 )。四核苷酸假说到 1931 年比较强调四种核苷酸等分子数( Levene and Bass, 1931 ),在 Signer, Caspersson and Hammarsten ( 1938 )确定 DNA 分子量很大、是很长的链以后,仍未及时改变核酸像淀粉一样不太可能携带信息的错误观念。 用染色确定 DNA 存在于细胞核中的 Caspersson 、 Hammarsten 、 Brachet 皆未提出核酸是遗传的物质基础。 Caspersson 认为染色体中的蛋白质可能是遗传物质( Caspersson , 1936 )。
Jack Schultz 试图区分蛋白质和核酸哪一个携带遗传信息。 1941 年 Schultz 认为按遗传学预计的基因应该是线性、有特异性、存在于染色体上、能自我复制、能影响细胞的合成代谢,而核酸与蛋白的复合体( nucleoprotein )符合这些条件、应该是基因的物质基础( Schultz , 1941 )。他在分别讨论染色体的核酸和蛋白质时,认为蛋白质确实有特异性,而核酸是否有特异性尚不清楚:虽然一般以为核酸单调,他指出当时分析过结构的核酸只有来源于胸腺的,不能排除不同细胞的核酸有特异性的可能性。 1943 年,他指出病毒肯定有基因,从病毒、细菌到高等动植物都有核酸和蛋白质复合体,而它们都能复制,所以细菌是否有细胞核并不重要,有核酸和蛋白质复合体为基础的基因。他依据已知三种含氨基酸不同的烟草镶嵌病毒( TMV )所含核酸在当时检测显示很恒定,提出应该是蛋白质给予病毒特异性、而核酸不能( Schultz , 1943 )。最接近提出核酸是遗传物质基础的 Schultz 因当时检测手段的限制退而认为蛋白质是遗传物质。 3-4 肺炎球菌的分型和分类
细菌性肺炎长期困扰人类,肺炎可以通过空气传染,其流行为国家所关注。在抗生素应用以前常导致死亡,二十世纪初美国每年因肺炎去世逾 5 万人。即使现在全世界每年也有上亿肺炎患者,肺炎是疾病导致儿童死亡的最大原因,每年近百万 5 岁以下儿童死于肺炎( Henriques-Normark and Tuomanen, 2013 )。 1918 年,著名内科医生 William Osler ( 1849-1919 )称肺炎为“人类死亡的罪魁祸首”。
1881 年,美国细菌学家 George Sternberg ( 1838-1915 )和法国细菌学家巴斯德分别发现肺炎球菌( Streptococcus pneumoniae )( Sternberg, 1881; Pasteur, 1881 )。 1884 年,德国的犹太医生 Albert Fränkel ( 1864-1938 )证明肺炎球菌为大叶性肺炎的致病菌。
以抗原性( antigenicity )对肺炎球菌进行分型,原因是二十世纪初治疗肺炎是用抗血清(它含抗体,免疫见第七章),而治疗不同抗原性的肺炎球菌需要不同的抗血清,含不同抗原的肺炎球菌与不同的抗体反应。德国细菌学家 Friedrich Neufeld ( 1869-1945 )提出这些抗体既可抑制特定类型的肺炎,又可用来将肺炎球菌分成 I 、 II 、 III 型( Neufeld and Händel, 1909 , 1912 )。
美国洛克菲勒研究所附属医院的 Alphonse Dochez ( 1882-1964 )发现肺炎球菌还有 IV 型,且 IV 型中还有多种( Dochez and Gillespie, 1913 )。 1913 年 Oswald Avery ( 1877-1955 )加入洛克菲勒, 1917 年他与 Dochez 等发现 IV 型更多种类( Avery et al. , 1917 )。 1922 年,英国卫生部病理实验室的 Frederick Griffith ( 1879-1941 )发现 IV 型中至少有 12 种不同的类型( Griffith , 1922 )。 I 型和 II 型常致病强, IV 型致病弱、存在于有些正常人的口中, IV 型内不同株的差异较大、有些也有致病性。一般来说,一种肺炎球菌只含这四型的一种抗原。
不同抗原型的肺炎球菌因何不同? 1917 年, Dochez 和 Avery 报道肺炎球菌的抗原不是肺炎球菌细胞破裂后从细胞内掉到细胞外的物质,而是细菌表面的物质,可溶于培养液和体液( Dochez and Avery , 1917a )。他们曾误认为是蛋白质( Dochez and Avery , 1917b )。这些研究由 Dochez 开始,其后合作,一战以后 Dochez 入伍赴法国( Dubos , 1976 )。 1918 年从美国 Kansas 首先爆发所谓“西班牙”流感带来的全球恐慌(最后估计感染 5 亿人,死亡数千万到一亿), Avery 与洛克菲勒医院都研究流感病毒。
1922 年,几经劝说后,化学家 Michael Heidelberger 加入 Avery 的肺炎研究( Heidelberger , 1977 )。他和 Avery 实验室其他人从 1923 年至 1934 年一系列实验阐明肺炎球菌分型的抗原不是蛋白质、而是多糖( polysaccharide )(如: Heidelberger and Avery, 1923; Avery and Goebel, 1933; Goebel, Avery and Babers, 1934 )。这些抗原为细菌细胞荚膜的完整性所需,也就对肺炎球菌的致病性重要。 Avery 等的研究是免疫化学的重要工作。
Heidelberger 和 Avery 于 1923 年提出多糖、而非蛋白质决定细菌抗原特异性,在当时很不为大家接受,但到 1932 年后几乎每年因此获得诺贝尔奖提名( Reichard, 2002 )。 3-4-2 肺炎球菌类的转换
细菌的类型能否变化? 1880 年,巴斯德发现禽霍乱体外培养后致病性降低。 1887 年,细胞免疫学创始人、俄国的 Ilya Metchnikoff ( 1845-1916 )发现炭疽杆菌在抗血清中培养后致病性降低。 1915 年南非的 AR Friel 发现肺炎球菌在抗血清培养后降低致病性并改变抗原性。 1916 年, Avery 实验室的研究生 Laura Stryker 发现肺炎球菌的致病性经抗血清培养后下降,而进入动物体内可以恢复( Stryker, 1916 )。 1921 年,伦敦 Lister 研究所的 Joseph Arkwright ( 1864-1944 )总结他研究的几种肠道细菌,同一种细菌不仅有致病性不同的类,而且形态不同:致病性强的表面形态光滑( smooth )为 S 类、致病性弱的表面粗糙( rough )为 R 类( Arkwright, 1921 )。 Arkwright 提出这些差别是遗传突变所致, S 和 R 类的存在多寡为达尔文的自然选择所定。
1922 年, Griffith 向英国卫生部报告 1920 年至 1922 年 150 例大叶性肺炎病人中肺炎球菌分型的情况( Griffith , 1922 )。 1923 年, Griffith 向卫生部报告,致病的表面光滑( S 类)与不致病的表面粗糙( R 类)有不同抗原性,可以分别有抗 S 的抗血清和抗 R 的抗血清。在体外培养肺炎球菌时如有抗血清,肺炎球菌的致病性和形态会改变,从 S 类变成 R 类,还观察到 R 类变成 S 类( Griffith, 1923 )。
1925 年,洛克菲勒的 Hobart Reimann ( 1897-1986 )验证在血清或胆盐、甚至一般培养基中培养 I 型 S 类的肺炎球菌后,致病的 S 类细菌有些变成 R 类,失去致病性、改变形态和抗原性,但在他的实验中 R 类无论在体外还是动物体内都不能变成 S 类( Reimann , 1925 )。霍普金斯大学的 Harold Amoss ( 1886-1956 )也验证了 Griffith 的结果:致病类的 I 型肺炎球菌,可以在体外培养变成不致病类;但 Amoss 未观察到不致病类回复为致病类( Amoss , 1925 )。因为 Reimann ( 1925 )、 Amoss ( 1925 )用了分离的单菌落做实验,较 Stryker ( 1916 )和 Griffith ( 1923 )更有说服力,证明单个 S 类的菌变成 R 菌、而不是最初 S 类菌落中混有 R 菌个体。 Reimann 还发现有些型的肺炎球菌也可以在动物(如兔、豚鼠、马,但非狗)体内从 S 类变成 R 类( Reimann , 1927 )。 3-5 肺炎球菌型间转化实验 1928 年, Griffith 在《卫生学杂志》上发表细菌转化的论文( Griffith, 1928 )。首先,他分析了 1920 年至 1927 年的流行病资料,发现如果将病例分成三个时间段( 1920 至 1922 、 1922 至 1924 、 1924 至 1927 ),那么随着时间推移,感染 I 型和 III 型的人数无规则性变化,但 II 型的减少(从 32.6% 变为 7.4% )、 IV 型的增多( 30.0% 变为 53.7% )。
Griffith 从 1922 年一位含多型肺炎球菌之病人的痰中获得 I 型肺炎球菌,接种老鼠可以致病,从老鼠中获得肺炎球菌再接种下一群老鼠,这样系列传代( serial passage ),发现后来可以出现 IV 型的肺炎球菌,从而显示 I 型可以变成 IV 型。他再从多位病人获得 I 型肺炎球菌、在老鼠接种验证可以变成 IV 和 III 型,从多位病人获得 II 型肺炎球菌、在老鼠可以变成 III 型。
Griffith 认为已有证据还不足以区分型变与多重感染两种假说,需要继续实验。
他发现,一般来说无论肺炎球菌依据抗原分型是哪种( I 、 II 、 III 或 IV ),都有致病的 S 类和不致病 R 类。无论哪种抗原分型,其致病的 S 类如果在老鼠传代接种,都可变成不致病的 R 类。也有两种方式可在体外培养让 S 类变成 R 类:一种是将某型的 S 类细菌(如 I 型的 S 类)在相应的抗血清中培养(如含 I 型抗血清),其后可获同型的非致病菌(如 I 型的 R 类);另一方式是不加抗血清,在固体培养基中培养,传多代后也能从 S 类获 R 类。不过每次的菌株变化的情况不同、传代后的菌株稳定性也不同,有些变成 R 类后可以很快回复为 S 类,有些变成 R 类后很稳定、难以回复为 S 类。回复变化只能在同一抗原分型之内,如: I 型的 R 类可以变成 I 型的 S 类,而 I 型的 R 类不变成 II 型的 S 类。保存在冰箱但未被允许生长分裂的肺炎球菌不出现 R 类和 S 类之间的变化。
Griffith 用加热的 I 型 S 类菌与 II 型的 R 类菌共同注射老鼠时,可以致病,不过加热时的温度需要注意, 60 ° C 可以、而 100 °C 会灭活 I 型 S 类菌的转化活性。所以,在一定条件下不同抗原型的肺炎球菌,在加热失去致病性后,仍可将另一抗原型中无致病性的 R 类细菌转化为可致病的 S 类细菌。如果两类型都加热了,同时注射无致病性。 Griffith 用 60°C 和 100 °C 加热处理过其他型的 S 类肺炎球菌,然后检测其结果。他发现多数型的 S 类都能转变其他型的 R 类(如加热的 I 型 S 类变 II 型 R 类为 I 型 S 类、加热的 II 型 S 类变 I 型 R 类为 II 型 S 类、加热的 III 型 S 类变 I 型 R 类为 III 型 S 类、加热的 I 型 S 类变 IV 型的 R 类为 I 型 S 类),少数转化不行(如 IV 型的 S 不能变 I 型的 R 为 IV 型的 S ,但能促进 I 型的 R 回复为 I 型的 S )。一型的 R 类加热后不能转化另一型的 R 类、也不能促进另一型的 R 类回复为 S 类。
Griffith 提出了转化的机理: S 类的菌含 S 物质, S 物质是蛋白质,它帮助制造细菌荚膜有抗原性的多糖。他当时认为, I 型的肺炎球菌同时有 I 型和 II 型的 S 抗原,只是 I 型的细菌含 I 型的 S 抗原多于 II 型的 S 抗原,而 R 类的 I 型细菌其 S 抗原大多数变成了 R 结构。在加热后的 I 型 S 类细菌提供 S 物质的情况下, II 型 R 细菌获得 I 型的 S 抗原、获得致病性。也可因加热的 I 型 S 类菌含少量 II 型的 S 抗原,后者转 II 型 R 类菌 荚膜 导致 II 型 R 类菌回复为 II 型 S 类菌。
Griffith 的解释是从细菌抗原和致病性的角度,没有考虑遗传突变、回复突变和基因转导。但他一步一步从病例观察到提出和证明细菌转化,做出了关键的贡献。可惜, 1941 年 Griffith 和同事一道逝于德国飞机轰炸。 3-6 Avery 实验室的主线:诊断、治疗和预防 Avery 实验室主要研究目的是在理解肺炎球菌的基础上,帮助诊断、治疗和预防细菌性肺炎,这些多数达到了、但时间不同,有些在几十年后他的学生的学生做到。
在理论方面, 1916 年 Dochez 和 Avery 提出“抗生长免疫”的概念,认为抗体抑制肺炎球菌细胞内的酶活性,从而抑制代谢( Dochez and Avery , 1916 )。此理论当时就不为洛克菲勒内部其他学者(包括院长)所认同。一般认为抗血清导致细胞凝集后继发细菌生长减慢、代谢降低。 Avery 这次错误使他以后特别谨慎。
在诊断方面, Avery 实验室从 1923 至 1934 年阐明细胞荚膜多糖抗原后,用细胞荚膜多糖抗原分型仍为今天追踪肺炎球菌的方法,到 2013 年知道有 93 型( Henriques-Normark and Tuomanen , 2013 ),所以 Avery 的研究对诊断有帮助。
在预防方面, 1914 年 Wright 等就曾为南非矿工制造疫苗以预防肺炎 (Wright et al. , 1914) 。 Avery 的学生 Colin MacLeod 有独立实验室后于 1945 年制造了有效的针对多糖的治疗性抗血清( MacLeod et al. , 1945 )。不巧正好抗生素被迅速推广,而青霉素成为治疗肺炎的标准药物,多糖的抗血清未得应用,而且很多人以为无需疫苗预防。但是, 1964 年 MacLeod 的学生 Robert Austrian ( 1916-2007 )发现细菌性肺炎仍有很高致死率( Austrian and Gold , 1964 ),重新提出研发和使用疫苗的必要性。 Austrian 再度依据多糖抗原发明了多效价疫苗,成功地预防儿童肺炎( Austrian et al. , 1976 ),这一方法也是迄今肺炎疫苗的主流,所以在预防方面 Avery 本人播种而结果于他去世二十多年后他的学生的学生。
Avery 实验室有心栽花是诊断、治疗、预防,有些开了、有些没开、有些很晚开了。 3-7 Avery 实验室的支流:转化和遗传 Avery 实验室做转化实验初为无心插柳,最后成荫、成林 … 到今天是漫山遍野的万紫千红。
细菌转化实验是 Avery 实验室的支流。发现了现象最初不知其意义多大,断断续续地追踪,但最后意义远超出细菌性肺炎一种传染病,而是整个生物学的革命,也改观了传染病和非传染病的诊断、治疗和预防。
1916 年, Avery 实验室的 Stryker 就知道致病性和非致病性肺炎球菌的变化( Stryker , 1916 )。
1923 年 Griffith 第一次初步报道致病性和非致病性的肺炎球菌是 S 和 R 类后, 洛克菲勒医院的 Reimann 于 1925 和 1927 年重复了 Griffith 的研究结果( Reimann , 1925 , 1927 )。
1928 年 Griffith 经典的转化实验发表前,德国柏林细菌研究所的 Neufeld 访问 Griffith 实验室得知其结果并进行了重复( Downie , 1972 ),同年 Neufeld 发表验证文章( Neufeld and Levinthal, 1928 )。 1927 年 10 月离开纽约到洛克菲勒基金会支持的北平协和医学院内科任副教授的 Reimann ,很快在北京继续肺炎研究, 1928 年 10 月提交的文章于 1929 年发表( Reimann , 1929 ):他验证了 Griffith 的结果,而且用 Reimann 于 1925 年发现的不能自身在体外或体内变成 S 类的 I 型 R 类细菌,用 Griffith 的方法可以被转化为 S 类细菌,其抗原型取决于用来做转化的加热处理过的 S 类细菌的抗原型( I 、 II 、 III )。
Griffith 文章发表后, Avery 对其有怀疑。那几年他自己的注意力集中于寻找降解荚膜多糖的分子。
Avery 实验室从英属加拿大区来的博士后 MH Dawson (1896-1945) 相信英国人 Griffith 的结果( Dubos , 1976 ),并在体内重复验证( Dawson , 1928 , 1930 ),但他试图在体外做转化实验未成功( Dawson , 1930 )。 1930 年 Dawson 搬到哥伦比亚大学有独立实验室后,与协和医学院赴美国进修的谢和平( 1895-1970 )在体外细胞培养的条件下进行转化实验,他们发现加热后的一型 S 类的细菌能在体外共培养时转化另一型 R 类细菌( Dawson and Sia , 1931 ; Sia and Dawson , 1931 )。但 Sia 与 Dawson 用肺炎球菌的提取物未能做成转化( Sia and Dawson , 1931 )。已知用来分型的抗原为多糖,而 R 类也有多糖的缺陷(才造成细胞荚膜缺陷),但把 S 类的多糖加到 R 类的细菌却不能将 R 类变成 S 类,所以转化物质不是多糖( Sia and Dawson , 1931 )。
Alloway 于 1932 年离开 Avery 实验室后, Edward Rogers 从 1932 到 1934 继续其研究。 1934 年,加拿大的 Colin MacLeod ( 1909-1972 )到美国加入 Avery ,他们继续试图从 S 类细菌的提取物中获得转化 R 类细菌活性物质。 Avery 自己也做一些实验( Dubos , 1976 )。
Avery 患 Graves 病引起甲状腺亢进, 1934 年做甲状腺切除术后短时休息, 1935 年 Avery 参与过转化实验。 1940 年 10 月 MacLeod 和 Avery 两人合作做提取转化因子的实验( McCarty , 1985 )。以前每次用几升细菌做提取的起始,现在他们用 36 升。为了离心这么多有致病性的细菌,专门请人改装了密闭房间放置离心机。他们于 1941 年 1 月 28 日第一次记录转化活性的粗提物中有少量 DNA (用二苯胺检测),而不仅有大量的 RNA 。 3 月 11 日 Avery 的记录表明,他试图先加热灭活肺炎球菌(这样先灭活了菌中可能降解转化物质的酶),再用脱氧胆酸钠破碎细胞制备提取,以便提高转化物质的产量。但 MacLeod 似乎有不同意见, 3 月 18 日他们两人同时做实验,比较原来方法和 Avery 先加热的方法,觉得先加热有优点,以后都先加热( McCarty , 1985 )。 Avery 给洛克菲勒的年度报告转化活性不为蛋白水解酶所降解、也不为 RNA 酶降解,因此不像是蛋白质或者 RNA 。当时有两个原因导致他们认为转化活性有可能是酯:几种含酯酶的生物制备可以灭活转化活性、能够抑制酯酶活性的氟化物可以抑制那些生物制备对转化活性的灭活作用( Dubos , 1976 ; McCarty , 1985 )。 1941 年 7 月, MacLeod 离开 Avery 实验室到纽约大学任微生物系主任。
摸索不同条件后, McCarty 和 Avery 综合为提取方法:培养细菌离心后置 65 o C 加热,用生理盐水洗(洗掉多糖),用脱氧胆酸处理,用乙醇沉淀获得纤维状物质(包括还存在的多糖、蛋白质和 DNA ),用 Sevag 的氯仿去除蛋白质,加 Dubos 的多糖酶( SIII ),降解多糖,直到用多糖抗体检测不出多糖,再次用 Sevag 方法氯仿去多糖酶(也是蛋白质),最后再用乙醇沉淀,这时被乙醇可以沉淀的多糖已经没有了,只剩 DNA 可以被乙醇沉淀,逐渐加入乙醇导致沉淀的 DNA 形成纤维状物质用搅棒收集。一般他们用 200 升细菌,可以得到 45 毫克的终产物。
1942 年 11 月和 12 月,他们得到的转化物质,元素分析其氮和磷含量都相同于 DNA ,并于 1943 年 2 月和 3 月重复。 1943 年 4 月 Avery 给洛克菲勒科学顾问委员会的报告中写道:转化因子 -- 核酸 — 可比为基因( gene ),它导致合成的终产物多糖为基因产物( gene product ) … 转化一旦发生可以不断传代的事实支持对转化的遗传理解( McCarty, 1985 )。 1942 年 10 月 Avery 到了 65 岁的退休年龄,预计 1943 年 6 月退休搬到田纳西州他弟弟 Roy Avery 附近, 1943 年 5 月, Avery 写信给弟弟说明为什么不马上搬,讲述了转化因子的工作:谁能猜到是 DNA… 是可预计和遗传的变化 — 遗传学家的梦想 … 听起来是病毒,可能是基因 (Dubos, 1976) 。
1943 年 5 月他们继续实验,得到产物的活性很强( 3x10 -9 克有作用)。请物理化学的同事 Theodore Shedlovsky ( 1898-1976 )做电泳实验,他们提取的转化物质只有一条带,且电泳后还有活性,进一步支持提纯的 DNA 分子在起作用。其后, Avery 还不放心,他们专门咨询了几位生化学家,其中一次是 Avery 、 MacLeod 、 McCarty 三人一同到当时还在纽约城外 Princeton 的洛克菲勒研究所分部见蛋白质化学专家、 1946 年诺贝尔化学奖得主 John Northrop ( 1891-1987 )和 Wendell Stanley ( 1904-1971 )。只在德国移民到洛克菲勒工作的蛋白质化学家 Max Bergmann ( 1886-1944 )处得到有用的信息:所谓无论哪里来的 DNA 都一样的说法是胡说,如果它们是大的多聚物,完全可能有无穷的组合,导致化学结构不同而元素组成相同。 McCarty 于 7 月补了实验,证明被转化的细菌中可以提取到转化因子( McCarty , 1985 )。
Avery 在缅因州度假写文章, McCarty 写实验方法, MacLeod 写前期的结果, Avery 提出是否按资历、与课题相关时间排作者顺序也不一定合适,可能按字母顺序, McCarty 说两种方法的结果都是一样的: Avery 、 MacLeod 、 McCarty ,同意。 1943 年 10 月 Avery 向洛克菲勒研究人员宣读研究结果,当时只有鼓掌、无人提问。 11 月 1 日 Avery 把稿件交给洛克菲勒主板的《实验生物学杂志》的主编 Peyton Rous ( 1879-1970 ), Rous 对稿件有修改建议,包括要求删除“核酸的重要性能否与氨基酸链相媲美成为一个问题”。 1944 年 2 月 1 日文章出版。 3-9 转化因子( Transforming Principle ) 1944 年 Avery 、 MacLeod 、 McCarty 共同发表论文( Avery, MacLeod and McCarty , 1944 ),一般认为与 Watson 和 Crick ( 1953 )并列为二十世纪生物学最重要的文章。
Avery-MacLeod-McCarty 开篇高屋建瓴,完全不同于前面一系列限于肺炎球菌的文章,而是将问题提高到遗传的分子机理层面。首先指出很多生物学家试图用化学的方式在高等生物诱导特异、可预见、能够遗传的变化。其次认为微生物中可以实验诱导、重复发生的、可遗传的特殊变化最好的例子是肺炎球菌型的转化实验。其后他们简介 Griffith 的实验结果,以及 Dawson 、 Alloway 等的进一步工作。
Avery-MacLeod-McCarty 的研究目的是找有转化活性的因子( principle ),并初步确定其化学性质、化学分子的类型。达到宏大的目标需要能解决问题的具体方法。用来获得提取物的是 III 型 S 类菌株( A66 ),与被转化的 II 型 R 类有很大的形态和大小差别。用于检测转化活力的细菌,需不易自身转变、而同时对转化活性有反应,这就是 MacLeod 用 II 型 S 传 36 代后获得的 R36A 菌株。他们注意到即使是 R36A 还可衍生不同的菌株,有些可被转化、有些不能,而 R 菌破损释放的酶能降解 S 菌的转化活性,所以需选生长良好的 R 以免检测的不稳定。转化实验用的培养液, MacLeod 用炭可去除不稳定性。以前谢和平与 Dawson 认为血清提供抗 R 的抗体, Avery-MacLeod-McCarty 认为与抗体无关,但仍需血清的某种其他成分,因血清含灭活转化活性的酶,需将血清加热到 60 °C ,灭活此酶。他们采用 Sevag (1934) 发明的方法用氯仿去除蛋白质、接着用乙醇多次沉淀 。 用 Avery 实验室发现的降解多糖的酶去除多糖,再逐滴用乙醇达到临界浓度沉淀活性物质,得到絮状纤维沉淀,用小棒搅出来再溶解。乙醇沉淀 DNA 的方法是 Mirsky 告诉 McCarty ( Mirsky and Pollister, 1942 ; Darnell , 2011 )。
提取的活性物质在生理盐水中很稳定可保存数月、但在水中不稳定, 65 °C 一小时不能灭活 。 用两种检测蛋白质的方法(双缩脲和 Millon 检测)结果显隐性,用 DNA 的检测方法( Dische 氏二苯胺反应)显强阳性, RNA 检测方法( Bial 氏地衣酚反应)显弱阳性,但他们用同样浓度的提取的胸腺 DNA 看到用地衣酚反应也显弱阳性。反复用乙醇和乙醚提取不降低活性,推测活性分子不是脂肪。
他们请同事对四批提取的转化物质进行了元素含量检测,含 C 约 34% 、 H 约 3.8% 、 N 约 15% 、 P 约 9% ,都接近纯化的胸腺 DNA 中元素的含量( 34% 、 3.2% 、 15% 、 9% )。 N/P 比例为 1.58 到 1.75 ,也接近 DNA 预计值 1.69 。
他们从洛克菲勒的酶专家 Northrop 和 Kunitz 获结晶纯的胰蛋白酶、糜蛋白酶和 RNA 酶,它们都不能灭活转化因子,说明转化活性非 RNA 、也非这些蛋白酶能降解的蛋白质。
他们从几种动物组织制备粗提物, a 狗小肠粘膜、 b 兔骨磷酸酶、 c 猪肾磷酸酶、 d 肺炎球菌自溶物、 e 狗和兔血清。在酶活性方面,他们观察到这些粗提物除 d 外都有磷酸酶活性、除 c 外都有甘油三丁酸酯酶活性、除 b 和 c 外都有 DNA 酶活性(检测 DNA 酶活性的 DNA 由洛克菲勒的 Mirsky 提供)。他们发现只有 a 、 d 和 e 能够灭活转化物质,比较磷酸酶、酯酶和 DNA 酶活性的相关性后,这些结果支持 DNA 是转化因子。
他们用不同温度和时间处理狗和兔血清,观察到热灭活 DNA 酶活性负相关于这些制备对转化因子的灭活。而温度灭活血清中甘油三丁酸酯酶的活性与转化活性无关。这些结果也与 DNA 是转化因子相一致。
他们试了一些化合物能否抑制灭活转化因子的酶,发现氟化钠有显著作用,它可以抑制所有已知来源(如肺炎球菌、狗小肠粘膜、胰腺、血清)的 DNA 酶的活性,也抑制这些来源 DNA 酶制备物对转化因子的灭活,进一步支持 DNA 与转移因子的相关性。
转化因子本身对 III 型抗血清无反应,不是 III 型的抗原本身,也就不是荚膜多糖。
他们请生物物理学家 Alexandre Rothen 分析,发现在超速离心中,转化物质显示均质性和非对称性,分子量约 50 万。电泳行为也显示类似核酸的一种分子。 UV 光谱显示吸收峰在 260nm ,也与核酸一致。
转化因子活性很强: 2.25 毫升溶液含 0.003 微克仍有活性,六亿分之一的比浓度。
在讨论中,他们说从 III 型肺炎球菌分离了 DNA 组分可以将 II 型衍生的无荚膜 R 类菌转化为完整荚膜的 III 型菌。肺炎球菌有 RNA 是 1938 年洛克菲勒的 ` 科学家所发现( Thompson and Dubos , 1938 ),而 1944 年前尚无人报道肺炎球菌的 DNA 。他们强调转化因子的化学性质不同于其导致产生的荚膜多糖。他们指出“本文所呈现的资料强烈提示核酸,至少是脱氧类型的,具有转化因子选择性作用所证明的不同特异性”。他们也知道细菌一旦被转化后,获得的性状可以传代,转化带来的变化“可预计、有型的特异性、可遗传”。
对转化的机理, Avery-MacLeod-McCarty 讨论了三种,其中第二种是遗传学家 Theodosius Dobzhansky ( 1900-1975 )提到的转化可能是遗传突变 ( “如果转化被描述为遗传突变 — 很难避免如此描述 — 我们就在面对特别处理导致特异突变的真实例子” ) ( Dobzhansky , 1941 ), Avery-MacLeod-McCarty 认为这是比拟转化因子是基因。
他们承认还可能有其他物质吸附在核酸上起作用。但如果确实能证明就是核酸起转化作用,那么核酸应该具有尚未确定化学基础的生物学特异性。
全文的结论:出示的证据支持脱氧类的核酸是 III 型肺炎球菌转化因子的根本单位( the evidence presented supports the belief that a nucleic acid of the desoxyribose type is the fundamental unit of the transforming principle of Pneumococcus Type III )。
Avery-MacLeod-McCarty ( 1944 )的文章是 1943 年 11 月提交,措辞含蓄可能是因为 Avery 早期错过一次而在提出多糖抗原时也经历过争议有经验。而在 1943 年 5 月 26 日 Avery 在给自己弟弟的信中,他清楚地说明转化是可以遗传、可以预计的变化,可能是基因( Dubos , 1976 )。
1945 年,英国神经药理学家、 1936 年诺贝尔奖得主 Henry Dale ( 1875-1968 )在给 Avery 发英国皇家学会的 Copley 奖时,提到 Avery 发现了基因( Dale , 1946 )。而诺贝尔奖委员会受其研究核酸的成员 Hammarsten 影响直到 1952 年以前都不认同 DNA 是遗传的物质基础( Reichard , 2002 )。
1943 年 Avery 到了强制性退休年龄,但二战期间美国怕出现战时传染病而请微生物学家为国家工作,洛克菲勒医学研究所也给 Avery 荣誉研究员、实际继续主持实验室。终生未娶的 Avery 于 1947 年离开纽约去田纳西州,与任教 Vanderbilt 大学微生物系的弟弟 Roy Avery ( 1885-1971 )比邻而居过退休生活, 1955 年去世。 3-10 对新概念的反应 当时的科学家如何理解 1944 年 Avery 、 MacLeod 、 McCarty 的文章?知道 Avery-MacLeod-McCarty 工作的科学家面临三种很重要的的选择:不理不睬、检测真伪、走下一步。
1949 年, McCarty 应邀到 Johns Hopkins 大学医学院学术演讲,正好安排在一位晕船研究者后,大批听众在听完晕船报告后离开,只有 35 人耐心听 McCarty 讲 DNA 与细菌转化( McCarty, 1985 )。 1950 年,为遗传学五十周年举行纪念的学术活动中, 26 位撰稿人只有一位提到 Avery 的 DNA 工作( Dunn , 1951 ),而这位还是 Avery 的同事 Mirsky ,他并不认为 Avery 的工作证明了遗传物质是 DNA 而非蛋白质。 3-10-1 很难排除 DNA 之外完全无蛋白质
十九世纪核酸的生物化学权威是 Miescher 和 Kossel ,二十世纪 1940 年以前核酸的生化权威是洛克菲勒的 Levene ,而 1940 和 1950 年代核酸生化的权威为 Alfred Mirsky ( 1900-1974 )。 Mirsky 于 1927 年加入洛克菲勒医学研究所前期研究蛋白质(特别是血红蛋白), 1940 年代后主要研究细胞核的核酸和蛋白质。 Levine 和 Mirsky 皆低估核酸的重要性。
Mirsky 和 Pollister 主要依赖不同浓度的 NaCl ,从精子、肝、胰、肾等将细胞核中核酸和蛋白质的复合体(时称“核蛋白” nucleoprotein )与细胞质分开,获纤维状物质( Mirsky and Pollister , 1942 )。他们还能分开复合体的核酸和蛋白。 Mirsky 改进方法后不仅可从动植物等真核细胞获得细胞核的核蛋白,且可从原核生物(细菌)中提取核蛋白。他们提出所有细胞都有 DNA 和组蛋白,在组蛋白以外染色体还含其他蛋白质( Mirsky and Pollister, 1946 )。他们用来提取核酸和蛋白质的细菌正是 Avery 给他们的 III 型肺炎球菌,并提到 Avery-MacLeod-McCarty 提取转化因子的方法部分参考了 Mirsky 和 Pollister 方法( Mirsky and Pollister, 1946 ),与 McCarty 后来的回顾一致( Darnell, 2011 )。 Mirsky 和 Pollister ( 1946 )指出核蛋白的纤维状是因多聚体的 DNA ,而非 1937 年诺贝尔奖得主 Albert Szent-Györgyi ( 1893-1986 )等误认为与肌球蛋白( myosin )相似。他们也用提取的核蛋白(当时他们还曾称为 chromosin )验证了 Avery-MacLeod-McCarty 的转化实验,但他们指出很难获得完全不含蛋白质的纯 DNA ,而当时的方法无法检测出低于 2% 的蛋白质,所以不能断定转化活性是 DNA 、还是蛋白质,他们认为还需一步一步去除蛋白质、同时检测转化活性( Mirsky and Pollister, 1946 )。他们曾认为可以用氯仿 - 辛醇反复 6 、 7 次去除蛋白质、再用乙醇沉淀后获纯化的 DNA ( Mirsky and Pollister, 1946 ),但他们未进一步用自己提出的方法来验证转化因子是核酸还是蛋白质。 Mirsky 多次较强烈公开表示反对只有 DNA 而无蛋白质参与转化。
1947 年, Mirsky 和同事在提取染色体后确定 DNA 占其质量的 37% 和蛋白占 59% ( Mirsky and Ris, 1947 )。他们继而发现同一生物的不同体细胞中 DNA 含量相同,而体细胞 DNA 含量是精子 DNA 的两倍。因为体细胞是二倍体有两套染色体、而精子是单倍体,所以 DNA 含量与染色体数量相关, Mirsky 也相信 DNA 可能是遗传物质的一部分,但并不表明基因只有核酸没有其他( Mirsky and Ris, 1949, 1951 )。 Mirsky 至 1951 年仍不信仅由 DNA 而无蛋白质携带遗传信息( Mirsky , 1951 )。
Mirsky 与 Avery 的关系因为前者在私下和公开批评 Avery-MacLeod-McCarty 而恶化, Avery 还在洛克菲勒工作的最后几年,他们之间断绝了直接交流( McCarty , 1985 )。
Avery-MacLeod-McCarty ( 1944 )认为转化因子是 DNA 非蛋白质的证据之一是 DNA 酶( DNase )可以降解转化因子,而蛋白酶、 RNA 酶不能。但是,当时用的 DNase 并非纯化的 DNase ,而是很粗糙的制备,含很多其他的酶, Avery-MacLeod-McCarty 只比较了这些制备物含磷酸酶、酯酶和 DNase 的相对分布,所以他们也承认有关转化因子的酶学证据是间接的( McCarty and Avery, 1946a )。实际上, DNase 不过是 1940 年才由美国国立健康研究院癌症研究所的 Jesse Greenstein ( 1902-1959 )和 Wendell Jenrette 所发现、 1943 年命名,要到 1948 年洛克菲勒的 Kunitz 才能获结晶纯的 DNase ( Kunitz , 1948 )。 1944 年 Avery-MacLeod-McCarty 文章发表时,全世界谁也没有纯化的 DNase 。
1944 年, McCarty 到当时在 Princeton 的洛克菲勒研究所的分部,跟 Kunitz 学习分离结晶蛋白质。 Kunitz 跟 Northrop 成了专家,不仅结晶了 RNA 酶,还获得了结晶纯的好几个酶。 McCarty 学会了他的技术, Kunitz 能结晶的五个酶, McCarty 回到纽约的分部也都能结晶,只有 DNase 虽然纯化度提高了、但不能结晶。 1946 年 McCarty 发表论文,报道获的相当纯化 DNase 、活性很高,不含 RNA 酶、酯酶、磷酸酶、但含很低的蛋白水解酶活性( McCarty, 1946a )。镁离子 (Mg ++ ) 和锰离子 (Mn ++ ) 可激活、柠檬酸可抑制 DNase ,特异的抗血清也可抑制 DNase ( McCarty, 1946a )。用经过一定纯化制备的 DNase ,他们再检验转化因子是否 DNA ( McCarty and Avery, 1946a )。这次,他们也观察了相关性。镁离子激活 DNase 活性的作用可以被柠檬酸抑制,而锰离子激活 DNase 活性的作用不被柠檬酸抑制。而这些作用都与柠檬酸能否抑制镁离子和锰离子对转化活性的作用相关,支持转化因子是 DNA 。对 DNase 制备物还含微量蛋白水解酶活性的问题,他们用稀释的方法予以排除。制备物在含蛋白质每毫升 0.2 毫克以上时可以检测到蛋白水解酶的活性,但他们稀释到蛋白质浓度低于每毫升 0.01 微克、直至每毫升含 0.0025 (甚至 0.00125 )微克时,还有 DNase 的活性和降解转化活性的作用,而这时无蛋白水解酶活性(需要浓度提高十万倍才有),这样的结果很难否定转化因子是 DNA 的可能性。
发现柠檬酸对 DNase 的抑制作用后, McCarty 和 Avery 再重新提取 III 型 S 类菌的转化因子,在提取过程中加柠檬酸,提高了转化因子产量五倍( McCarty and Avery, 1946b )。他们从 II 型和 VI 型肺炎球菌也找到了转化因子,对 II 型转化因子的分析也支持是 DNA 。
1946 年 Rollin Hotchkiss ( 1911-2004 )加入转化因子研究。 1948 年 Kunitz 获得结晶纯的 DNase 后, Hotchkiss 证明它可以灭活转化因子( McCarty , 1985 )。至 1949 年, Hotchkiss 可以做到提取的转化物质中蛋白质含量低于 0.02% 却仍有转化活性,而且在纯化过程中虽然蛋白质含量越来越低、但转化活性不降低,如果转化因子还是蛋白质,那就非常不同于其他蛋白质( Hotchkiss, 1952 )。 3-10-3 核酸的特异性和信息量
Levene 的“四核苷酸假说”导致误解:核酸单调无信息含量。
核酸生化权威如此,而在二战前后都研究核酸生物物理的英国科学家 William Astbury ( 1898-1961 )也认同四核苷酸假说 ( Astbury , 1947 )。
哥伦比亚大学的旅美奥地利犹太生物化学家 Erwin Chargaff ( 1905-2002 )受 Avery-MacLeod-McCarty ( 1944 )结果的激动,从脂类研究转向核酸研究。他实验室用生化方法检测不同组织、细胞来源的 DNA 是否含等量的四种核苷酸。他们将 1944 年发明的纸层析方法用于分开嘌呤和嘧啶等碱基、用紫外线分光光度仪检测碱基,提高了灵敏性与可靠性( Vischer and Chargaff, 1947, 1948 )。几年内,他们很快发现 A:G:C:T 不等于 1:1:1:1 ,推翻了单调重复的四核苷酸假说、支持 Avery-MacLeod-McCarty 提出的核酸可能具有化学特异性( Chargaff et al ., 1949; Vischer et al. , 1949 )。有了 DNase 以后,他们将牛胰 DNA 降解为多个片段,发现不同片段含 A 、 G 、 C 、 T 量不同,从而提出 DNA 链中核苷酸有非单调的排列( Zamenhof and Chargaff, 1950; Tamm et al ., 1953 )。
认同 Avery-MacLeod-McCarty ( 1944 )工作有很大意义的科学家也认为当时还不能完全接受 DNA 是遗传物质。因为即使转移因子只含 DNA 而无蛋白质, Avery-MacLeod-McCarty ( 1944 )的结果还可以有多种解释, 1958 年的诺贝尔奖获得者 Joshua Lederberg ( 1925-2008 )在 1956 年总结为:转化因子 1 )不是遗传物质,而是一种突变剂; 2 )多糖合成的自身催化剂; 3 )能够诱导宿主细胞荚膜合成反应的细菌病毒; 4 )细胞质基因或形态发生源; 5 )未进入细胞起作用; 6 )细菌遗传机构中能检测的一部分; 7 )特有的机制、无普遍性( Lederberg, 1956 )。
1946 年, McCarty 在美国细菌学会获奖时已经说明转化因子的作用是可遗传的,被转化的细菌不仅性状传代,而且从后代提取到的转化活性可以高于最初用的转化活性,说明转化因子不仅仅能诱导荚膜多糖合成,而且能在细菌中自我复制,这些特性既与基因相似、也与病毒相似( McCarty and Avery, 1946b )。 所以 Lederberg 在 1956 年都没意识到他提的 7 点有很多可为 1946 年 McCarty 已知的结果所排除,而 Lederberg 还属于特别推崇 Avery-MacLeod-McCarty 者之一 。
几个实验解决了转化是否有普遍性的问题。 1947 年法国的 André Boivin 报道可用来自一种抗原性的大肠杆菌的 DNA 转化另一大肠杆菌的抗原性,他称为定向突变( directed mutation )( Boivin, 1947 )。 1949 年 Austrian 和 MacLeod 在肺炎球菌可同时做到三个性状的转化( Austrian and MacLeod, 1949 )。 1951 年 Hotchkiss 发现从青霉素抵抗的细菌可得 DNA ,将青霉素抗药性转给其他细菌( Hotchkiss, 1951 )。
DNA 可在多种细菌之间转化多种可以检测的性状,转化后的性状都可在代间遗传,从被转化的细菌的后代获得的 DNA 本身也有转化活性,证明 DNA 的作用之普遍性和可遗传性。 3-10-5 Hershey-Chase 实验
应该说 1946 年 McCarty 和 Avery 文章后, DNA 是转化因子的可能性非常大, 而 Hotchkiss ( 1952 )纯化的转化因子蛋白质含量低于 0.02% , 1951 年 Alexander 与 Leidy 用结晶纯的 DNA 酶可降解流感杆菌的转化活性就基本证明了 DNA 的转化因子。但如果要一直质疑,还可以说降解了 DNA 链后导致上面附着的微量蛋白质活性不稳定。要完全证明只有 DNA 是转化因子,需要确定某些基因的核苷酸序列、然后化学合成同样的序列、再用来转基因,而当时在知识上和技术上都不可能做到,只能依靠不断增强的外围证据。
1950 年代影响很大的工作是 Hershey-Chase 实验( Hershey and Chase, 1952 )。 Alfred Hershey ( 1908-1997 )研究细菌的病毒(噬菌体), 1950 年到冷泉港实验室工作, Martha Chase ( 1927-2003 )为其助手。噬菌体可以感染细菌,并在细胞内复制、细菌间传代。噬菌体外壳为蛋白质、内含 DNA 。 Hershey 和 Chase 用放射性同位素标记核酸和蛋白质, 32 P 用于追踪 DNA (所有 DNA 都含磷)、 35 S 用于追踪蛋白质(有些氨基酸含硫)。在噬菌体感染细菌几分钟后, Hershey 和 Chase 摇动培养将细菌与细胞外的噬菌体分开,再检测磷和硫分别多少进入细胞、多少留在胞外,结果发现 30% 的 32 P 留在细胞外、 80% 的 35 S 留在细胞外;代间观察发现, 30% 的 32 P 传代、少于 1% 的 35 S 传代。这一实验被认为提供了很强的证据表明 DNA 是遗传物质、蛋白质不是。如果要比较,当然这些结果在纯度上远不如 1946 年 McCarty 和 Avery 已经达到的程度,更不如 Hotchkiss ( 1952 )的程度。
Avery-MacLeod-McCarty 后续 研究的一个方面是以上 验证 DNA 是转化因子、并推广其意义,另一方面是刺激以后的发展。
1943 年,意大利裔美国犹太生物学家 Salvador Luria ( 1912-1991 )和德裔美国物理学家 Max Delbrück ( 1906-1981 )借助数学模型分析细菌对噬菌体抵抗性的统计规律,证明细菌可以自发出现遗传突变( Luria and Delbrück, 1943 )。 1941 年美国遗传学家 George Beadle ( 1903-1989 )与 Edward Tatum ( 1909-1975 )通过遗传突变研究红色面包霉( Neurospora )的生化反应( Beadle and Tatum, 1941 )确立一个基因一个酶的概念。 Tatum 于 1944 年和 1945 年研究了细菌( K12 大肠杆菌)的突变。
还在哥伦比亚大学念医学院的 Lederberg 从本科阶段就参加科学研究,其指导老师曾跟随 Tatum 用粗糙链胞霉。 1945 年 1 月, Lederberg 从一位研究生那里获 Avery -MacLeod-McCarty 全文,读后兴奋不已。他想用链胞霉研究转化,结果发现他们最初用的链胞霉突变种很容易自发回复,没做成他预计的实验,但发表了他第一篇论文。他再转向研究细菌是否有“性”。他的老师听说 Tatum 要来东海岸到耶鲁工作,建议他到 Tatum 实验室一道研究。 Lederberg 给 Tatum 写信提出他的研究目的:细菌的性重组( sexual recombination )。他们在耶鲁很快出了结果,发现细菌的性生活:一个细菌将信息给另一细菌( Lederberg and Tatum, 1946; Lederberg, 1947 )。细菌遗传学在 1950 和 1960 年代为遗传学的核心,其所用的细菌、发现的质粒( Lederberg , 1952 )等也成为分子生物学和 1970 年代诞生的生物技术产业的重要工具。 3-10-7 解析 DNA 三维结构
注 2 : 1944 年, Avery 已 67 岁,属很少见的在年龄很大的时候做出重要工作的科学家。 MacLeod 只有 35 岁, McCarty 只有 33 岁。 MacLeod 一直是“少年得志”类, 15 岁高中毕业, 23 岁毕业于 McGill 大学医学院,到纽约大学任微生物系主任时仅 32 岁。
注 3 :据 Hammarsten 的学生 Reichard ( 2002 )在研读解密的文件后介绍, 1932 年至 1946 年几乎每年 Avery 都因发现细菌多糖的抗原性而被提名诺贝尔奖。 1946 年后提名开始提到他的转化工作,但当时诺贝尔医学奖委员会懂核酸的关键成员 Hammarsten 虽首先提议委员会考虑这一工作,但他每次都认为不行,前几年是考虑到提取物易污染、难排除蛋白质起转化作用的可能性,等到 1952 年 Hershey 和 Chase 文章、 1953 年 Watson 和 Crick 文章后,他和其他成员相信 DNA 是转化因子, Hammarsten 的评估报告认为 DNA 是转化因子,但其作用机理不明、所以得奖还早。 1953 年诺奖给三羧酸循环的发现者 Hans Krebs ( 1900-1981 )和辅酶 A 的发现者 Fritz Lipmann ( 1899-1986 )、 1954 年奖给脊髓灰质炎病毒的发现者们。而 1955 年 Avery 去世后,核酸方面的诺贝尔奖都比较快,包括 1959 年发错了一半。
注 4 : Kossel 获 1910 年诺贝尔化学奖,因为“通过其对蛋白质的研究,包括核物质,对细胞化学知识的贡献”,委员会看重他研究蛋白质,而他的诺贝尔演讲前面大半内容是核酸。 Kossel 于 1884 年发现的组蛋白,在二十世纪末和二十一世纪初为分子生物学研究的热点。 1974 年,美国 Stanford 大学的 Roger Kornberg ( 1947- )提出 DNA 重复地、规则地环绕组蛋白形成核小体( Kornberg and Thomas , 1974 ; Kornberg , 1974 )。美国洛杉矶加州大学( UCLA )的 Michael Grunstein 实验室通过酵母遗传学证明组蛋白和核小体对基因转录的重要性。 1996 年美国的 David Allis 实验室发现组蛋白乙酰转移酶后( Brownell et al. , 1996 ),组蛋白修饰成为很多人研究的表观遗传学的核心问题之一。
注 5 : Lederberg 于 1946 和 1947 年发表重要结果后,不再念哥伦比亚大学的医学院而转到耶鲁做研究生( Lederberg , 1987 ),他的研究生工作使他在 33 岁与 Beadle 和 Tatum 共享 1958 年诺贝尔奖。 Arthur Kornberg ( 1918-2007 )因于 1956 年发现 DNA 多聚酶获 1959 年诺贝尔奖。 Perutz 与 Kendrew 因研究血红蛋白和肌球蛋白的三维结构获 1962 年诺贝尔化学奖。 Watson 、 Crick 和 Wilkins 获 1962 年诺贝尔生理或医学奖。 Delbrück 、 Luria 和 Hershey 获 1969 年诺贝尔奖。
注 6 :法裔科学家 René Jules Dubos 多才多艺, 1948 年因研究土壤细菌及其抗生素与导师 Selman Waksman ( 1888-1973 )共享 Lasker 奖( Waksman 因为发现链霉素获 1952 年诺贝尔奖,但他另一研究生 Albert Schatz ( 1920-2005 )认为自己是发现链霉素的主力)。 Dubos 被 Avery 招到洛克菲勒以后,除几年在哈佛任教外都在洛克菲勒。他写了很多包括科普的书,其中 1968 年出版的《如此人性的动物》( So Human an Animal )一书获 1969 年普利策奖。 Avery 找到 Dubos 是巧遇, Dubos 于 1927 年研究生毕业时,有人建议他到洛克菲勒求教法国同胞、 1912 年诺贝尔奖得主 Alexis Carrel ( 1873-1944 ),他们到餐厅午餐时 Dubos 旁边正好坐着 Avery ,两人一拍即合, Avery 说了他面临的问题(肺炎球菌荚膜多糖), Dubos 说肯定可以从土壤细菌中找到降解的酶。
注 7 :发现肺炎球菌的 Albert Fränkel 因为是犹太人,在 1930 年代已年迈后没有被希特勒得势后的虐犹者所放过,被剥夺教授职位和行医执照。一大批科学家被整和出逃导致有辉煌科学历史的德国迅速落后。
注 8 : Dochez 一战时入伍, 1919 年到霍普金斯大学任教, 1921 年回纽约在哥伦比亚大学任教,长期是 Avery 的室友和朋友。其研究自 1919 年改为链球菌, 1928 年改为流感病毒。
注 9 : Horace Judson 于 1979 年出版的 The Eighth Day of Creation 一般认为很好的有关分子生物学历史的书。但是,他依赖访谈,不善阅读关键原始论文,对 Avery 等工作理解不够充分、不清楚 1946 年的文章,且未采访当时健在的 MacLeod 和 McCarty , McCarty 自己出书有更可靠的一手材料( McCarty , 1985 )。 PPT
Alexander HE and Leidy G (1951) Determination of inherited traits of H. influenzae by desoxyribonucleic acid fractions isolated from type-specific cells. Journal of Experimental Medicine 93:345-359. Alexander HE and Leidy G (1953) Induction of streptomycin resistance in sensitive Hemophilus influenzae by extracts containing desoxyribonucleic acid from resistant Hemophilus influenzae . Journal of Experimental Medicine 97:17-31. Alexander HE and Redman W (1953) Transformation of type specificity of meningococci: Change in heritable type induce by type-specific extracts containing desoxyribonucleic acid. Journal of Experimental Medicine 97:797-806. Alloway JL (1932) The transformation in vitro of R pneumococci into S forms of different specific types by the use of filtered pneumococcus extracts. Journal of Exerimental Medicine 55:91-99. Alloway JL (1933) Further observations on the use of pneumococcus extracts in effecting transformation of type in vitro . Journal of Experimental Medicine 57:265-278. Altmann R (1889). Ueber Nucleinsäuren. Archiv für Anatomie und Physiologie. Physiologische Abteilung 524-536, Leipzig. Amoss HL (1925) The composite nature of a pure culture of a virulent pneumococcus. Journal of Experimental Medicine 41:649-662. Arkwright JA (1921) Variation in bacteria in relation to agglutination both by salts and by specific serum. Journal of Pathology and Bacteriology 24:36-60. Astbury WT and Bell FO (1938a) X-ray study of thymonucleic acid. Nature 141:747-748. Astbury WT and Bell FO (1938b) Some recent developments in the X-ray study of proteins and related structure. Cold Spring Harbor Symposia on Quantitative Biology 6:109-118. Austrian R and MacLeod CM (1949) Acquition of M protein by pneumococci through transformation reactions. Journal of Experimental Medicine 89:451-460. Austrian R and Gold J (1964) Pneumococcal bacteremia with especial reference to bacteremic pneumococcal pneumonia. Annals of Internal Medicine 60:759-776. Austrian R, Douglas RM, Schiffman G (1976) Prevention of pneumococcal pneumonia by vaccination. Transactions of the Association of American Physicians 89:184-189. Avery OT, Chickering HT, Cole R, Dochez AR (1917) Acute lobar pneumonia: prevention and serum treatment. Monograph No. 7, New York: Rockefeller Institute for Medical Research. Avery OT and Dubos R (1931) Protective action of a specific enzyme against type III pneumococcus infection in mice. Journal of Experimental Medicine 54:73-90. Avery OT and Goebel WF (1933) Chemoimmunological studies on the soluble specific substance of Pneumococcus: I. the isolation and properties of the acetyl polysaccharide of Pneumococcus type I. Journal of Experimental Medicine 58:731-755. Avery OT, MacLeod CM and McCarty M (1944) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 79: 137-158. Bernal JD and Crowfoot DM (1934) X-ray photographs of crystalline pepsin. Nature 133:794-795. Beadle GW, Tatum EL (1941). Genetic control of biochemical reactions in Neurospora . Proceedings of the National Academy of Sciences 27:499-506. Boivin A (1947) Directed mutation in colon bacilli, by an inducing principle of desoxyribonucleic nature: its meaning for the general biochemistry of heredity. Cold Spring Harbor Symposium on Quantitative Biology 12:7-17. Brachet J (1942) La localization des acides pentosennucléiques dans les tissus animaux et les oeufs d’Amphibiens en voie de développeent. Archiv de Biologie 53:207-257. Brown R (1833) Obesrvation on organs and mode of fecundation in Orchideae and Asclepiadeae. Transactions of the Linnean Society of London 16:685-716. Brownell JE, Zhou J, Ranalli T, Kobayashi R, Edmondson DG, Roth SY, Allis CD (1996). Tetrahymena histone acetyltransferase A: a homolog to yeast Gcn5p linking histone acetylation to gene activation. Cell 84:843-851. Caspersson T (1932) Die quantitative bestimmung vom Thymonucleinsäure mittels fuchsinschwefliger Säure. Biochem Zeitschtift 353:97-. Caspersson T (1935). Ueber die localization der nucleinsäure im Zellkern. Naturwissenschaften 30:527-. Casspersson T (1936). Ueber den chemischen Aufbau der strukturen des Zellkernes. Skan Arch Physiol 73(Suppl. 8):1-51. Caspersson T, Hammarsten E and Hammarsten H (1935). Interactions of proteins and nucleic acid. Transactions of the Faraday Society 31:367-389. Caspersson T and Schultz J (1938) Nucleic acid metabolism of the chromosomes in relation to gene reproduction. Nature 142:294-295. Caspersson T and Schultz J (1939). Pentose nucleotides in the cytoplasm of growing tissues. Nature 143:602. Chargaff E (1950) Chemical specificity of nucleic acids and mechanism of their enzymic degradation. Experientia 6:201-209. Chargaff E and Zamenhof S (1948) The isolation of highly polymerized dexoxypentosenucleic acid from yeast cells. Journal of Biological Chemistry 173:327-335. Chargaff E, Vischer E, Doniger R, Green C and Misani F (1949) The composition of the desoxypentose nucleic acids of thymus and spleen. Journal of Biological Chemistry 177:405-416. Chargaff E, Lipshitz R, Green C and Hodes ME (1951) The composition of the deoxyribonucleic acid of Salmon sperm. Journal of Biological Chemistry 192:223-230. Cobb M (2014) Oswald Avery, DNA, and the transformation of biology. Current Biology 24:R55-R60. Dahm R (2005). Friedrich Miescher and the discovery of DNA. Developmental Biology 278:274-288. Dahm R (2008). Discovering DNA: Friedrich Miescher and the early years of nucleic acid research. Human Genetics 122:565-581. Dale HH (1946) Address of the president. Proceedings of the Royal Society B 133:123-139. Darnell J (2011) RNA, life’s indispensable molecule. pp. 43-44, Cold Spring Harbor Laboratory Press, New York. Dawson MH (1928) The interconvertibility of “R” and “S” forms of pneumococcus. Journal of Experimental Medicine 47:577-591. Dawson MH (1930) The transformation of pneumococcal types: II the interconvertibility of type-specific S pneumococci. Journal of Experimental Medicine 51:123-147. Dawson MH and Sia RHP (1931) In vitro transformation of pneumococcal types. I. A technique for inducing transformation of pneumococcal types in vitro . Journal of Experimental Medicine 54:681-699. Dubos RJ (1976) The professor, the institute, and DNA. Rockefeller University Press, NY. Dobzhansky T (1941) Genetics and the origin of the species, p. 47, Columbia University Press, New York. Dochez AR and Avery OT (1917a). Soluble substance of pneumococcus origin in the blood and urine during lobar pneumonia. Proceedings of the Society of Experimental Biology and Medicine 14:126-127. Dochez AR and Avery OT (1917b). The elaboration of specific soluble substance by pneumococci during growth. Journal of Experimental Medicine 26:477-493. Dochez AR and Gillespie LJ (1913) A biologic classification of pneumococcus by means of immunity reactions. Journal of the American Medical Association 61:727-732. Dochez AR and Avery OT (1916) Antiblastic immunity. Journal of Experimental Medicine 23:61-68. Downie AW (1972) Pneucococcal transformation-a backward view: Fourth Griffith Memorial Lecture. Journal of General Microbiology 73:1-11. Dunn LC (1951) Genetics in the Twentieth Century: Essays on the Progress of Genetics during its First Fifty Years. Macmillan, NY. Feulgen R and Rossenbeck H (1924). Mikroskopisch-chemischer Nachweis einer Nucleins ä ure von Typus der Thyomonucleins ä ure and die darauf beruhende elective F ä rbung von Zellkernen in microskopicschen Praparaten. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 135: 203-248. Fränkel A (1884) Über die genuine Pneumonie. Verhandlungen des Congresses für Innere Medicin, Dritter Congress 3:17-31. Franklin R and Gosling RG (1953) Molecular configuration in sodium thymonucleate. Nature 171:740-741. Goebel WF, Avery OT, Babers FH (1934). Chemo-immunological studies on conjugated carbohydrate proteins. IX. The specificity of antigens prepared by combining the p-aminophenol glysides of disaccharides with protein. Journal of Experimental Medicine 60:599-617. Griffith F (1922) Types of pneumococci obtained from cases of lobar pneumonia. In Reports on Public and Medical Subjects , № 13, pp. 20-45, His Majesty’s Stationery Office, London. Griffith F (1923) The influence of immune serum on the biological properties of pneumococci. In Reports on Public and Medical Subjects , № 18, pp. 1-13. His Majesty’s Stationery Office, London. Griffith F (1928) The significance of pneumococcal types. Journal of Hygiene 27:113-159. Heidelberger M and Avery OT (1923) The soluble specific substance of Pneumococcus. Journal of Experimental Medicine 38:73-79. Heidelberger M (1977) A “pure” organic chemist’s downward path. Annual Review of Microbiology 31:1-12. Henriques-Normark B and Tuomanen EI (2013) The pneumococcus: epidemiology, microbiology and pathogenesis. Cold Spring Harbor Perspective doi:10.1101. Hershey AD and Chase M (1952) Independent functions of viral protein and nucleic in the growth of bacteriophage. Journal of General Physiology 36:39-56. Hoppe-Seyler EFI (1871) Ueber die chemische Zusammensetzung des Eiters. Medisch-chemische Untersuchungen 4:486. Hotchkiss RD (1948) The quantitative separation of purines, pyrimidines and nucleosides by paper chromatography. Journal of Biological Chemistry 175:315-332. Hotchkiss RD (1951) Transfer of penicillin resistance in pneumococci by the desoxyribonucleate derived from resistant cultures. Cold Spring Harbor Symposium on Quantitative Biology 16:457-461. Hotchkiss RD (1952) The biological nature of the bacterial transforming factors. Experimental Cell Research Supplement 2:383-389. Hotchkiss RD (1965) Oswald T Avery: 1877-1955. Genetics 51:1-10. Itakura K, Hirose T, Crea R, Riggs AD, Heyneker HL, Bolivar F, Boyer HW (1977) Expression in Escherichia coli of a chemically synthesized gene for the hormone somatostatin. Science 198:1056-1963. Jones W (1914) Nucleic Acids: Their Chemical Properties and Physiological Conduct. Longmans, Green and Co., London. Jones ME (1953). Albrecht Kossell, a biographical sketch. Yale Journal of Biology and Medicine 26:80-97. Judson H (1979) The eighth day of creation: makers of the revolution in biology. Simon and Schuster. Kasten FH (2003) Robert Feulgen and his histochemical reaction for DNA. Biotechnic and Histochemistry 78:45-49. Kornberg R and Thomas JO (1974). Chromatin structure: oligomers of the histones. Science 184:865-868. Kornberg R (1974). Chromatin structure: a repeating unit of histones and DNA. Science 184:868-871. Kossel A (1879). Ü ber das Nuclein in der Hefe I. Zschar Physiol Chem 3:284-291. Kossel A (1891) Ü ber die chemische Zusammensetzung der Zelle. DuBois-Reymond’s Arch 181:181-186. Kossel A (1912) The proteins. Bulletin of the Johns Hopkins Hospital 23:65-76. Kunitz M (1940) Crystalline ribonuclease. Journal of General Physiology 24:15-32. Kunitz M (1948) Isolation of crystalline desoxyribonuclease from beef pancreas. Science 108:19-20. Kunitz M (1950) Crystalline desoxyribonuclease. Journal of General Physiology 35:349-377. Lamm E, Harman O and Veigl SJ (2020) Before Watson and Crick in 1953 came Friedrich Miescher in 1869. Genetics 215:291-296. Lederberg J (1947) Gene recombination and linked segregations in Escherichia coli . Genetics 32:505-525. Lederberg J (1952) Cell genetics and hereditary symbiosis. Physiological Reviews 32:403-430. Lederberg J (1956) Genetic transduction. American Scientist 44: 264-280. Lederberg J (1994) The transformation of genetics by DNA: an anniversary celebration of Avery, MacLeod and McCarty (1944). Genetics 136:423-426. Lederberg J (1987) Genetic recombination in bacteria: a discovery account. Annual Review of Genetics 21:23-46. Lederberg J and Tatum EL (1946) Gene recombination in Escherichia coli . Nature 158:558. Levene PA, Mandel JA (1908) Über die Darstellung und Analyse einiger der Nucleinsäuren. XIII. Mitteilung. Über ein Verfahren zur Gewinnung der Puribasen. Biochemische Zeitschrift 10:215-220. Levene PA (1909) Über die Hefenucleinsaeure. Biochemische Zeitschrift 17:120-121. Levene PA and Jacobs WA (1912). On the structure of thymus nucleic acid. Journal of Biological Chem istry 12: 411-420. Levene PA (1917a). The structure of yeast nucleic acid. Journal of Biological Chemistry 31:591-598. Levene PA (1917b). The chemical individuality of tissue elements and its biological significance. Journal of American Chemical Society 39:828-837. Levene PA (1919). The structure of yeast nucleic acid: IV. ammonia hydrolysis. Journal of Biological Chemistry 40: 415-424. Levene PA (1920a). The structure of yeast nucleic acid: V. ammonia hydrolysis. Journal of Biological Chemistry 41:19-23. Levene PA (1920b). The structure of yeast nucleic acid: ammonia hydrolysis: the so called trinucleotide of Thannhauser and Dorfmüller. Journal of Biological Chemistry 43:379-382. Levene PA and London ES (1929). The structure of thymonucleic acid. Journal of Biological Chemistry 83:793-802. Levene PA and Bass LW (1931) Nucleic Acids. Chemical Catalog Company, New York. Levene PA Tipson RS (1935) The ring structure of thymidine. Journal of Biological Chemistry 109:623-630. Liu S and Wu H (1938) Mechanism of the recovery of antibody recovery from immune precipitate. Chinese Journal of Physiology 13:449-462. Lubavin (1871) Ueber die künstliche Pepsin-Verdauung des Caseins und die Einwirkung von Wasser auf Eiweissubstanzen. Medisch-chemische Untersuchungen 4: 485. Luria SE, Delbrück M (1943) Mutations of bacteria from virus sensitivity to virus resistance. Genetics 28:491–511. MacLeod CM, Hodges RG, Heidelberger M, Bernhard WG (1945) Prevention of pneumococcal pneumonia by immunization with specific capsular polysaccharides. Journal of Experimental Medicine 82:445-465. Mandel JA, Levene PA (1905) Darstellung und Analyse einiger der Nucleinsäuren. XI. Mitteilung. Über die Nucleinsäure der Kuhmilchdrüse. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 46:155-158. McCarty M (1945) Reversible inactivation of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 81:501-514. McCarty M (1946a) Purification and properties of desoxyribonuclease isolated from beef pancreas. Journal of General Physiology 29:123-139. McCarty M (1946b) Chemical nature and biological specificity of the substance inducing transformation of pneumococcal types. Bacteriology Reviews 10:63-71. McCarty M and Avery OT (1946a) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. II. Effect of desoxyribonucleose on the biological activity of the transforming substance. Journal of Experimental Medicine 83:89-96. McCarty M and Avery OT (1946b) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. III. An improved method for the isolation of the transforming substance and its application to pneumococcus types. Journal of Experimental Medicine 83:97-104. McCarty M (1985) The transforming principle, discovering that genes are made of DNA. Norton, NY. Miescher JF (1871a) Ueber die chemische Zusammensetzung der Eiterzellen. Medisch-chemische Untersuchungen 4:441-460. Miescher JF (1871b) Die Kerngebilde im Dotter des Hühnereis. Medisch-chemische Untersuchungen 4:502. Miescher JF (1874) Die Spermatozoen einiger Wirbelthiere. Ein Beitrag zur Histochemie. Verhandlungen der Naturforschenden Gesellschaft in Basel 6: 138-208. Mirsky AE (1951). Some chemical aspects of the cell nucleus, in Leslie C. Dunn, ed., Genetics in the 20th Century , pp. 127-153, New York. Mirsky AE, Pollister AW (1942) Nucleoproteins of cell nuclei. Proceedings of the National Academy of Sciences 28:344-352. Mirsky AE, Pollister AW (1946) Chromosin, a desoxyribose nucleoprotein complex of the cell nucleus. Journal of General Physiology 30:117-148. Mirsky AE, Ris H (1947) The chemical composition of isolated chromosomes. Journal of General Physiology 31:7-18. Mirsky AE, Ris H (1949) Variable and constant components of chromosomes. Nature 163:666-667. Mirsky AE and Ris H (1951) The desoxyribonucleic acid content of animal cells and its evolutionary significance. Journal of General Physiology 34:451-462. Morgan TH (1910) Sex-linked inheritance in Drosophila. Science 32:120-122. Morgan AH, Sturtevant AH, Muller HM, and Bridges CB (1915). The mechanisms of Mendelian heredity. Henry Holt & Co., New York. Neufeld F and Händel L (1909). Über Herstellung und Prüfung von Antipneumokokken-Serum und über die Aussichten einer spezifischen Behandlung der Pneumonie. Zeitschrift für Immuntätsforschun 3:159-171. Neusfld f and Händel L (1912). Zur Frage der Serumtherapie der Pneumonie und der Werbestimmung des Pneumokokken-Serums. Berliner Klinische Wochenschrift 49:680-683. Neufeld F and Levinthal W (1928) Beiträge zur Variabilität der Pneumokokken. Zeitschtift für Immunitätsforschung 55:324-340. Osborne TB, Harris IF (1902) Die Nucleinsäure des Weizenembryos. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 36:85-123. Pasteur L (1880) De l’atténuation du virus du choléra des poules. C R Acad Sci 91:673-680. Pasteur L (1881) Note sur la maladie nouvelle provoquée par la salive d’un enfant mort de la rage. Bulletin de l’Académie de Médicine (Paris) 10:94-103. Piccard J (1874) Über Protamin, Guanin und Sarkin als Bestandteile des Lachssperma. Chemische Berichte 7:1714-1719. Plósz P (1871) Ueber das chemische Verhalten der Kerne de Vogel- und Schlangenblutkorperchen. Medisch-chemische Untersuchungen 4:463-484. Reichard P (2002) Oswald T Avery and the Nobel Prize in medicine. Journal of Biological Chemistry 277:13355-13362. Reimann HA (1925) Variations in specificity and virulence of Pneumococci during growth in vitro . Journal of Experimental Medicine 41:587-600. Reimann HA (1927) The occurrence of degraded pneumococci in vivo. Journal of Experimental Medicine 45:807-814. Reimann HA (1929) The reversion of R to S Pneumococci . Journal of Experimental Medicine 49:237-249. Schultz J and Caspersson T (1940) Ribonucleic acids in both nucleus and cytoplasm and the function of the nucleolus. Proc Natl Acad Sci USA 26:507-515. Schultz J (1941) The evidence of the nucleoprotein nature of the gene. Cold Spring Harbor Symposium on Quantitative Biology 9:151-167. Schultz J (1943) Physiological aspects of genetics. Annual Review of Physiology 5:35-62. Sevag MG (1934) Eine neue physikalische enteiweissungemethode zur darstellung biologisch wirksamer subsanzen. Biochem Z 273:419. Sia RHP (1926) Presence of type specific pneumocco-opsonins in sera of animals naturally resistant to pneumococcus infection. Experimental Biology and Medicine 24:709-711. Sia RHP and Dawson MH (1931) In vitro transformation of pneumococcal types II. The nature of the factor responsible for the transformation of pneumococcal types. Journal of Experimental Medicine 54: 701-710. Signer R, Caspersson T, Hammarsten E (1938) Molecular shape and size of the thymonucleic acid. Nature 141:122. Sternberg GM (1881) A fatal form of septicaemia in the rabbit produced by the subcutaneous injection of human saliva. An experimental research. Bulletin of the National Board of Health 2:781-783. Stryker LM (1916) Variations in the pneumococcus induced by growth in immune system. Journal of Experimental Medicine 24:49-68. Steudel H (1906) Die Zusammensetzung der Nucleinsäuren aus Thymus und das Heringsmilch. Hoppe-Seyler’s Zeitschrift für physiolgische Chemie 49:406-409. Tamm C, Shapiro HE, Lipshitz R and Chargaff E (1953) Distribution density of nucleotides within a desoxyribonucleic acid chain. Journal of Biological Chemistry 203:673-688. Thomas R (1992) Molecular genetics under an embryologist’s microscope: Jean Brachet, 1909-1988. Genetics 131:515-518. Thompson RHS and Dubos RJ (1938) The isolation of nucleic acid and nucleoprotein fractions from pneumococci. Journal of Biological Chemistry 125:65-74. Vischer E and Chargaff E (1947) The separation and characterization of purines in minute amounts of nucleic acid hydrolysates. Journal of Biological Chemistry 168:781-782. Vischer E and Chargaff E (1948) The separation and quantitative estimation of purines and pyridines in minute amounts. Journal of Biological Chemistry 176:703-714. Vischer E, Zamenhof S and Chargaff E (1949) Microbial nucleic acids: the desoxypentose nucleic acids of avian tubercle bacilli and yeast. Journal of Biological Chemistry 177:429-438. Watson JD (1968) Double helix. Atheneum, New York. Watson JD and Crick FHC (1953a) A structure for deoxyribose nucleic acid. Nature 171:737-738. Watson JD and Crick FHC (1953b) Genetical implications of the structure of deoxyribonucleic acid. Nature 171:964-967. Wilkins MHF, Stokes AR and Wilson HR (1953) Molecular structure of deoxypentose nucleic acids. Nature 171:738-740. Wilson EB (1925) The cell in development and inheritance. Macmillan. Wright AE, Morgan WP, Colebrook L, Dodge RW (1914). Observations on prophylactic inoculation against pneumococcus infections and on the result which have been achieved by it. Lancet 1:1-10, 87-95. Zamenhof S and Chargaff E (1950) Dissymmetry in nucleotide sequence of desoxypentose nucleic acids. Journal of Biological Chemistry 187:1-14.
本章要求阅读文献: Griffith F (1928) The significance of pneumococcal types. Journal of Hygiene 27:113-159. Avery OT, MacLeod CM and McCarty M (1944) Studies on the chemical nature of the substance inducing transformation of pneumococcal types. Journal of Experimental Medicine 79: 137-158.