跳到主要内容
饶议科学概念细胞二十年
饶 机器翻译 机器翻译//约 27 分钟
Neuron
https://doi.org/10.1016/j.neuron.2026.01.026
概念细胞二十年:从不变反应到人类记忆的独特编码
Rodrigo Quian Quiroga
摘要
我讨论了大约20年前开始的人类单神经元记录以及概念细胞——即海马体及周围皮层中代表特定概念的神经元——的发现。接着,我阐述了概念细胞的主要特性,并展示了这些神经元如何与互补的新皮层表征相协调,参与记忆的形成与存储。最后,我比较了概念细胞与其他物种海马体中报道的反应特性,并提出概念细胞的抽象表征是人类独有的,可能是人类认知能力(例如我们进行高级抽象思维和泛化的能力)的基石。
正文
上个世纪初某版晦涩的英国百科全书中的一个词条描述了一个名为“特隆”(Tlon)的世界,在那里名词不存在,被形容词组合所取代。这个虚构世界出自阿根廷作家豪尔赫·路易斯·博尔赫斯的天才构想,他得出结论,在这样一个地方,科学,甚至思想,都不可能存在。原因很简单:名词是我们用来表征现实、构建思想和记忆的抽象概念。博尔赫斯的另一个故事讲述了伊雷内奥·富内斯的经历,一个什么也忘不了的农夫,因此不太擅长思考,因为“思考就是忘却差异,进行概括和抽象”。博尔赫斯的作品暗示,人类智能的一个关键特征在于语言促进的抽象能力。但抛开奇幻故事的领域,我们可以聚焦相关的神经科学问题,探讨这些抽象概念在塑造我们记忆中的作用,以及它们如何在神经元层面上被表征。
记录单个神经元需要通过植入脑内电极的侵入性操作。因此,人类研究多采用非侵入性记录(脑电图[EEG]、脑磁图[MEG]和功能磁共振成像[fMRI]),尽管这些方法提供了关于不同任务中脑区激活的宝贵证据,但它们只能间接和粗略地衡量单个神经元的活动。然而,单神经元记录在动物中是可行的,但动物通常在被测试时执行相对简单的、涉及奖励驱动训练的任务,这些任务远非人类的现实生活认知功能。尽管如此,在某些情况下,对人类进行侵入性记录是合理的。例如,对药物难以控制的癫痫患者,他们会植入颅内电极并进行约一周的持续监测,以确定癫痫病灶的位置并评估手术切除的可能性。
人类单神经元记录
早期研究
最早的人类单神经元记录是在癫痫手术期间使用玻璃微电极完成的。后来,人们开始使用至今仍在应用的程序进行半慢性记录(semi-chronic recordings),即通过空心颅内深部电极插入多根微丝(图1)。由于内侧颞叶(medial temporal lobe,MTL)区域涉及不同类型的癫痫,典型的记录部位覆盖海马体、杏仁核及其周围皮层。当沿深部电极放置的触点记录用于患者临床评估的颅内脑电图数据时,微丝则允许记录用于科学研究的多个单神经元活动和局部场电位(local field potentials,LFP)。
由于对产生癫痫样模式的神经元活动知之甚少,早期的人类单神经元研究主要集中在将癫痫发作和发作间期棘波与单个神经元放电的变化相关联(综述见Cash和Hochberg以及Merricks等人)。后来的研究(但此案例是在外侧颞叶皮层术中进行的)将单神经元活动与认知过程和语言相关联,展示了在静默或明显物体命名及单词阅读时的神经元激活,并描述了在单词聆听过程中对单词特定特征(如其长度或音节结构)的反应。此外,鉴于从高级视觉区域到MTL的直接投射,其他研究分析了在呈现短暂闪烁刺激期间MTL的反应;单个单词、面孔和物体关联词对;视觉想象;刺激类别;以及使用闪光抑制的模糊图片呈现。
技术进步与概念细胞的发现
神经元的放电被观察为持续基线活动中的尖锐瞬态,或称“峰电位”,持续时间约2毫秒(见图1)。因此,为了检测峰电位,信号以高采样率(~30 KHz)记录,这在21世纪初由于存储限制和大量数据处理需求而带来了挑战。因此,当时的常见做法是仅存储超过振幅阈值的峰电位,该阈值通常手动设置在噪声水平之上。这种方法的问题在于手动选择最佳阈值很困难,尤其是在处理多电极记录时:如果阈值设得太高,低于阈值的峰电位将丢失;如果设得太低,神经元的放电将被相对大量的假阳性(即阈值的随机交叉)所污染。
概念细胞的记忆编码
MTL在情景记忆中的作用已从对病人H.M.的开创性研究、动物研究的汇聚证据、对具有类似损伤的患者的调查,以及对正常受试者的成像研究中得到充分证实。情景记忆依赖于存储关联(例如,记住在咖啡馆遇到一个朋友),单神经元研究已经证明了MTL在动物和人类中编码关联的参与。
图4描绘了三个对关联概念有反应的示例性人类MTL神经元。图4A中的神经元被洛杉矶湖人队两名篮球运动员的图片激活,但对在同一球队效力的另一名球员、其他球队的篮球运动员或其他人物、动物或地点无反应。图4B中的神经元对与患者进行实验的两名研究人员的图片有反应,但对与患者一起进行实验的另一位同事无反应。这些例子表明,MTL神经元对特定的(但并非全部)关联产生反应,而非对广泛的语义类别(篮球运动员、洛杉矶湖人队、进行实验的研究人员等)产生反应,正如对几百个MTL反应性神经元分析所证明的那样。
图4B中反应的一个有趣之处在于,这些实验者此前不为患者所知,这意味着概念细胞的表征以及它们之间的关联可以相对快速地形成。图4C显示了一个神经元,它对拳击手穆罕默德·阿里(在史诗般的“丛林之战”中击败乔治·福尔曼后)的胜利图片和网球运动员玛丽亚·莎拉波娃赢得温布尔登网球公开赛后的图片有反应。不太可能受试者在实验前就已将阿里和莎拉波娃关联起来,更合理的解释是这种关联是在实验期间建立,将阿里和莎拉波娃的图片联系起来是因为它们看起来都很胜利。
一些研究表明,MTL神经元可以迅速改变其调谐以编码新的关联。其中一项研究使用了配对联想范式(paired association paradigm),对于每个引起神经元反应的人物(根据之前的筛选环节确定),通过展示该人物在某个地点的人工Photoshop图像来创建一个与任意地点的关联。受试者必须学习这些人-地点关联,当他们学会的那一刻(有时甚至在单次展示人工图像之后),最初对人物有反应的神经元开始对相关联的地点(没有人物)产生反应,但对与其他人物相关联的同样熟悉的地点则无反应。此外,最近一项研究表明,MTL神经元可以使用内隐任务(implicit task)编码新的关联,其中关联由复杂的时序结构决定,特定刺激规律地连续出现(在这些刺激之间形成关联),而其他刺激则从不连续出现。同样,先前的一项工作也表明,MTL反应性神经元表征新关联的学习,通过在有序、可预测的序列中,对反应性神经元之前的刺激产生反应,展现出预期性反应。此外,使用项目-位置关联任务,当受试者回忆在相应位置呈现的特定项目时,MTL位置反应性神经元的放电被重现。
具有部分重叠印迹的关联编码
如果我们发现一个神经元对詹妮弗·安妮斯顿有反应,那肯定还有更多这样的神经元,因为我们不可能在数百万神经元中找到了唯一的一个。鉴于我们只能呈现有限的一组刺激,无法估计神经元的“真实选择性”,考虑到实验中呈现的图片数量、记录的神经元数量以及获得的反应数量,使用贝叶斯概率论证估计,每个反应性神经元对大约1.3张图像(在展示的约一百张图像中)有反应,大约每千个神经元中有一个代表特定概念,这是非常稀疏的,但远非“祖母细胞表征”(神经元只代表1个且唯一1个项目)。在海马体内,CA3由于该区域神经元之间的复发性连接,在编码关联方面起着关键作用,估计人类CA3中有280万个神经元,那么我们得出,代表每个熟悉概念的印迹由几千个神经元组成(而对于不太熟悉的概念,印迹更小,因为MTL神经元倾向于对熟悉的概念做出反应)。
上述对相关概念的反应表明,在群体水平上,关联是通过共享神经元和部分重叠的印迹编码的。图5A用阿里和莎拉波娃的部分重叠表征说明了这一想法。如果存在两个编码阿里和莎拉波娃概念的印迹,那么在这些概念之间建立关联涉及让一些“阿里神经元”也对莎拉波娃有反应,反之亦然。
这样一来,一些代表一个概念的神经元扩展了它们的调谐以编码相关联的概念,但仍然会对第一个概念产生反应。换句话说,这是一个逻辑“或”函数,神经元被原始概念或相关联的概念激活,而不是“与”函数,后者将意味着一组新的神经元开始对两个概念一起产生反应以表征关联。
人类MTL中概念细胞的编码有两个主要功能:首先,它们提供了概念及其之间关联的表征,这构成了情景记忆的骨架;其次,它们指向编码所涉及概念不同方面(例如阿里的面孔、他的声音等)的远端新皮层区域,这与之前认为海马体充当远端新皮层区域索引的理论一致。这些概念不仅可以是人物,也可以是特定地点,可能涉及海马旁皮层的神经元反应,从而提供了情景记忆的“谁/什么”和“哪里”。
两项建模研究进一步揭示了如何用部分重叠的印迹编码记忆。第一项研究使用了一个带有赫布学习规则(Hebbian learning rule)和持续背景活动的动态吸引子网络,根据相应记忆模式的呈现频率,可以形成、巩固或遗忘记忆表征。图5B说明了这样的印迹是如何通过反复刺激一组给定的神经元而创建的,由于赫布规则,这些神经元之间的连接变得更加紧密,而最初不是印迹一部分的其他神经元,如果碰巧在刺激时放电,也加入了该印迹。图5B的底部图描绘了三个初始大小相同的印迹,但具有不同的演化模式:第一个由于相对较高的刺激频率而增大了其规模;第二个刺激频率较低,保持了相似的规模;而第三个没有进一步受到刺激,因此消失了。
图5A模型的一个关键方面是印迹之间的重叠量。这使用一个具有两个记忆模式和可变数量共享神经元的吸引子神经网络进行了研究。根据重叠量,获得了三种动态(图5C左侧图)。当重叠相对较小时(C < C_min,顶部),没有关联被编码,并且在对第二个模式施加阈下刺激时,刺激第一个模式没有效果。对于较大的值(C_min < C < C_max,中间),在对第二个模式施加阈下刺激后,刺激第一个模式有助于第二个模式的激活;对于更大的值(C > C_max,底部),模式合并,无法在不激活另一个的情况下激活其中一个。C_min和C_max的确切值取决于网络参数,但分别约为1%和20%,这与使用真实数据估计的值(4%)一致,该值位于编码印迹之间关联而不合并它们的最小和最大重叠之间。
同样的模型还被用来研究如何用特定上下文消除重叠记忆的歧义(图5C右侧图)。如果一个人P0与另外两个人P1和P2相关,则可以通过考虑每个记忆的不同上下文来区分与其中一人或另一人的记忆。特别是,用上下文C1激活P0会引起P1的自发激活(例如,当回忆起在巴黎与一位同事会面时,我们想起了同一次会议中的另一位同事;中间图),而用上下文C2激活P0则会引起P2的激活(在罗马想起第一位同事会唤起也出席那次会议的另一位同事的记忆;底部图)。
海马体和新皮层对陈述性记忆的贡献
海马体在历史上被认为为陈述性记忆——即可以命名的事物,包括语义记忆和情景记忆,分别是对事实和个人经历的记忆——提供临时存储,这些记忆随后会缓慢地巩固在新皮层中。这种所谓的“标准巩固模型”后来受到基于MTL损伤研究以及成像和电生理学工作的挑战,这些研究表明海马体对于情景记忆始终至关重要,因此,当语义记忆在新皮层巩固时,海马体提供情景记忆的长期(不仅是临时的)表征。概念细胞的发现支持后一种观点,因为这些神经元编码的不是在特定实验中从头形成的特定概念,尽管在某些情况下它们可以反映任务期间可能形成的关系(图4C;另见Ison等人),但它们倾向于代表基于先前经验对受试者有意义的已建立关联。此外,概念细胞倾向于对与个人相关的人物(不仅仅是名人)做出反应,这些人物正是受试者拥有相关情景记忆的人。
双重分离研究显示了海马体和新皮层在记忆中的不同作用:一方面,海马体损伤导致情景记忆而非语义记忆的缺陷;而新皮层损伤(尤其是颞极)会导致语义性痴呆,但情景记忆相对保留。建模研究提供了进一步支持,表明海马体更适合快速学习和形成情景记忆特征性的任意关联,而新皮层学习速率慢得多,以维持语义记忆特征性的有序结构和关联。概念细胞的发现与这一观点一致,海马体充当中枢,快速编码概念之间的关联并链接到新皮层中的相关表征(图5A)。然而,情景记忆和语义记忆之间的区分并不总是那么简单。特别是,与个人过去经历相关的事实信息有时可能被视为情景记忆,有时被视为语义记忆。考虑到图4中的例子,确实很难区分这些关联是对应于情景回忆(例如,记得在一场比赛中看到两名篮球运动员)还是语义知识(知道他们是洛杉矶湖人队的两名球员)。因此,与其有一个明确的功能和解剖分离,更合理的看法是将海马体和新皮层视为支持记忆的两个相互作用系统,每个系统提供不同类型的表征(表1)。
如上所述,由概念细胞编码的关联代表特定的关联,而不是语义关系。此外,人类海马体缺乏地形学组织,附近的神经元对不相关的事物做出反应,这非常适合情景记忆,因为它有利于在任意概念之间快速建立关联,而不仅仅是属于同一类别的概念,这与这些神经元展示的非常快速的任意关联编码一致。
海马体和新皮层神经元表征之间的一般差异。海马体中的神经元编码(快速形成的)构成情景记忆基础的任意关联,而新皮层中更有序和层次化的信息需要较慢的学习速率,非常适合存储构成语义记忆的事实和关系。
这与其在新皮层中观察到的地形学组织形成对比,加上更分布的群体编码,使得新皮层更适合编码语义记忆特征性的有组织信息和层级结构,这些结构通常能够支持相对较慢的学习,以便新关联的编码不会破坏已建立的层级结构和语义信息的组织。但即使学习速度慢,一些任意的关联可能不适合新皮层的层级组织,因此不会巩固,而是依赖于互补的海马体系统进行编码,因此发现情景记忆总是海马体依赖的。这些任意的关联构成了核心或核心情节,这使得在记忆叙述中能够跳跃,并且与显示该区域在编码不连续、不一致事件之间的关联作用的证据一致,以及MTL损伤患者回忆和想象力非常有限的事实一致,他们只能提供由新皮层结构支持的零碎片段。
在确立了海马体和新皮层表征之间的差异之后,应该注意的是,除了少数例外(例如海马旁皮层、梭状回或内侧额叶皮层的记录),人类新皮层中的单神经元记录仍然相对罕见。迄今为止的证据尚未显示新皮层区域中存在具有概念细胞那样的选择性和多模态不变性的神经元,但进一步的研究应该确定概念细胞是否以及在多大程度上也可能存在于人类新皮层中。特别是,可以想象,从刺激的感觉特征表征到概念表征的转变可能发生在新皮层,因此,一些新皮层神经元也可能表现出类似于概念细胞的特征,但可能不如在海马体中发现的那么突出和具有抽象程度。
人类海马体中独特的记忆编码
记忆存储的一个公认原则是模式分离(pattern separation),它正交化重叠记忆的神经元表征以避免干扰(例如,混合在遇到某个特定人物时一次或另一次发生的事件)。在单细胞水平上,模式分离由联合性、上下文依赖的反应提供,这得到了建模工作、啮齿动物和猴子单神经元记录研究,以及人类非侵入性fMRI和EEG记录的支持。与这些证据相反,我们认为人类的模式分离可能不存在(至少对于情景记忆的长期存储而言),并且重叠记忆的分化是通过部分重叠印迹的共激活实现的(例如,同时激活一个人物和一个特定上下文的印迹,以存储该人物在此上下文中的记忆;见图5C右侧图),每个印迹本身是上下文无关的。
使用部分重叠印迹编码记忆与模式分离非常不同,因为每个组合代表一个特定的概念,如某个人,而不是概念的联合,如某人在一种而非另一种情况下,这将导致组合爆炸。支持这一观点的是,同一个人的非常不同的图片,如图2中詹妮弗·安妮斯顿或萨达姆·侯赛因的图片,可能唤起不同的记忆,但往往产生相似的反应。此外,概念细胞对特定人物的反应独立于受试者执行的任务,无论是被动看图片、在感知辨别任务中看到融合或短暂闪烁的图像版本、在配对联想任务中看到单个和组合的图片、在工作记忆期间,甚至在回忆或思考引发神经元反应的人物时。
与这一证据一致,研究表明MTL神经元的表征在识别记忆和分类任务中是不变的,这与在额叶神经元中观察到的任务调节形成对比。
最近一项研究提供了人类MTL中缺乏模式分离的直接实验证据。受试者被要求学习和回忆涉及不同上下文中相同概念的故事。图6A显示了一个示例性神经元,它在被动观看时对一位电视名人做出反应,然后在受试者学习涉及该人物的两个不同故事时对该人物做出反应。该神经元在编码和回忆期间对两个故事的反应在统计上是相同的,这在本研究中对于反应性神经元通常是这种情况(图6B)。总的来说,大多数反应性神经元在编码(97%)和回忆(100%)期间对两个故事中的反应性概念具有相同的激活。仍然可以争辩说,其他最初非反应性的神经元可能表现出联合编码,对某个故事中的某个概念产生反应。然而,情况并非如此,因为具有联合编码的非反应性神经元的数量并不比偶然预期的数量多。此外,考虑到每个环节中所有记录的神经元,群体解码算法可以区分故事中出现的是哪个人物,但不能区分涉及同一人物的两个故事,无论是在编码还是回忆期间(图6C)。
上述证据表明,人类海马体中的记忆编码与其他物种中描述的不同。尽管fMRI结果似乎原则上反对这一观点,而与在动物中描述的模式分离一致,但像素活动无法提供单细胞分辨率,而fMRI观察到的上下文调节可以由不同印迹组的共激活产生,每个印迹组由不显示联合编码的神经元组成。
其他人类单神经元研究提供了据称支持模式分离的结果,但存在几个问题。在一项研究中,有人认为大多数神经元对目标图像的反应比对同一人物的诱饵图片的反应更强。然而,这并不令人惊讶,因为只有对目标图像有反应的神经元被纳入分析。除了这种选择偏差外,对目标和诱饵图片的反应没有进行统计比较,并且发现一部分目标反应性神经元对诱饵没有反应,这很可能是由于大量的假阳性(近40%的反应性海马神经元,而类似研究报告的<10%),反应勉强超过或未超过反应性阈值,但彼此之间不一定有显著差异。此外,考虑到该范式的oddball样设计(在一系列40张新图像中标示10张先前呈现的目标图像的识别),不能排除整体的注意力调节,这与因模式分离产生的表征正交化完全不同。
另一项研究使用虚拟导航任务,并报告了对地点、目标和视野的联合有反应的神经元。然而,统计问题促使我们对这些结果持谨慎态度,因为使用了三因素方差分析,但通过环境每个区间的次数相对较少,并且对其进行了粗略的分区。在最近的一项研究中,受试者被要求想象然后检索涉及两到三个图像的独特情节,结果发现有相当数量的神经元在特定情节的编码和回忆期间持续活跃,从而提供了联合编码的证据。然而,编码和回忆期间的神经元激活仅在一个试验中进行了比较,尚不清楚这种编码的可靠性如何。此外,受试者在编码和回忆期间可能一直在思考同一个概念,而且,重叠记忆(例如,涉及同一人物的两个记忆)的消歧并未像图6研究那样进行测试,在该研究中,受试者被明确要求消歧重叠记忆,并且没有发现联合编码的证据,而且试验次数多得多(每个故事10到15次)。与后一项研究一致,最近一项使用上下文中的项目记忆的研究发现,分别编码项目和上下文的神经元群体在很大程度上是正交的——即绝大多数项目神经元是上下文不变的,只有一小部分神经元表现出联合编码,对特定上下文中的特定项目做出反应。
概念细胞是人类独有的吗?
动物具有概念的意识:一条狗可以在不同条件下识别特定的人或其他狗。然而,我们认为它们没有概念细胞,即在单细胞水平上对这些概念的显性表征。需要澄清的是,我们所说的概念是指特定的人物或物品,与刺激的感觉特征(例如一个人在某张特定照片中的样子)无关,而不是像奖励、注意力或与特定任务相关的变量(例如相对于奖励位置)这样的抽象概念,这些概念可能在各种条件下泛化。前面章节描述的概念细胞的反应具有三个特性:(1) 它们非常有选择性,只对极少数呈现的刺激放电;(2) 它们表现出多模态不变性,对不同的图片甚至书写的和口头的名字、代词以及其他表征特定概念的刺激做出反应;(3) 它们表现出上下文独立性,在不同任务和背景下反应相似。
在啮齿动物海马体中,存在位置细胞和网格细胞,它们在环境的特定位置放电,这一点已得到充分证实。尽管特定位置原则上可以
被认为是参与情景记忆的概念,但位置细胞和网格细胞的表征与概念细胞的表征非常不同,因为前者表现出上下文调节,而概念细胞则没有。除了空间表征,另一项在大鼠中的研究评估了动物与同类互动时的海马体反应,虽然其他动物的存在改变了海马体神经元的放电,但没有发现神经元选择性地对个体大鼠做出反应。然而,其他啮齿动物海马体研究显示了同类的神经元表征,但这些神经元表征的是对其他动物的熟悉度,没有概念细胞那种程度的选择性和不变性——即,没有证明这些神经元对(不同视角的)特定的熟悉同类放电,而不对其他同样熟悉的同类放电。事实上,后来一项使用更多动物的研究表明,除了熟悉度之外,同类的身份可以从一群神经元的活动推断出来,但并未在单细胞水平上明确表征。
在蝙蝠中,海马体神经元也对同类有反应,具有身份和空间的联合编码。此外,最近一项研究野生蝙蝠群体自然(即非任务驱动)互动的研究显示,海马体中的单神经元存在身份编码,并且对特定个体表现出不变性,无论飞行方向以及动物是在飞行中还是在网上看着另一只动物。后一项研究中的神经元更接近人类概念细胞,可能是因为使用了野生动物和自然行为,但仍然具有更有限的选择性和不变性,并显示出与空间的联合表征,这与人类中的不变表征形成对比。
猕猴下颞叶皮层的神经元仅对简单的图像变换(如二维旋转、图像尺寸和位置的变化)具有非常有限程度的不变性。在猕猴的面部斑块中,神经元选择性地对相对较少的面孔做出反应,让人联想到概念细胞。然而,后来证明这些神经元是对视觉特征做出反应,而不是对特定个体。然而,最近一项关于狨猴海马体的研究报告了同类的跨模态身份表征,单个神经元对同一动物的不同图片和声音均表现出反应。然而,这项研究中的不变反应相对较弱,且在试验间不一致,并且如作者所述,由于使用了宽松得多的反应性标准(高于基线活动2个标准差,而人类记录使用5个标准差),以及使用500毫秒的滑动窗口(从0.3到3.5秒)评估反应性(这容易因多重比较引入假阳性),因此难以与概念细胞反应相比较。此外,关于狨猴的结果与猕猴海马体和面部斑块的结果形成对比,后者未发现概念细胞那样的单神经元选择性和不变性程度,并且还显示对同一个体的图片和声音的反应来自不同的神经元,这在人类中从未发生过。
思维的语言
声称海马体在人类中提供了独特的记忆编码,初看起来令人惊讶,因为海马体的结构在不同物种间是保守的,特别是在啮齿动物、猴子和人类中。然而,论点并非人类海马体与其他动物的不同(尽管更大),而是它接收不同的新皮层输入并处理不同类型的信息。前面章节描述的两个实验发现支持这一观点:(1) 人类海马体反应的潜伏期比其他物种观察到的要晚得多(人类为300毫秒,猴子为150毫秒);(2) 人类海马体神经元对刺激的意义做出反应,而不管其视觉(或其他感觉)特征如何。这些发现是相关的。在猴子中,考虑到下颞叶皮层的反应在约100毫秒时被观察到(见Mormann等人的表1),海马体反应潜伏期与来自高级视觉区域的直接前馈投射的预期值一致。尽管由于空间导航研究在该物种中的普遍性,啮齿动物的反应潜伏期证据很少,但最近一项使用移动光栅的研究报告了大鼠海马体中约130-140毫秒的潜伏期,考虑到大鼠外侧-外侧纹状外皮层对视觉输入的反应潜伏期约为70-80毫秒,这也与直接前馈处理兼容。人类中非常晚的海马体反应起始时间原则上可归因于慢得多的视觉处理。然而,人类高级视觉区域的反应潜伏期与猴子中观察到的相当,约为100-150毫秒,这表明人类海马体反应起始时间较晚,很可能是因为在到达300毫秒时的海马体记忆系统之前,需要进一步的新皮层处理以提取刺激的意义(图7)。但为什么人类的信息处理与其他物种不同?简单来说,为什么只有人类拥有概念细胞?
与其他物种的一个明显区别是人类对语言的精细使用,这允许交换信息以沟通不仅关于我们周围环境即时情况,还有关于过去经历和未来计划的复杂思想。语言促进了共享知识和复杂文化的发展。但除了这些优势,正如本视角开头用博尔赫斯的故事所说明的,语言的另一个关键优势是它强化了抽象概念。词语是抽象概念,使我们能够脱离细节和环境来思考概念,并提供一种意义表征,我们在此基础上构建高级思维。当我们说“马”时,我们指的不是一匹赛马、一匹白马或一匹拉车的马。我们指的是“马”这个概念,而不涉及特定动物的具体细节。支持这一观点的是,俄罗斯精神病学家亚历山大·卢利亚(他几十年如一日地偶然检查了一个具有超强记忆力的受试者,类似于博尔赫斯笔下的人物富内斯,并像博尔赫斯一样得出结论,这样的人在抽象思维方面相当有限)认为,在成熟过程中,存在从具体思维转向处理抽象概念的转变,曾经由图像扮演的角色被词语的意义所取代。与这一想法一致,卢利亚的亲密同事列夫·维果茨基声称,大约在两岁时,思想和语言的发展(此前是分离的)结合起来,开启了一种新的行为形式——思想变得言语化,言语转向内部并变得理性,此时机械记忆转变为逻辑记忆,并由意义引导。因此,尽管我们没有直接的实验证据支持这一说法,但似乎可以合理地假设,在人类使用语言经过数万年甚至数十万年的进化之后,概念细胞(以及用于提取刺激意义并传递给海马体记忆系统的新皮层处理)可能与语言共同发展,产生了一个良性循环,促进了人类智能,强化了抽象概念以及促进独特认知能力的机制,包括我们的泛化、想象、元认知和创造性抽象思维能力。然而,天下没有免费的午餐,与拥有专门化、基本上不重叠且依赖于上下文的联合表征的其他物种相比,这可能是以产生更多干扰和错误记忆为代价(另见Reber等人),在不同上下文中混合信息——这是一个值得进一步研究的权衡,可能对理解人类独特认知能力和智能的神经元基础至关重要,甚至可能是理解过去几年中与显著但仍相对有限的人工智能进展的主要差异所在。
情景记忆再审视
恩德尔·塔尔文创造了“情景记忆”(episodic memory)这一术语,将其定义为重温个人经历的能力,并区别于涉及脱离特定上下文的普遍事实的语义记忆。情景记忆涉及“心理时间旅行”,构成情景经历的事件序列被重新访问,因此,海马体——支持情景记忆的关键区域——被认为参与了有意识感知信息的编码和检索,这与概念细胞反应与意识感知相关(图3)的发现一致(然而,参见Reber等人和Henke等人的研究,表明海马体反应也可以由非有意识感知的刺激触发)。然而,如果记忆如本文所提议的那样(图5)通过不变印迹的共激活来编码,那么精确的事件序列重放就不太可能,因为建立复杂的印迹共激活链而不相互干扰且能稳健地整合新序列是困难的。事实上,最近一项受试者必须记住项目序列的研究表明,MTL神经元的放电不编码项目的时间顺序。因此,与其说是对特定经历中发生事件的重放,更合理的看法是将情景记忆视为一个主动的重构过程,该过程基于由海马体印迹共激活提供的图式(如巴特利特所提议),这些印迹提供情景记忆的骨架,并由新皮层中更详细的激活进行补充。在这个框架内,海马体提供了支持意识流和联想的神经机制,这不仅有助于重温过去的经历,也有助于想象未来。
结论
在这篇视角文章中,我们提出概念细胞是人类独有的,并且它们支持高级认知功能。然而,需要注意的是,人类和其他物种海马体表征之间的区别并非绝对。事实上,概念细胞并不总是以相同的方式对给定人物的不同图片产生反应(图2和7B),但这种随刺激特征或上下文的调节是例外而非普遍规则,这与其他物种中普遍存在的海马体联合编码和上下文调节的发现形成对比。
人类中的不变表征表明,缺乏细节、用上下文无关印迹编码的情景记忆,与其说是一次重放,不如说是一次重构,并且人类海马体记忆系统被调谐为代表高级关系以实现理解(涉及推理和泛化),而不是对过去经历的精确回忆。
到目前为止,很少有实验探讨联合表征或不变表征在人类海马体中是否存在,以及存在到何种程度。我们最近认为,海马体提供了一个灵活的机制,可以根据当前任务临时处理不同的输入,并且在该区域描述的多种神经元是同一通用功能的不同表现,这与Eichenbaum的关系理论一致。在这个框架内,海马体可能在特定任务中(暂时)表现出联合编码(参见,例如Courcellis等人),但支持情景记忆的长期海马体神经元表征无法通过模式分离或联合编码(即,在不同上下文中对同一人物或概念具有基本正交的表征)来实现,正如在其他物种中发现的那样,因为这会导致组合爆炸和有限的泛化能力。更普遍地说,人们倾向于寻找适用于不同物种并可外推到人类的大脑功能的一般原则。在这方面,本视角文章的一个主要目标是促进跨物种的定量比较,并提出一个范式转变,不仅要寻找相似性,还要寻找可以解释人类认知能力和智力的差异。
[图表注释汇总(Figure/Table Legends)]
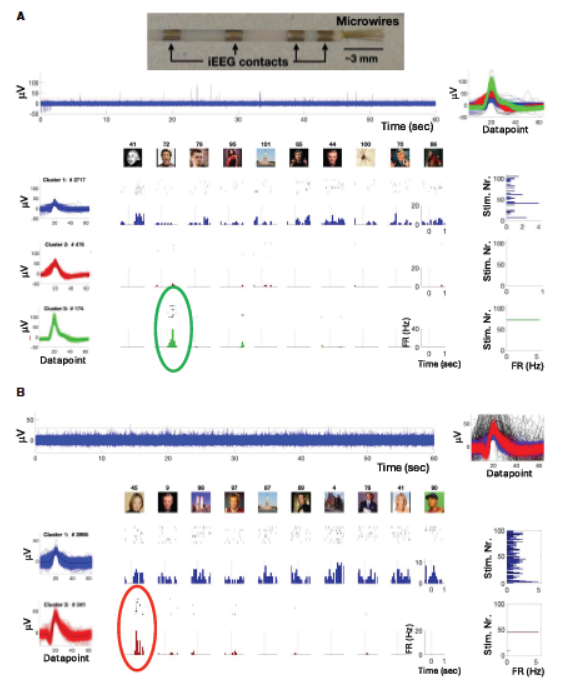 图1.人类单神经元记录与静默神经元
顶部插图:用于单神经元记录的深部电极,带有颅内脑电图(iEEG)触点和从其尖端伸出的微丝。
(A) 连续记录(顶部),检测并分类的峰电位(左侧和右侧插图),以及来自海马体电极的3个已识别单元的反应。第一个簇(蓝色)对应于多单元活动(即几个神经元混合的活动,无法进一步分离),其他则对应于推定的单神经元。绿色的神经元几乎是静默的,仅对演员金·凯瑞的图像有反应。由于篇幅原因,仅展示了109张呈现图片中的10张的反应,但其他图片没有显著反应(右侧图)。
(B) 另一个海马体记录,有一个几乎静默的神经元(红色),它对演员朱迪·福斯特的图片有反应,而对其他98张呈现图片中的任何一张都没有反应。
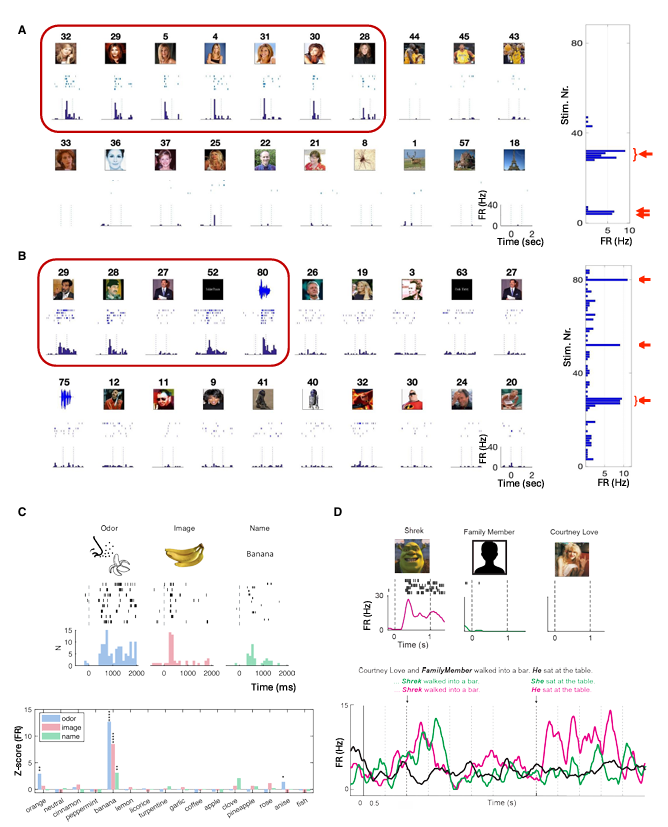 图2.概念细胞反应
(本图主要展示概念细胞的选择性和多模态不变性)
(A) 对演员詹妮弗·安妮斯顿的不同图片有选择性反应的神经元示例。
(B) 对萨达姆·侯赛因的图片、书面名字和口头名字均有反应的神经元示例。
(C) 对香蕉的图像、书面词语“香蕉”和香蕉气味有反应的神经元示例(杏仁核)。
(D) 对电影角色“史莱克”有反应的神经元,在句子中对指代史莱克的代词“他”有反应,而对指代另一概念的代词“她”无反应。
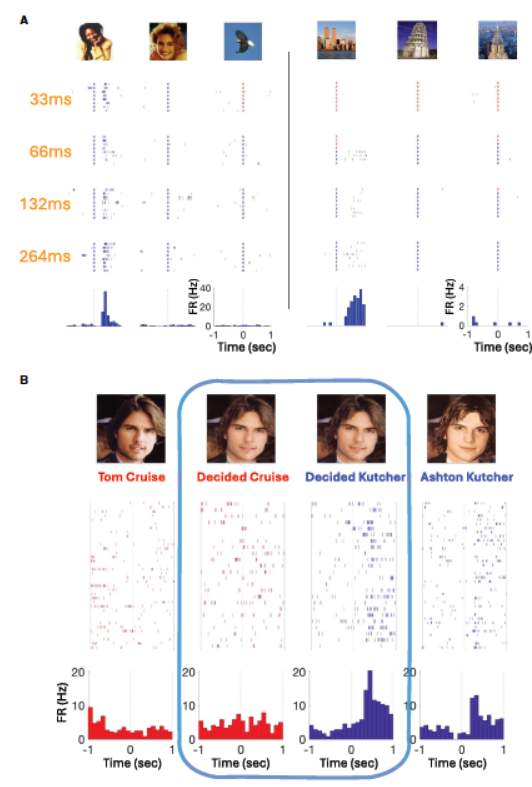 图3.意识感知和模糊刺激下的概念细胞反应
(A) 左:对乌比·戈德堡有反应的神经元,在所有试验中图片均被识别,神经元持续放电。右:对前世界贸易中心有反应的神经元,仅在图片被识别时放电,未被识别时保持静默。
(B) 对阿什顿·库彻(而非汤姆·克鲁斯)有反应的神经元。当呈现两者融合的模糊图像时,仅在受试者将其识别为库彻时放电,识别为克鲁斯时保持基线水平。
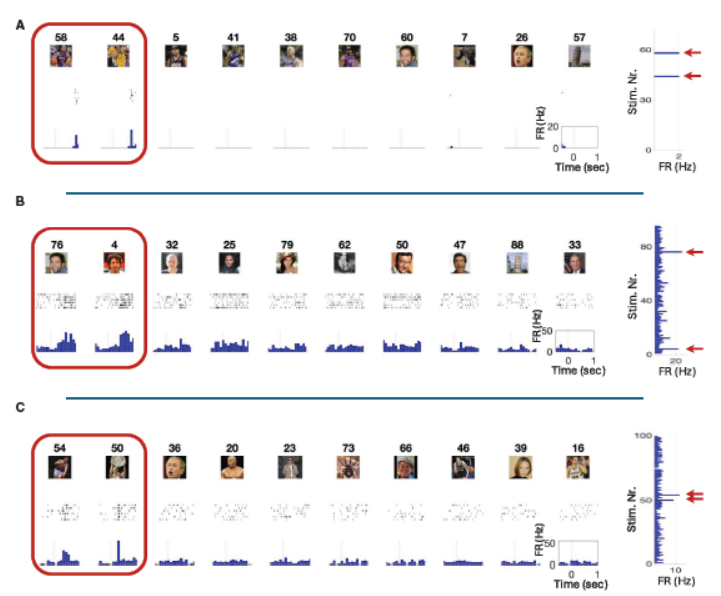 图4.对关联概念的反应
(A) 海马体中的一个神经元,对洛杉矶湖人队的两名篮球运动员(里克·福克斯和科比·布莱恩特;分别为刺激58和44)有反应,但对同一队的另一名球员(卡尔·马龙;刺激5)或其他队的球员(刺激41、38和70)无反应。
(B) 海马体中的一个神经元,对两名研究人员(本综述作者,刺激76,以及一位同事,刺激4)有反应,但对也与患者一起进行实验的另一位同事(刺激32)无反应。
(C) 杏仁核中的一个神经元,对拳击手穆罕默德·阿里和网球运动员玛丽亚·莎拉波娃的胜利图像有反应。
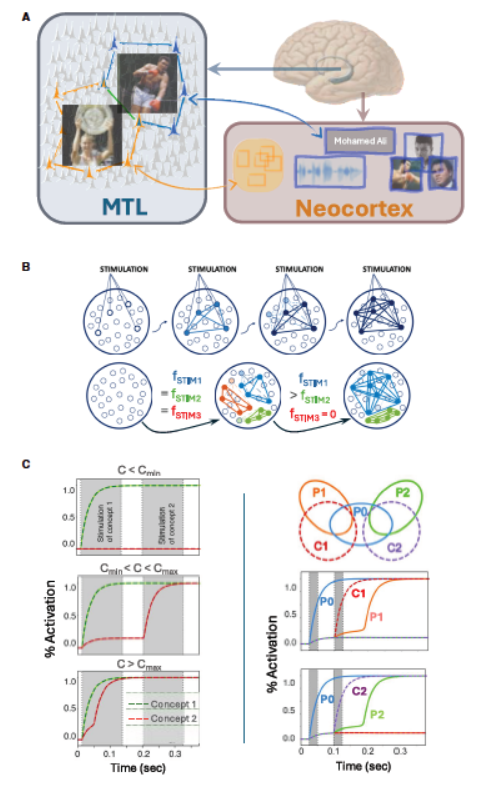 图5.部分重叠印迹的关联编码模型
(A) 概念细胞编码关联的示意图,其中代表不同概念(如阿里和莎拉波娃)的印迹通过共享一部分神经元(重叠部分)来编码关联,实现逻辑“或”功能。
(B) 动态吸引子网络模型显示,根据刺激频率,印迹可以增长、维持或消失。
(C) 左侧:根据印迹间重叠比例的不同(C < C_min, C_min < C < C_max, C > C_max),可分别产生无关联、编码关联但可分离、以及合并三种动态。右侧:通过引入不同上下文(C1, C2),可以区分与同一个人(P0)相关的不同记忆(P1, P2)。
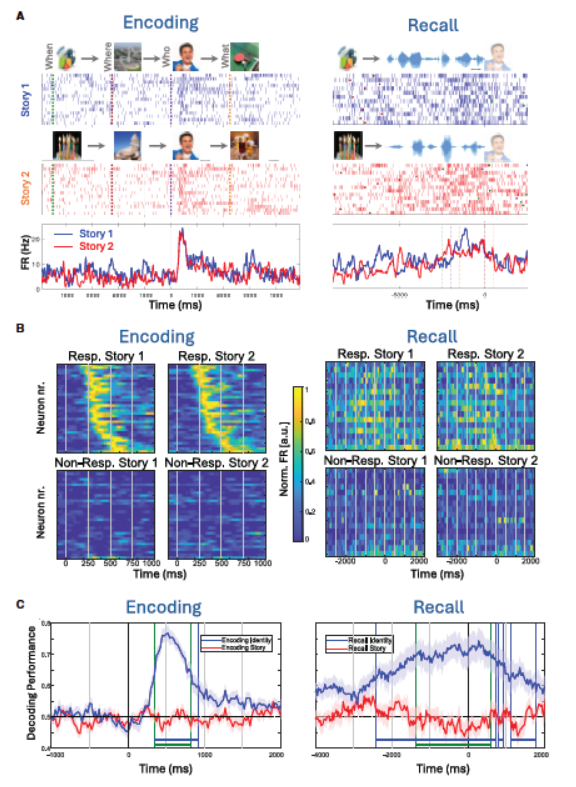 图6.人类MTL中缺乏上下文调节(模式分离)的证据
(A) 示例性神经元,对一位电视名人的图片有反应,并且在两个不同故事(编码和回忆)中对该名人的反应在统计上相同。
(B) 群体数据汇总显示,绝大多数反应性神经元在编码和回忆期间对两个故事中相同概念的反应没有显著差异。
(C) 群体解码分析表明,可以准确预测故事中出现的是哪个人物,但无法区分涉及同一人物的两个不同故事。
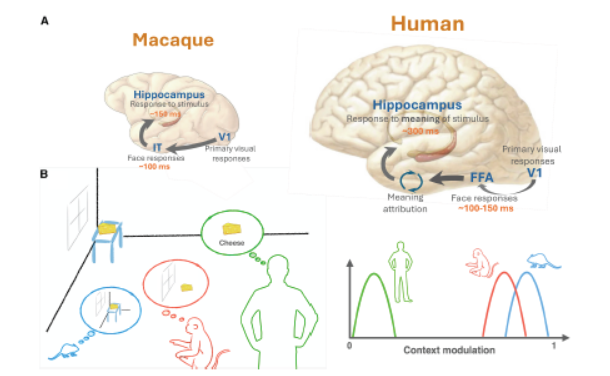 图7.人类与动物海马体处理的差异
(A) 比较猕猴和人类视觉信息传递到海马体的通路和反应潜伏期。人类需要额外的新皮层处理来提取意义,导致海马体反应潜伏期(~300 ms)远长于猕猴(~150 ms)。
(B) 左侧:其他物种(猴、啮齿类)的海马体反应倾向于特征联合和上下文依赖(如“奶酪在桌子上”)。右侧:人类海马体反应更抽象,针对意义(“奶酪”),具有更低的上下文调节程度。
表1.互补的海马体和新皮层表征
(表格内容:左列为特征,中间两列分别为海马体和新皮层的对应特性,最右列为参考文献。
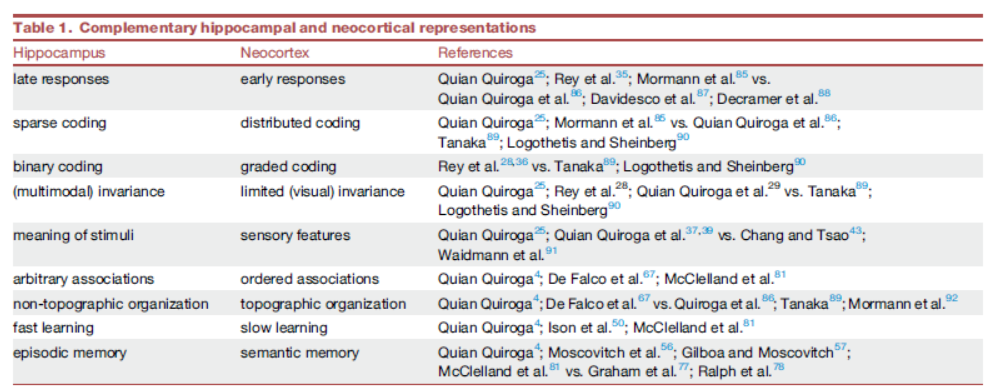 海马体与新皮层神经元表征的主要差异在于:海马体中的神经元负责编码(快速形成的)支撑情景记忆的任意关联,而新皮层中更为有序且层次化组织的信息则需要较慢的学习速率,更适合存储构成语义记忆的事实与关系。