跳到主要内容
饶议科学慢作用G蛋白Gz定义昼夜休息时间的时长
饶 机器翻译//约 29 分钟
慢作用G蛋白Gz定义昼夜休息时间的时长
Youichi Tanaka, Yuto Fujita, Tom Macpherson, Aoi Harui, Sumihiro Kunisue, Genzui Setsu, Xinyan Shao, Daisuke Ono, Takatoshi Hikida, Yoshihisa Fujita, Michiyuki Matsuda, Hitoshi Okamura, Emi Hasegawa, Masao Doi摘要
每晚休息时长是一个个体间差异显著的特征,受多种遗传和环境因素之间复杂相互作用的影响。调控行为/睡眠昼夜节律的中枢时钟位于视交叉上核(suprachiasmatic nucleus,SCN)。然而,SCN如何编码昼夜节律休息时相(circadian rest phase,ρ)的“长度”仍然是一个悬而未决的问题。在此,我们证明独特的G蛋白亚型Gz通过塑造SCN内昼夜节律cAMP-PKA活性波形的形态,参与了这一过程。Gz的基因缺失及随后的表达恢复可逆地改变了ρ时长,从Gz⁺/⁺小鼠的约10小时转变为Gz⁻/⁻小鼠的约7.5小时,同时伴随着SCN中峰值cAMP-PKA活性时长和转录组重塑的比例性变化。值得注意的是,SCN内cAMP激活导致行为性休息,而Gz特异性地塑造了这一反应,但不影响24小时节律性。这些发现表明,SCN不仅是一个节律发生器,而且通过Gz信号主动分配ρ休息期。引言
每晚用于休息或睡眠的时间量在个体之间和动物物种之间存在差异——多种遗传和环境/社会因素影响这一特征。例如,有些人每晚连续睡眠5小时,而另一些人睡眠8小时;人们日复一日地保持相同的模式,具有24小时节律性。这意味着周期性和休息时长很可能是独立的特征。然而,与已充分阐明负责产生24小时节律性的昼夜节律时钟机制相比,我们对控制24小时周期内“休息时长分配”(allocation)的机制知之甚少。在哺乳动物中,视交叉上核(SCN)已被定义为行为和生理昼夜节律的中枢时钟。SCN通过涉及时钟基因的细胞自主转录反馈控制以及通过细胞间通讯实现的细胞间耦合的机制,产生强大的24小时节律性,最终赋予SCN中基因表达、细胞信号传导、代谢和神经元放电率以24小时节律性。尽管如此,SCN在每个24小时周期内分配昼夜节律休息时间和时长的机制仍然不知道。休息时间和时长在SCN分子水平上的表达方式尚未完全理解。独特的G蛋白亚类Gz(最初也称为Gx)是一种进化上保守的脊椎动物G蛋白,属于经典的Gi/o家族。与Gi1、Gi2和Gi3类似,Gz抑制腺苷酸环化酶的活性,从而减少cAMP的合成。然而,Gz不仅仅是“替代品”Gi。正如其名称所暗示的,Gz展示了一系列独特的特性,使其与其他Gi/o成员区分开来。首先,与Gi1/2/3的广泛表达相比,Gz的组织分布相当特异于脑,包括SCN。其次,Gi/o抑制剂百日咳毒素(pertussis toxin,PTX)不抑制Gz。PTX催化在Gi/o中保守的特定半胱氨酸残基上的ADP核糖基化。Gz中该残基的缺失使其对PTX具有抗性,这给该蛋白的药理学方法带来了障碍。第三,与前两点同等重要的是,Gz具有相对较低的GTP酶活性。Gi/o对GTP水解的kcat值在1–5 min⁻¹范围内;然而,Gz显示的活性约慢100倍(kcat,约0.05 min⁻¹)。因此,一旦GTP与其结合,Gz不会轻易回到其非活性形式,导致在时间分辨率上产生延长的信号,这提示Gz和其他Gi在脑信号处理中具有不同的作用。最后,目前关于Gz在中枢神经系统中功能的信息很少:先前的研究表明,Gz敲除小鼠对多种药物治疗(如吗啡、多巴胺D2受体激动剂和血清素受体5-HT1A激动剂)表现出改变的神经元和神经内分泌反应;然而,其在脑生理学中的内源性功能仍有待探索,包括其对昼夜节律时钟的贡献。在本研究中,我们报告了发现Gz对“休息时间分配”机制的关键贡献。Gz在SCN中的基因缺失及随后的表达恢复可逆地改变了昼夜节律休息时段长度,从Gz⁺/⁺小鼠的约10小时转变为Gz⁻/⁻小鼠的7.5小时(此处,“休息”时间代表每个昼夜周期中从活动结束到下一次活动开始的时间间隔)。Gz缺陷不影响昼夜节律时钟的24小时节律性,这强化了Gz特异性地贡献于休息时间分配特征的观点。在分子水平上,我们探索了Gz对SCN中cAMP信号传导和蛋白激酶A(protein kinase A,PKA)活性的贡献。为了解决这一分子信号传导并进一步定义Gz与休息时间分配之间的因果关系,我们使用自由活动的小鼠,进行了基于光纤光度法的SCN内PKA活性节律与行为的同时监测(见方法)。我们的数据显示,Gz介导的信号传导对于维持SCN中cAMP-PKA活性节律的波形是必需的。结果
自由活动小鼠中SCN PKA活性与行为的反相位24小时协调
体外培养的SCN脑片中SCN cAMP信号以昼夜节律方式波动。在本研究中,我们在体内监测了下游的PKA活性振荡。为了确定昼夜休息-活动谱与体内SCN昼夜PKA活性节律在多天中的精确时间关系,我们使用了光纤光度法(图1a,示意图)。在本实验中,我们使用基因编码的基于FRET的PKA生物传感器AKAR3EV来监测体内PKA活性,并采用红外视频追踪系统同时监测动物的日常行为(图1a)。我们进行了长期记录,最初在常规12小时光照:12小时黑暗周期(LD)条件下,然后在持续黑暗(DD)条件下,随后在动物主观夜间进行光脉冲刺激(图1b)。值得注意的是,实时监测揭示了在LD夹带条件下、DD自由运行条件下,甚至在光脉冲诱导的节律相移之后,SCN体内FRET活性与生物体自发性行为活动之间始终呈反相关系(见图1b中绿色显示的昼夜FRET活性和蓝色显示的行为活性的双标绘图时间谱,以及水平序列时间谱)。PKA激活与行为之间的这种反相位时间组织与先前时间序列cAMP酶免疫测定以及cAMP信号相关免疫组织化学的观察结果一致,但在时间分辨率(每5分钟)和监测时长(例如图1b中16天;另见补充图1)方面比这些测定更为精确。通过我们的测定揭示的节律形态,在表征SCN PKA FRET活性节律时引起了我们的注意。首先,我们注意到SCN中PKA FRET活性节律的形态并非平滑的正弦波形。SCN中FRET PKA活性节律的非活性(即谷底)期几乎是平坦的,形成一个宽而延长的波谷。此外,我们发现在LD和DD之间节律形态存在显著的光依赖性差异(图1c,LD与DD):LD中的FRET节律在光照期开始时(按定义,在zeitgeber时间ZT0)表现出陡峭的上升,并在光照期结束时(ZT12)急剧下降;而在DD中相应的变化较为平缓。因此,节律波形在LD周期下呈现“方形”模式,而在DD中呈现钟形曲线(图1b,c)。当小鼠接受眼球摘除术后,SCN FRET活性以钟型(DD型)节律形状自由运行,在L/D转换处没有急性FRET变化,排除了环境光诱导的人造噪音影响我们记录的可能性(补充图1a)。值得注意的是,在主观夜间CT14给予非摘除小鼠光脉冲导致SCN中FRET比值的高幅度诱导,随后在光脉冲后的周期中出现FRET节律的相移(LP,图1b)(另见补充图1b)。重要的是,摘除术导致光诱导的FRET比值急性上调和相移均被消除(假手术与摘除术:FRET相对于昼夜峰值水平的变化倍数,3.57 ± 0.63 vs. -0.01 ± 0.02;相位延迟,1.29 ± 0.15 h vs. 0.01 ± 0.02 h;均值±标准误,P < 0.01,双尾t检验,补充图1c,d)。因此,SCN PKA活性的光依赖性形态是视网膜输入的结果,而非光度法伪影。双重监测SCN内活动与行为结果的主要优势在于能够追踪两者之间的确切时间关系(图1c-e),这是一个神经行为学问题。SCN PKA活性与行为的反相位振荡在DD中持续观察到,两者具有几乎相同的自由运行周期,均略小于24小时(FRET为23.74 ± 0.04 h,行为为23.80 ± 0.10 h,通过FFT-NLLS确定;n = 6)。我们将这两个节律的平均日谱绘制在同一图中,以便比较它们的时间关系(图1c;CT12根据每只动物的行为定义;详见方法)。我们发现SCN中FRET活性开始上升对应于行为非活动(静息)期的开始。另一方面,SCN FRET活性逐渐减弱的结束对应于夜间行为活动的开始(按定义为CT12)(图1d)。我们发现,在静息期,当动物处于静止状态且其行为处于基础水平时,FRET活性维持在中等至高水平。值得注意的是,FRET活性在行为开始前几个小时就开始下降。FRET活性降低50%的时间(CT11.13)早于行为活动半最大诱导的时间(约CT12,CT12.14)(见图1e,P < 0.001,配对t检验)。这些数据表明,SCN内PKA活性的中高水平持续峰值期与休息时长的维持有关。G蛋白Gz缺乏导致休息期和PKA峰值期长度缩短
为了识别SCN中昼夜PKA活性的相关分子介质,我们重点研究了G蛋白Gz(图2)。Gz是异三聚体Gi蛋白家族的成员,主要在脑中表达,包括SCN,但其在SCN中的作用,特别是对体内昼夜行为调节的贡献,尚不清楚。我们发现,Gz α亚基编码基因(Gnaz)靶向缺失的小鼠(此处称为Gz⁻/⁻小鼠,图2)与野生型对照小鼠(Gz⁺/⁺)相比,显示出显著缩短的昼夜休息期,并同时表现出SCN PKA活性峰值活动时长受限(图2a-e,行为;图2f-i,FRET PKA活性;数据量化见下文)。首先,基于活动图,我们比较了Gz⁻/⁻小鼠和Gz⁺/⁺小鼠的行为参数(ρ、α和τ):两种小鼠的夜间活动都是双峰的,显示出晨昏成分,与先前报道一致。然而,基因型相关的行为差异在“休息”时间(ρ)的时长上很明显:此处根据定义,ρ代表昼夜周期中从活动结束到下一次活动开始的间隔(见活动图下方蓝色条,代表ρ时段长度,图2a)。量化显示,Gz⁻/⁻小鼠的ρ比Gz⁺/⁺小鼠短约2.5小时(P < 0.0001,双尾t检验,图2e;Gz⁻/⁻小鼠ρ = 7.66 ± 0.36 h,n = 12;Gz⁺/⁺小鼠ρ = 10.09 ± 0.36 h,n = 10)。值得注意的是且一致的是,通过FRET测量的Gz⁻/⁻小鼠SCN PKA活性显示出类似的PKA活性峰值期时长缩短(见图2f):当FRET峰值期定义为每个周期中上升期中点与下降期中点之间的间隔时,我们发现Gz⁻/⁻小鼠的峰值期比Gz⁺/⁺小鼠短约2.5小时(Gz⁻/⁻为8.07 ± 0.25 h;Gz⁺/⁺为10.59 ± 0.12 h;P < 0.0001,双尾t检验,两种基因型各n = 6,图2h)。类似表型也体现在体外SCN脑片培养中(图2j-l):Gz⁻/⁻ SCN脑片复现了峰值时长受限的昼夜FRET PKA活性节律——其峰值时长比Gz⁺/⁺脑片短约3.5小时(Gz⁺/⁺为12.11 ± 0.47 h;Gz⁻/⁻为8.57 ± 1.09 h;图2l);因此,该表型是SCN固有的;并且在体外观察到的表型更为显著。我们的数据表明,Gz缺乏导致小鼠SCN中PKA峰值期缩短和行为ρ缩短。以ρ长度减少为代价,“活动”时间(α,根据定义,活动开始与结束之间的长度)在Gz⁻/⁻小鼠中相应增加了约2.5小时(Gz⁺/⁺为13.66 ± 0.36 h;Gz⁻/⁻为16.15 ± 0.33 h,图2e;另见图2a中橙色α长度)。然而,这并不表示活动过度表型:虽然定义为α的时间长度增加了,但在Gz⁻/⁻小鼠中,α期中间的活动水平有代偿性降低(见图2a中的灰色休息区),导致Gz⁻/⁻小鼠与Gz⁺/⁺小鼠在每日总活动量(图2c)或总活动时长(图2d)上没有统计学差异。此外,我们观察到自由运行周期(τ,即α与ρ之和)的值在两种基因型之间几乎相同,意味着Gz⁻/⁻小鼠在节律性方面是正常的(比较图2b的行为;图2g,k的体内外PKA活性)。因此,我们的数据表明,尽管Gz⁻/⁻小鼠表现出SCN PKA活性峰值期和休息时段长度的严重缩短,这两个事件保持相互同步,周期约为24小时(见图2f中Gz⁻/⁻的协调反相位FRET活性(绿色)和行为(黑色),以及Gz⁻/⁻中FRET下降50%早于行为开始,图2i)。这种异常的PKA活性峰值长度与缩小的ρ之间的紧密共现表明,Gz⁻/⁻的主要直接行为表型是导致ρ缩短,而不影响τ。我们观察到所有检查的Gz⁻/⁻小鼠的活动图均显示ρ缩短(补充图2)。使用脑电图(EEG),我们扩展了这一观察。总体而言,Gz⁻/⁻小鼠在24小时全天中,对于觉醒、NREM和REM睡眠的EEG功率谱分布、总时间、发作次数和发作时长均正常(图3a,b,遥测数据)。然而,由睡眠-觉醒周期决定的巩固的昼夜休息期长度(即昼夜睡眠开始与结束之间的时长)在Gz⁻/⁻小鼠中缩短(7.73 ± 0.33 h),而Gz⁺/⁺小鼠为10.40 ± 0.28 h(P < 0.001,ρ,Gz⁻/⁻ vs. Gz⁺/⁺,双尾t检验;Gz⁻/⁻小鼠n = 6;Gz⁺/⁺小鼠n = 4),并且在Gz⁻/⁻小鼠中观察到午睡睡眠的代偿性增加(图3c,d),而不影响τ(Gz⁺/⁺为23.62 ± 0.06 h,Gz⁻/⁻为23.64 ± 0.11 h)和总睡眠时间(见图3d)。这些数据与基于活动图的数据(图2a-e)一致,并强化了Gz⁻/⁻小鼠ρ时长减少的表型。在SCN中重新表达Gz足以逆转Gz⁻/⁻小鼠的ρ长度
由于Gz mRNA表达不限于SCN,而是广泛分布于全脑,因此SCN外区域的Gz缺失可能是Gz⁻/⁻小鼠表型的原因。也有可能ρ表型是继发于发育过程中Gz缺失导致的SCN潜在发育缺陷。因此,我们接下来试图检验在成年小鼠SCN中重新表达Gz是否具有逆转Gz⁻/⁻小鼠ρ表型的效果(见图4)。为了验证这一点,我们监测了Gz⁻/⁻小鼠在向SCN注射编码Gz的腺相关病毒(AAV-hSyn-Gz-2A-mCherry)或仅编码mCherry的对照病毒(AAV-hSyn-mCherry)前后的ρ值(图4a)。在处理前,确认每只Gz⁻/⁻小鼠显示缩短的昼夜ρ长度,约8小时(7.92 ± 0.41 h,图4b)。然而值得注意的是,接受SCN内AAV介导的Gz重新表达的Gz⁻/⁻小鼠,其ρ延长至11.82 ± 0.44 h(P < 0.0001,配对t检验vs. AAV前,n = 11,图4b),该值某种程度上超过了在野生型Gz⁺/⁺小鼠中观察到的值(10.09 ± 0.36 h,见图2e)。与这种显著的ρ延长效应相反,Gz的重新表达没有显著改变昼夜节律周期(τ),个体差异小于约0.3小时(见图4b)。重要的是,所有检查的接受SCN内Gz重新表达的Gz⁻/⁻个体小鼠均显示出ρ的逆转,而τ无明显变化(个体活动图数据见补充图3)。另一方面,在SCN中接受对照mCherry病毒注射的Gz⁻/⁻小鼠继续表现出ρ缩短表型(P = 0.203,AAV前vs. AAV后,n = 9,图4c;另见补充图3),且τ长度预期几乎不受影响。这些数据表明,在SCN中递送的Gz表达(而非mCherry)能有效且充分地逆转Gz⁻/⁻小鼠的ρ表型。这种SCN内Gz对ρ的有效挽救呼应了SCN是昼夜行为控制中枢组织者的观点。Gz表达重塑SCN中自主昼夜PKA活性节律的波形
我们的数据表明,Gz的重新表达可以重塑或恢复SCN功能——即使在发育完成之后。为了深入探讨这一含义,我们接下来使用SCN脑片培养,提出两个问题:1)Gz重新表达能否恢复体外SCN脑片中PKA活性的异常波形?——这个问题涉及脑片中PKA活性的稳态(或已建立的节律波形)在Gz重新表达后是否可以被重塑;2)这一重塑过程背后涉及哪些时间转换?——鉴于Gz抑制cAMP信号,在Gz重新表达后,波形(或平衡)如何转变仍然是一个问题。我们追踪了培养的器官型SCN脑片在感染Gz或mCherry前后昼夜FRET PKA活性节律的波形(图5)。在处理前,Gz⁻/⁻脑片的节律(见图2j-l)特征为异常延长的谷底时相长度。然而,这种谷底期的延长在分子水平上有些反直觉,因为Gz(一种cAMP抑制因子)的缺失会减少抑制(谷底)期而非延长它。为了解决这个问题,我们观察到在AAV感染后3-5天内,Gz的重新表达降低了PKA活性的谷底基础水平,导致更尖锐、更窄的波谷(图5a,c,d)。重要的是,mCherry的对照表达没有产生这种变化:因此,是Gz而非mCherry或感染伪影导致了PKA活性节律波形的改变。我们数据的量化证实,τ不受Gz重新表达的影响(图5b),而PKA活性的谷底长度以及谷底平均强度在Gz表达后显著降低(图5c,谷底长度,AAV前为11.93 ± 0.81 h,AAV后为9.00 ± 1.15 h;图5d,谷底强度,相对于AAV前,在第3-5周期为0.972 ± 0.004,两种条件均n = 7)。基于感染后3-5天获得的表型,我们预期节律会继续以降低的谷底活性延续,这与Gz的预期作用一致。然而,出乎意料的是,当培养物维持较长时间(约8-10天)时,我们观察到对于所有测试的挽救脑片,PKA活性水平停止下降并转而上升至甚至高于AAV感染前的水平(图5a,d,谷底强度,相对于感染前,在第8-10周期为1.07 ± 0.01,P < 0.0001,重复测量双因素ANOVA与Bonferroni事后检验)。这种上升伴随着谷底时段长度的持续缩短(P = 0.22,第3-5周期vs. 第8-10周期,图5c)。这些数据表明,SCN中Gz重新表达导致的PKA活性节律重塑过程可能涉及多个未知的调节过程,这些过程独立地影响波形和水平,无法用Gz简单的cAMP抑制作用来解释。Gz表达上调cAMP信号激活物Gₛ的表达
为了深入了解Gz挽救的SCN脑片中PKA活性节律上调的机制,我们进行了RNA-seq分析(图6)。感染后10天,收集感染Gz或对照mCherry的Gz⁻/⁻ SCN脑片(每组n = 3个RNA-seq样本;每个样本由3个脑片混合而成)。为保持一致性,所有挽救的脑片在取样前均通过FRET监测确认具有升高的PKA活性节律。我们在第10天的早期峰值期收集样本。此外,为了确保消除感染带来的潜在混杂因素,我们同时分析了来自未感染的野生型Gz⁺/⁺脑片以及未感染的Gz⁻/⁻脑片的RNA样本作为比较(图6a,左:未感染Gz⁺/⁺与Gz⁻/⁻ SCN;右:AAV-Gz挽救与AAV-对照Gz⁻/⁻脑片转录组)。这一组合的无偏分析揭示,编码刺激性G蛋白Gs α亚基(Gnas)——cAMP合成的刺激物——的基因在Gz表达挽救后上调的基因中(图6b,Gnas)。Gnas表达在Gz缺失时相反地降低,提示Gs与Gz(抑制剂)之间维持cAMP稳态平衡。Gnas的这种关联表达可以部分解释由于Gz表达导致的PKA活性上调机制。除了Gs,在Gz⁻/⁻脑片中Gz重新表达后还存在广泛的转录组重塑。因此,我们比较了Gz⁻/⁻与Gz⁺/⁺以及AAV-Gz挽救与AAV-对照Gz⁻/⁻ SCN转录组,并生成了受Gz存在影响的基因群(蓝色高亮表示因Gz存在而上调的基因,红色表示因Gz缺失而上调的基因)(图6a)。对差异表达基因(图6a,蓝色203个,红色259个;基因列表见补充数据1)进行基因本体(GO)富集分析,揭示最高的富集在“G蛋白偶联受体信号通路”,涉及超过46个基因,包括Gabbr2(GABA B受体2,已知向Gi信号传导)、Grm7(谷氨酸代谢型受体7,与Gi偶联)、Gpr139(GPR139,孤儿受体)和Gnas(图6b,6c,补充数据1)。离子通道编码基因Gabra5(GABA A受体亚基α5)、Grin2c(谷氨酸[NMDA]受体亚基2C)和Grin3a(谷氨酸[NMDA]受体亚基3A)也根据Gz表达差异表达(图6b)。我们还观察到精氨酸加压素(Avp)基因——已知作为维持SCN正常昼夜振荡至关重要的神经肽——及其下游基因Avpi1(精氨酸加压素诱导的1)在Gz⁻/⁻脑片中下调,并在Gz重新表达后恢复(图6b)。这些适应性和可逆的基因表达变化表明,Gz基因是影响SCN中基因表达状态的功能性组分。除了作为cAMP信号传导的直接调节因子导致功能性PKA活性波动外,Gz还可能发挥其间接效应,导致G蛋白Gs、神经肽AVP、其他GPCR、离子通道和RGS的表达变化。我们的数据表明,无论是直接的、间接的,还是两者结合,SCN中挽救的Gz的作用最终重塑了SCN中昼夜PKA活性水平及由此产生的峰值期长度(图6d;模型)。通过PKA FRET活性追踪的昼夜节律信号验证
最后,我们希望验证我们的方法。我们使用了PKA传感器作为Gz-cAMP信号读取器,反映中枢时钟的昼夜节律活动。然而,这可能并非完全正确。我们FRET PKA活性监测(图1-6)结果的一个潜在缺陷是,它可能无意中反映了SCN中cAMP无关或昼夜节律时钟无关的信号变化,这可能导致误导性观察。为了解决这一顾虑,我们最后检测了缺乏核心时钟组分Bmal1(Bmal1⁻/⁻)的SCN脑片中的FRET活性模式(图7a,b)。我们还检测了在腺苷酸环化酶(AC)活性药理学抑制下的野生型脑片(图7c,d)。Bmal1⁻/⁻脑片产生低振幅、不稳定的节律性,周期在13至20小时之间变化,显著短于野生型脑片一致的约24小时。Bmal1⁻/⁻脑片中不稳定的峰-峰间隔也很明显(图7a,b)。使用强效、选择性灭活剂MDL-12,330A对AC进行药理学失活,在给药后立即抑制了野生型SCN脑片中的昼夜FRET PKA活性节律,而在去除抑制剂后FRET活性迅速恢复(图7c,d)。这些数据证实,迄今观察到的PKA活性振荡是由昼夜节律时钟驱动的,并位于AC介导的信号传导的下游。为了直接评估cAMP节律,我们还采用了基于荧光素的cAMP生物传感器Okiluc-aCT。将编码Okiluc-aCT的AAV转导到SCN脑片培养物中(图7e,示意图)。重要的是,该测定复现了Gz⁻/⁻ SCN脑片延长的谷底/缩短的峰值期表型(谷底长度,Gz⁺/⁺为12.42 ± 0.48 h,Gz⁻/⁻为15.23 ± 0.53 h,P < 0.01;峰值期,Gz⁺/⁺为12.40 ± 0.63 h,Gz⁻/⁻为9.28 ± 0.70 h,P < 0.01;图7e,f)——基因型间差异约3小时,且不影响总τ,验证了我们的FRET PKA活性观察结果(图2l)。最后,我们使用Beggiatoa光激活腺苷酸环化酶(bPAC)操纵细胞内cAMP,并询问SCN中这种cAMP信号激活是否在减少行为活动方面起作用。如图7g所示,我们使用AAV hSyn-flex-bPAC载体在Slc32a1-Cre小鼠的SCN中引入bPAC表达以实现SCN靶向。我们注意到,cAMP合成的光遗传学刺激导致行为减少,而仅表达mCherry的对照小鼠中相同的光刺激对行为没有显著影响(P < 0.01,仅针对bPAC表达小鼠的刺激前与刺激期间比较)。这些数据与我们的模型(图6d)一致,并解释了体内cAMP/PKA活性节律与行为之间的反相位协调(图1,2)。讨论
休息-活动行为的日间谱是作为SCN中主时钟的输出而表达的。除了为生物体提供节律性(τ)外,SCN还在指导生物体的行为时机和时长——“活动(α)”与“休息(ρ)”方面发挥作用。然而,与对节律产生机制的广泛研究相比,ρ(或α)的日间时间模式在体内SCN分子水平上的表达方式仍未得到探索。通过结合动物行为监测和基于长时程光纤光度法的自由活动小鼠PKA活性实时追踪,我们揭示了SCN在体内展示的昼夜PKA活性与ρ同步发生。值得注意的是,独特的G蛋白亚类Gz作为SCN中cAMP-PKA信号传导的关键调节因子,参与了这一过程。Gz的基因缺失及随后的表达恢复可逆地改变了昼夜休息(ρ)时长,从Gz⁺/⁺小鼠的约10小时转变为Gz⁻/⁻小鼠的7.5小时,同时伴随着SCN中PKA峰值期长度的比例性变化。这种可逆性仅影响ρ的长度和SCN cAMP-PKA活性节律的峰值时长,而不影响昼夜节律周期(τ)。因此,Gz在中枢时钟调节ρ的“输出”系统中具有独特的适应性:我们的数据表明,Gz通过塑造SCN中昼夜cAMP-PKA活性节律的波形,参与定义生物体的昼夜休息期(参见补充图4中的模型总结)。我们的研究是在Gz研究领域与昼夜节律时钟生物学的交叉点上进行的。Gz一直是一种神秘的G蛋白亚型,其独特特征包括脑特异性表达、PTX不敏感性、与其他Gi/o相比低的内在GTP酶活性、缺乏下游转录效应的信息,以及仅在脊椎动物中保守(例如,果蝇中不存在)。这些特征历史上阻碍了对此G蛋白亚型的深入功能分析。在此背景下,我们提供了证据表明Gz作为一种功能性G蛋白,参与SCN中cAMP通路的时程调节。与经典的Gi/o相比,Gz具有显著较低的GTP酶活性——约慢100倍(Gi/o对GTP水解的k_cat值在1-5 min⁻¹范围内,而Gz约为0.05 min⁻¹)。因此,一旦被激活(GTP结合),Gz在其活性状态下保持较长时间,导致信号延长。这一特性可能与Gz参与昼夜节律时钟的时程调节有关。我们的RNA-seq数据进一步确定了Gz的下游转录组效应——Gz信号传导的间接作用——这可能有助于cAMP信号传导基础水平的稳态控制。特别是,Gz可逆地改变了Gs的表达,表明Gs(“加速器”)与Gz(“刹车”)之间的平衡对于稳态的重要性。虽然果蝇不拥有Gz,但祖先G蛋白Gi可能在果蝇起搏器神经元中与Gs扮演着平衡作用,据报道Gs偶联的色素分散因子(Pdf)受体PdfR和Gi偶联的代谢型谷氨酸(Glu)受体mGluRA以协同方式控制昼夜cAMP信号振荡。相关地,我们的RNA-seq数据发现Grm7(mGluRA的同源物)被Gz缺乏上调(图6),暗示物种间存在共同机制,而Gz本身已知是脊椎动物的创新。我们表明,Gz的重新表达可以恢复SCN功能——即使在发育完成后,甚至在离体培养后(图4,行为;图5,培养的SCN)。这些观察强烈提示,Gz介导的恢复所需的所有分子基础即使在发育后、即使在分离后也存在于SCN中——无需来自SCN外区域的任何额外或补充输入。因此,我们推测,能够在局部SCN网络中起作用的Gz偶联GPCR可能参与这种组织自主的重塑机制。有人可能会推测Gpr176(一种存在于SCN中的Gz偶联GPCR)的潜在参与;然而,Gpr176⁻/⁻小鼠不显示ρ缩短表型。因此,需要全面理解SCN中Gz偶联GPCR信号,以阐明Gz恢复ρ的机制——这是我们未来研究的方向。在SCN的其他GPCR中,血清素5-HT₁A受体与Gz和Gi均偶联。Gabbr2和Grm7(在Gz⁻/⁻ SCN中被鉴定为差异表达基因的两个GPCR;图6b)的潜在参与也值得研究,因为它们除了Gi外也可能与Gz偶联。我们利用了SCN内活动与行为的双重实时监测的优势。这使我们能够识别体内SCN中PKA活性的独特时间谱(图1)。传统观点认为cAMP-PKA激活的时间进程是相当短暂的;然而,在正常野生型小鼠的SCN中,它确实持续超过十小时。此外,这种活性的时机与ρ的发生严格对齐。无论基因型(Gz⁺/⁺或Gz⁻/⁻),SCN PKA活性的上升和下降与ρ的开始和结束一致,因此PKA活性峰值期在每个周期中紧密分配给ρ。这些以小时为尺度的独特时间谱可能代表了SCN输出流的特征,调节ρ。SCN中PKA活性的非活性期几乎是平坦的,形成一个宽而延长的波谷,这进一步支持其在定义α和ρ之间边界中的作用。这些观察和意义可能构成理解休息-活动行为昼夜节律动态的神经行为学基础。我们的发现与睡眠调节研究有何关系?——已提出两个关键过程构成睡眠调节的基础,一个代表稳态睡眠调节,另一个代表对睡眠时机的昼夜节律控制(见参考文献)。在这个范式中,我们在SCN中发现的Gz的作用——即通过Gz决定巩固的昼夜休息的时间和时长——可归因于昼夜节律过程。然而,我们应该提到,Gz既不是节律产生也不是周期确定所必需的;我们的数据表明,Gz在昼夜节律过程中扮演着独特的角色,因为它只影响ρ的大小(输出塑造:补充图4)。值得注意的是,Gz⁻/⁻小鼠的每日总睡眠时间与野生型小鼠相当(图3b),表明这些小鼠的稳态睡眠调节未受损。Gz⁻/⁻小鼠在α中期表现出增加的睡眠时间(图3c),表明这些小鼠有代偿性的午睡休息。这些数据强化了Gz在不损害睡眠稳态的情况下贡献于昼夜节律过程的观点。昼夜ρ长度调节过程与稳态睡眠调节过程之间潜在的功能性串扰是一个有趣的待研究可能性。如何决定巩固的睡眠/休息时间区间的“长度”是一个独立于其以一定周期性循环的问题。在此研究背景下,通过研究以前未表征的G蛋白亚型Gz(Gx),我们获得了第一个有助于ρ分配的分子实体。Gz可逆地调节ρ的长度而不影响τ。因此,SCN不仅仅是24小时的节拍器。在SCN中,Gz通过塑造组织中cAMP-PKA活性节律的波形,构成了特定输出行为——ρ——的时间分配机制。因此,我们证明SCN通过Gz信号编码ρ长度的信息。鉴于Gz对ρ时长的可逆效应,调节Gz介导的信号传导——无论是激活还是抑制——可能对ρ休息时间干预具有潜在意义。图表图例
图1 |自由活动小鼠体内SCN PKA活性与行为节律的纵向监测。a 实验装置。使用基于FRET的PKA活性生物传感器AKAR3EV,通过光纤光度法追踪SCN PKA活性。同时通过红外相机监测运动活动。图片显示光照期和黑暗期的示例视频图像。b 代表性的双标绘图SCN PKA FRET活性(左)。小鼠在LD条件下从第1天至第4天,之后在DD条件下从第5天至第16天,除了在第13天CT14接受一个短暂的光脉冲(LP)。自发运动活动(蓝色)叠加在FRET活性(绿色)记录上以直接比较相位(右)。相同数据也水平地绘制成线图(底部)(黑暗期用灰色阴影背景表示)。c LD和DD条件下SCN FRET和行为的平均日活性谱。n = 6只AKAR3EV小鼠。误差条表示标准误。d 圆形Rayleigh图显示SCN FRET活性(绿色)和行为(黑色)的相位分布。高于总FRET/行为活动均值的数据点用代表不同动物的符号绘制(n = 6)。圆内箭头为Rayleigh图向量。e 围绕CT12和CT0的FRET活性和行为的50%上升和下降时间的量化(d)。*P < 0.001,P < 0.01。配对双尾Student t检验。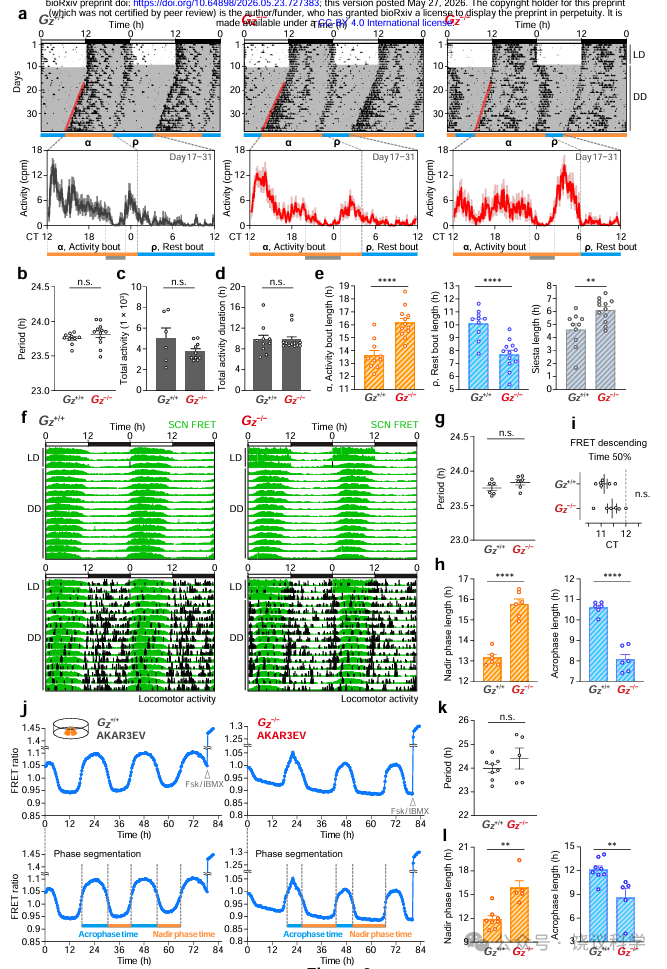 图2 | GnaZ缺乏对昼夜节律行为和SCN PKA活性谱的影响。a Gz⁺/⁺和Gz⁻/⁻同窝小鼠在LD随后DD条件下的代表性双标绘图运动活动图。红线描绘活动开始的相位。从CT12开始的平均昼夜活动谱以线图显示。彩色横条表示不同的活动时段(α)和休息时段(ρ)长度,由黎明前运动活动结束确定。灰色条表示活动期中段的午睡休息。b-e Gz⁺/⁺小鼠(n = 10)和Gz⁻/⁻小鼠(n = 12)的周期长度(b)、总活动量(c)、总活动时长(d)以及α、ρ和午睡时长(e)的量化。P < 0.01,****P < 0.0001。f Gz⁺/⁺和Gz⁻/⁻小鼠体内SCN AKAR3EV FRET活性的代表性双标绘图,叠加其自发运动活动,在LD随后DD条件下。g-i(f)中体内FRET活性节律的周期长度(g)、谷底和峰值期长度(h)以及50%下降时间(i)的量化。n = 6只AKAR3EV Gz⁺/⁺小鼠;n = 6只AKAR3EV Gz⁻/⁻小鼠。P < 0.001。j Gz⁺/⁺和Gz⁻/⁻小鼠培养SCN脑片离体AKAR3EV FRET活性代表性轨迹。下方轨迹显示谷底期(橙色)和峰值期(蓝色)分离。应用Fsk/IBMX以验证脑片活性。k,l(j)中周期长度(k)以及谷底期和峰值期长度(l)的量化。周期通过快速傅里叶变换-非线性最小二乘法(FFT-NLLS)确定。n = 8个AKAR3EV Gz⁺/⁺ SCN脑片;n = 5个AKAR3EV Gz⁻/⁻ SCN脑片。**P < 0.01。(b-e, g-i, k, l)中误差条表示标准误。统计方法:非配对双尾Student t检验。n.s.,不显著。
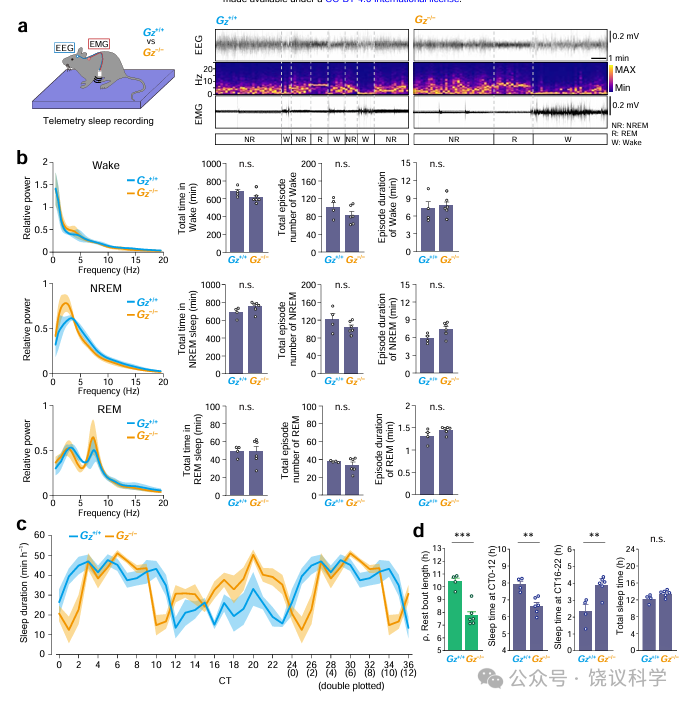 图3 |通过睡眠-觉醒周期记录评估昼夜休息期时长。a 遥测睡眠记录示意图以及Gz⁺/⁺和Gz⁻/⁻小鼠的代表性EEG轨迹、EEG功率谱、EMG轨迹和指定的清醒状态。b Gz⁺/⁺(n = 4)和Gz⁻/⁻小鼠(n = 6)在觉醒、NREM和REM睡眠期间的EEG功率谱。数值(均值±标准差)显示来自3个连续昼夜周期的数据。条形图表示每个昼夜周期中觉醒、NREM和REM睡眠的平均总时间、发作次数和时长。c Gz⁺/⁺和Gz⁻/⁻小鼠每小时睡眠时长的昼夜谱(b)。数据双标绘图。浅色阴影区域表示标准误。d ρ长度以及CT0-12、CT16-22和CT0-24(总)睡眠时间的量化。CT6显示为ρ的中点。P < 0.001,P < 0.01,双尾t检验。(b)和(d)条形图内的误差条表示标准误。图4 |在SCN中重新表达Gz可恢复Gz⁻/⁻小鼠的正常休息时段长度。a 向Gz⁻/⁻小鼠SCN注射AAV-Gz-2A-mCherry或其对照AAV-mCherry。脑切片显示AAV注射小鼠SCN中的mCherry荧光。比例尺,0.4 mm。b Gz⁻/⁻小鼠在AAV-Gz-2A-mCherry注射前后(n = 11只小鼠)的代表性双标绘图活动图以及α、ρ和周期长度的量化。红线表示病毒注射操作时间。c 与(b)相同,但为AAV-mCherry注射(n = 9只小鼠)。***P < 0.0001。配对双尾t检验。n.s.,不显著。图5 |重新表达Gz重塑PKA活性波谷。a 感染AAV-Gz-2A-mCherry(上)和AAV-mCherry(下)的培养Gz⁻/⁻ SCN脑片代表性AKAR3EV FRET活性轨迹。阴影区域表示AAV处理期。b-d AAV感染前后(选定周期)FRET活性节律的谷底时长(c)、谷底强度(d)和周期长度(b)的量化。数据代表生物学独立的脑片,AAV-Gz-2A-mCherry组n = 7,AAV-mCherry组n = 4。P < 0.0001,P < 0.001,*P < 0.05。误差条表示标准误。重复测量双因素ANOVA与Bonferroni事后检验。n.s.,不显著。图6 | Gz表达重塑SCN中cAMP信号介质的基因表达。a RNA-seq数据显示WT与Gz⁻/⁻ SCN脑片转录组(左)以及AAV-Gz挽救与AAV-对照Gz⁻/⁻脑片转录组(右),以MA图格式呈现。数值基于每组n = 3个生物学独立RNA-seq样本的均值;每个RNA-seq样本使用3个SCN脑片的混合物生成。蓝色和红色绘图分别代表在Gz(+)条件下显著上调和下调的转录本(P_adjusted < 0.05,DESeq2双因素ANOVA Gz(+) vs Gz(-))。b 在(a)中注释为Gz(+)条件下上调或下调的代表性基因转录本。注意编码cAMP激活物Gnas(Gsα)的转录本在Gz⁻/⁻(KO,红色)中相比Gz⁺/⁺(WT,蓝色)降低,并通过基于AAV的Gz挽救(蓝色)相比mCherry对照(红色)得以恢复。c 基于Gz(+) vs Gz(-)条件的GO富集分析气泡图。d 示意图模型,描述Gz在塑造SCN昼夜PKA活性中的直接和间接作用。
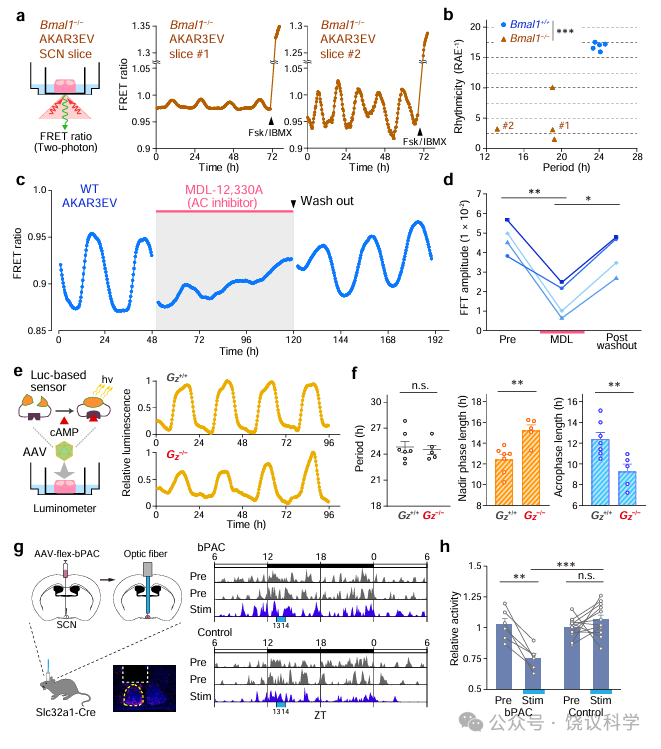 图7 |昼夜PKA活性源自SCN内在时钟介导的cAMP信号传导。a Bmal1⁻/⁻ SCN脑片中AKAR3EV FRET活性波动的代表性记录。应用Fsk/IBMX以验证双光子成像和SCN脑片活性。b (a)中节律以及WT脑片的FFT-NLLS分析,显示为周期与节律性图(WT:n = 5,Bmal1⁻/⁻:n = 4个生物学独立脑片)。节律性计算为相对振幅误差(RAE⁻¹)的倒数。*P < 0.001。c MDL-12,330A处理对昼夜AKAR3EV FRET活性的可逆抑制。d(c)的FFT-NLLS振幅分析。每条数据线代表单个SCN脑片(n = 4)。*P < 0.05,P < 0.01。e 感染AAV-Okiluc-aCT的培养Gz⁺/⁺和Gz⁻/⁻ SCN脑片的代表性生物发光轨迹。f (e)中周期、谷底期和峰值期长度的量化。n = 7个Gz⁺/⁺ Okiluc-aCT SCN脑片,n = 5个Gz⁻/⁻ Okiluc-aCT SCN脑片。**P < 0.01。g 通过引入的bPAC光激活上调SCN cAMP信号前后小鼠的活动图。h (g)中行为活动的量化。在ZT13-14光激活SCN cAMP期间(Stim)的活动与之前两天相应ZT期间(Pre)的活动进行比较。误差条表示标准误。统计方法:(b)采用Wilks' lambda检验的多变量ANOVA,(d)采用Bonferroni事后检验的单因素ANOVA,(f)采用非配对双尾t检验,(h)采用Bonferroni事后检验的重复测量双因素ANOVA。n.s.,不显著。补充图1 |摘除眼球小鼠中环境光依赖的FRET比值增加被消除。a 摘除眼球小鼠和假手术小鼠在LD条件下的代表性SCN PKA FRET活性谱。同时显示视频监测的运动活动谱。注意摘除眼球后,暗-光转换时SCN FRET比值的急性升高消失。b 摘除眼球小鼠和假手术小鼠在DD条件下随后在CT14短暂曝光后的代表性SCN PKA FRET活性谱。c FRET比值光诱导相对于昼夜振荡幅度的量化。d FRET比值节律相位延迟的量化。摘除术组n = 3只小鼠;对照组n = 6只。*P < 0.001,P < 0.01。统计方法:非配对Student t检验。补充图2 | C57BL/6J回交Gz⁺/⁺和Gz⁻/⁻小鼠的代表性运动活动记录,与图2a相关。小鼠先置于LD,然后转入DD。黑暗期用灰色背景表示。数据以双标绘图格式显示。每条横线代表48小时;第二个24小时期绘制在第一个的右侧和下方。补充图3 |图4中AAV-Gz挽救实验的代表性运动活动记录。小鼠先置于LD,然后转入DD以监测AAV-Gz挽救前的基础行为活动谱。在重新夹带至LD周期后,向Gz⁻/⁻小鼠SCN注射AAV-Gz-2A-mCherry或其对照AAV-mCherry。红线表示病毒注射操作时间。手术后,将小鼠放回测试笼,并在LD中维持额外17-19天以恢复和允许病毒表达。然后将小鼠释放至DD以监测其自发运动活动谱。注意病毒引入Gz(而非mCherry)可恢复Gz⁻/⁻小鼠的正常休息长度(ρ)。补充图4 |描述Gz在昼夜节律时钟系统中作用的模型。Gz既不是节律产生也不是昼夜周期确定所必需的。相反,Gz在输出塑造中具有特定贡献。具体而言,Gz有助于塑造SCN中昼夜cAMP-PKA活性节律的峰值期,从而定义生物体昼夜休息时间(ρ)的时机和时长。调节ρ的输出节律的形态可由Gz可逆地修改。