【多毛纲专题】序_多毛纲研究简史
海 韦舒健约 12 分钟
提到多毛类动物,不知道大伙对于多毛类动物的印象是什么呢?
是这样的?
 这样的?
 还是这样的?
 其实上边的图片,没有一种是和多毛动物沾边的,那么真正的多毛类动物长什么样呢?
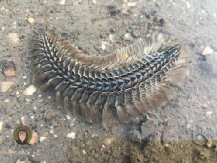 梯斑海毛虫(
Chloeia parva
)
他们长这样! 那么多毛类动物是什么? 多毛类动物以具 刚毛 而得名。刚毛的结构是其执行不同功能的基础。刚毛的种类、数量是多毛类动物赖以鉴定、分类和研究系统发育的重要性状。刚毛的英文拼写,在第1届国际多毛动物会议确定摈弃saeta(saetae)而使用chaeta(chaetae)。 多毛类动物,被统称为多毛纲,多毛纲是环节动物门种最大的纲,主要栖息于海洋环境,是潮间带以及潮下带最常见的大型底栖动物类群之一,同时多毛纲也是海洋大型底栖动物重要类群之一, 占大型底栖动物总种数的50–70% (类彦立和孙瑞平, 2008)。其食性广泛,也是众多更高营养级生物的饵料, 在生态系统能量流动和物质循环中具有重要作用, 有些种类还直接被人类开发利用。多毛纲种类繁多, 包括底上,底埋和浮游类群, 其分类体系一直处于变化中。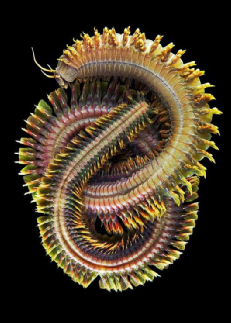
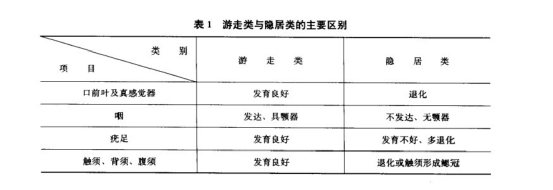 游走亚纲与隐居(定)亚纲的主要区别(图源中国动物志无脊椎动物第九卷多毛纲叶须虫目)
大多数学者倾向于将多毛纲分为更多个目的分类系统∶Dales(1962)将多毛类51个科隶属14个目;Clark(1969)将67个科归属12个目;Fauchald(1977)将81个科的多毛类隶属为17个目,7个亚目;Pettibone (1982)将80个科归为24个目6个超科;George(1983)则将81个科归为22个目18个超科,由此可见学者们的观点相差很大,但可以预见,随着不同科间系统演化关系的研究深入,多毛纲的整个分类系统会有较大的变动。1997年,Fauchald和Rouse 在全面研究多毛动物各科形态学的基础上,用支序(分支)分类学的理论和方法,把多毛纲(Polychaeta) 分为触角虫亚纲(Palpata)和头结虫亚纲(Scolecida),从而推动了多毛动物的形态—支序分类。触角虫亚纲(Palpata)头部具附肢或具滤食结构,其下的沟触角虫总目(Canalipalpata)具纵行纤毛沟的触角或具头部附肢、具不同形态的体节、疣足无足刺和复型刚毛、咽通常不外翻、无颚齿、口前叶和围口节部分愈合、穴居或管栖,下含缨鳃虫目(Sabellida)、海稚虫目(Spionida)、蛰龙介目(Terebellida) 三个进化支。Rouse和Fauchald(1997)把欧文虫科(Oweniidae)和西伯加虫科(Siboglinidae)(须腕动物门 Pogonophora)补入缨鳃虫目(Sabellida)。Fauchald和Rouse(1997)的分类系统,Rouse和Pleijel(2001)的专著,Schulze(2003)、Bartolomaeus等(2005)等的论文,包括 Vestimentifera(Siboglinidae)在内,都是 Read 和 Fauchald 从2007-2012年来,不断修订的《世界多毛纲数据库(World Polychaeta Database)》的分类依据。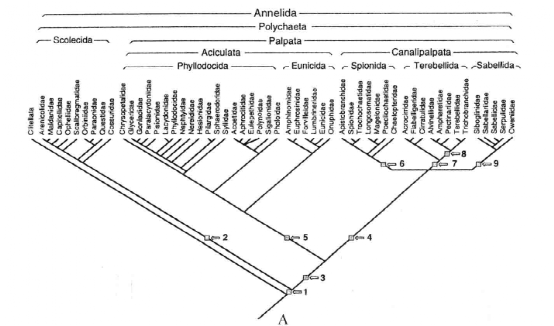 从上面的分析可看出 Fauchald,Petti-bone 和 George 的观点较接近,他们对下述16个目的意见是一致的;仙女虫目(Amphino-mida),刺蚕目(Spintherida),叶须虫目(Phyllodocida),矶沙蚕目(Eunicida),海稚虫目(Spionida),锥头虫目(Orbiniida),单指虫目(Cossurida),栉端虫目(Ctenodrilida),小头虫目(Capitellida),不倒翁虫目(Sternaspida),欧文虫目(Oweniida),海蛹目(Ophelida),蛰龙介目(Terebellida),扇毛虫目(Flabelligerida),沙端虫目(Psammodrilida),缨鳃虫目(Sabellida).
综上所述,在多毛纲分类系统中,学者们的观点很不一致,因此,多毛纲分类同时也被戏称为“分类垃圾桶”。由此可见,多毛纲分类迄今还没有一个能为大多数学者接受的分类系统。尽管如此,Fauchald(1977)、Pettibone(1982)和 George(1983)所提出的分类系统对近代多毛纲的分类学仍有重大的贡献。
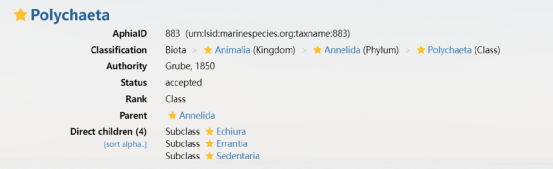 分子生物学技术也应用于多毛纲内部目与科 的系统演化研究中。Rouse和Fauchald (1997)依据仙 虫科腹侧有增厚的口道这一共同形态特征, 将仙虫 科归到矶沙蚕目。但Weigert等(2014)和Andrade等 (2015)通过转录组学、Illumina二代测序技术和系统 发育分析, 认为仙虫科不属于矶沙蚕目, 是游走类 和隐居类的姊妹类群。磷虫科在形态学上被认为和 海稚虫科同属一系(Moore et al, 2017)。Rouse和Fauchald (1997)基于磷虫科有1对有沟触角和躯干 部可分3个体区, 认为磷虫科应归入海稚虫目。而大 量分子生物学数据表明, 磷虫科和长手沙蚕科与欧 文虫科的亲缘关系更近, 应为环节动物的基本分支 (Struck, 2011; Weigert et al, 2014; Andrade et al, 2015)。基于形态学, 长手沙蚕科属于海稚虫目, 欧 文虫科和缨鳃虫科、西伯加虫科亲缘关系较近, 同 属于沟触角动物(Rouse & Fauchald, 1997)。近几年 的分子系统发育研究表明, 长手沙蚕科和欧文虫科 一起构成环节动物系统发育树的基部分支(Weigert et al, 2014; Andrade et al, 2015)。这种亲缘关系也得 到了形态学的支持, 这些种类具有单纤毛的表皮细 胞, 无颈部器官(Capa et al, 2012)。
总之, 分子生物学研究推动了多毛纲分类系统 的修订, 未来结合形态学、生活史特征将会加深对 多毛类纲系统发育的认识。
参考资料: 中国动物志_无脊椎动物_第九卷_环节动物门_多毛纲(一)_叶须虫目 中国动物志_无脊椎动物_第三十三卷_环节动物门_多毛纲_(二)_沙蚕目 中国动物志 无脊椎动物_第五十四卷_环节动物门_多毛纲(三)_缨鳃虫目 The Fauna of Indian_Fauvel 1953 Polychaete chaetae: Function, fossils, and phylogeny _ Rachel A. Merz1, and Sarah A. Woodiny 2006 Taxonomy at order and family levels of the benthic groups of Polychaeta in the coastal waters of China _ Meiling Ge , Qinzeng Xu, Shiliang Fan1 , Zongxing Wang , Xuelei Zhang 2018
他们长这样! 那么多毛类动物是什么? 多毛类动物以具 刚毛 而得名。刚毛的结构是其执行不同功能的基础。刚毛的种类、数量是多毛类动物赖以鉴定、分类和研究系统发育的重要性状。刚毛的英文拼写,在第1届国际多毛动物会议确定摈弃saeta(saetae)而使用chaeta(chaetae)。 多毛类动物,被统称为多毛纲,多毛纲是环节动物门种最大的纲,主要栖息于海洋环境,是潮间带以及潮下带最常见的大型底栖动物类群之一,同时多毛纲也是海洋大型底栖动物重要类群之一, 占大型底栖动物总种数的50–70% (类彦立和孙瑞平, 2008)。其食性广泛,也是众多更高营养级生物的饵料, 在生态系统能量流动和物质循环中具有重要作用, 有些种类还直接被人类开发利用。多毛纲种类繁多, 包括底上,底埋和浮游类群, 其分类体系一直处于变化中。
多毛纲研究简史
多毛纲动物很早就引起早期博物学家们的关注。我国是世界上最早记录多毛纲动物的国家之一,同时,我国早期的文人们也是世界上最早进行博物学活动的博物学家们。古代中国的多毛纲研究
荀子曰:“草木畴生,禽兽群焉,物各其类也。”可见,对动植物(包括实物)的归类,是人类认识世界永恒的主题。在我国典籍,尤其在类书中,把沙蚕归为虫、动物、鳞物、海错、杂海错、水族、虫豸或介部、异鱼等类。 “虫”,《大戴礼记·曾子天圆》称:“毛虫之精者曰麟,羽虫之精者曰凤,介虫之精者曰龟,鳞虫之精者曰龙,倮虫之精者曰圣人。”《说文解字》曰:“鱼,水虫也”、“贝、海介虫也”。《玉篇·鱼部》“虾,长须虫也”。《水浒》呼老虎为大虫,清·厲荃《事物异名录·水族部》“戏以蟹为夹舌虫”,民间把蛇称之为长虫、把老鼠称为老虫等等,均是把“虫”泛指动物。类书如明·彭大翼《山堂肆考》240卷五的羽集含羽虫、毛虫、鳞虫、甲虫、昆虫,这无疑仍沿袭了《大戴礼记·曾子天圆》的说法。成书于公元前五世纪~公元二世纪的《尔雅》,生物被分为草、木、虫、鱼、鸟、兽、畜,曾定义“有足谓之虫,无足谓至豸”。因此,即使今天对“足”的界定仍有争议,但具疣足之沙蚕被统称之为“虫”,可能是最早的称谓。 “动物”、“鳞物”之名,始于西周,《周礼·地官·司徒》篇记:“大司徒之职,辨其山林、川泽、丘陵、坟衍、原隰之物,辨五地之物生……二曰川泽,其动物宜鳞物,其植物宜膏物。”这里,动物名下之水生者又有“鳞物”之称。 “水族”,始于秦汉。汉代张衡《京西赋》有“殄水族”,晋代崔豹《古今注》:“鲸,海鱼也……鼓浪成雷,喷沫成雨,水族警畏之,皆逃匿莫敢当。”对水族辨识贡献最大的,应该首推沈莹和郭璞。三国吴·沈莹《临海水土异物志》记鱼、记软体动物的蚶、还记棘皮动物的阳遂足等。晋·郭璞《江赋》,把江豚等归为“鱼”,把玉珧、海月、土肉、石华和紫菜等归为“水物怪错”。清·陈元龙《格致镜原》卷九十~九十五为水族类。 “海错”,《书·禹贡》记:“厥贡盐,海物惟错。”孔传称“错,杂非一种。”后指诸种海味。明清以来,以“海错”命名的书不计其数。明·屠本畯《闽中海错疏》全书三卷,多记我国东海闽浙产的海洋生物,含鳞部二卷167种、介部一卷90种。清代有郝懿行《记海错),郭柏苍《海错百一录》,后者所记广于通常所指海错之范围,计渔、鱼、介、壳石、虫、盐,另附记海鸟、海兽、海草等海洋动植物。近代,“海错”这个词语已经不再使用了。古代西方多毛纲研究
而在西方,和我国古代一样,西方也是以fish(鱼)和worm(蠕虫)作为认识动物的基础,故-fish和-worm也常是英文动物名称的词尾,如 jelly-fish(海蜇)、nettle-fish(海蜇)、 quttle-fish(乌贼)、star-fish(海星),flat-worm(扁虫)、ribbon-worm(纽虫)、ring worm(环虫)、sand-worm和clam-worm(沙蚕)等等。 早在公元前,亚里斯多德把动物分为有血动物和无血动物。其中,有血动物包括胎生四足类、卵生四足类、鸟类和鱼类,无血动物包括软体、甲壳、昆虫、有壳四类。沙蚕等“无血动物”属于软体类。亚里斯多德的这一套分类系统,延用了2000多年。 作为多毛纲中的的明星物种沙蚕,沙蚕的英文名sand-worm、clam-worm,表示该动物栖居于沙中或有蛤之处。这种以生境为划分依据的人为分类法(artificial classification),在西方国家也延续了很长时间。 一直到18世纪,著名的植物学家林奈出版了著名的的《自然系统》(1758)第10版,首创物种命名的双名法,创建了纲、目、属、种等四个分类阶元,把动物分为哺乳、鸟、两栖、鱼、昆虫和蠕虫六大类。这才开启了多毛纲研究的新时代。近代多毛纲研究史
在1758年,林奈就在其《自然系统》第10版中,就建立了一个独立的属,鳞沙蚕(Aphrodita aculeata),迄今仍被认为是鳞沙蚕科(Aphroditidae)的模式属。林奈在《自然系统》第12版(1767)中记录了斑沙蚕(Nereis maculata)和绿沙蚕(Nereis viridis),它们就是叶须虫科(Phyllodocidae)的两个重要属——叶须虫属(Phyllodoce)和巧言虫属(Eulalia)的模式种。 多毛动物分类学在林奈系统((Linnaean system)的 250余年传承有序,同样历经经典、形态、形态一支序及形态一分子一支序的分类过程。 在多毛动物分类最早的阶段,依多毛动物的生活习性,曾把多毛纲分为2个亚纲∶游走亚纲(Errantia) 和隐(定)居亚纲(Sedentaria)。游走亚纲 的生活习性相对自由,常具大颚,多为食肉动物;而定居亚纲则多为穴居建管的滤食者。但实际上许多定(隐)居亚纲动物并不生活在栖管中,而是营自由生活(海蛹科所有的种都无栖管);而有的游走亚纲动物又有固定的栖管,虫体栖息于管中(欧努菲虫科和裂虫科中的许多种具特有的虫管)大多数学者倾向于将多毛纲分为更多个目的分类系统∶Dales(1962)将多毛类51个科隶属14个目;Clark(1969)将67个科归属12个目;Fauchald(1977)将81个科的多毛类隶属为17个目,7个亚目;Pettibone (1982)将80个科归为24个目6个超科;George(1983)则将81个科归为22个目18个超科,由此可见学者们的观点相差很大,但可以预见,随着不同科间系统演化关系的研究深入,多毛纲的整个分类系统会有较大的变动。1997年,Fauchald和Rouse 在全面研究多毛动物各科形态学的基础上,用支序(分支)分类学的理论和方法,把多毛纲(Polychaeta) 分为触角虫亚纲(Palpata)和头结虫亚纲(Scolecida),从而推动了多毛动物的形态—支序分类。触角虫亚纲(Palpata)头部具附肢或具滤食结构,其下的沟触角虫总目(Canalipalpata)具纵行纤毛沟的触角或具头部附肢、具不同形态的体节、疣足无足刺和复型刚毛、咽通常不外翻、无颚齿、口前叶和围口节部分愈合、穴居或管栖,下含缨鳃虫目(Sabellida)、海稚虫目(Spionida)、蛰龙介目(Terebellida) 三个进化支。Rouse和Fauchald(1997)把欧文虫科(Oweniidae)和西伯加虫科(Siboglinidae)(须腕动物门 Pogonophora)补入缨鳃虫目(Sabellida)。Fauchald和Rouse(1997)的分类系统,Rouse和Pleijel(2001)的专著,Schulze(2003)、Bartolomaeus等(2005)等的论文,包括 Vestimentifera(Siboglinidae)在内,都是 Read 和 Fauchald 从2007-2012年来,不断修订的《世界多毛纲数据库(World Polychaeta Database)》的分类依据。
现代多毛纲研究
随着分子生物学技术的发展与应用, 多毛纲的分类地位不断得到重新认识。螠虫动物(Echiura)、 须腕动物(Pogonophora)、吸口虫纲(Myzostomida)、 星虫动物(Sipuncula)等无脊椎动物类群因其形态与环节动物差别较大, 被认为是单独的门类, 列在环 节动物系统外。但应用DNA条形码技术的研究结果 支持将上述4类生物归属于环节动物。其中, 螠虫动 物被认为与小头虫科亲缘关系相近(Bleidorn et al, 2010), 但该结果尚需形态学的共同衍征支持(韩洁 和林旭吟, 2007)。星虫动物在分类系统中的位置不 断变化, 从环节动物衍生类群到环节动物内群, 再 到所有环节动物的姊妹类群(Struck, 2011), 现被认 为是仙虫科的姊妹类群(Weigert et al, 2014; Andrade et al, 2015)。须腕动物以拟西伯加虫科(Siboglinidae) 为代表, Rousset等(2004)根据形态学和18S、28S rDNA核基因数据, 认为该科为单系发生, 与欧文 虫科(Oweniidae)为姊妹类群关系。吸口虫的系统发 育位置仍难确定, 可能是游走类或者隐居类的一部 分(Weigert & Bleidorn, 2016)。Weigert等(2014)基于 33科多毛类和6科环带类计60个物种的622个基因 共170,497个氨基酸位点的转录组数据, 认为现有 星虫动物门和磷虫科、仙虫科、欧文虫科、长手沙 蚕科是环节动物系统发育的基本分支, 其中后二者 形成较独立的分支我国的多毛纲研究
我国对环节动物门多毛纲的研究起步较晚。法、英、美和我国的学者在 30 年代开始有零星的多毛类分类论文发表。最早有关中国海鳞沙蚕亚目和叶须虫亚目的研究著作是法国Fauvel 于1933年写的北直隶湾(即渤海湾)环节动物多毛类,记载了多毛类52种(主要产地烟台一带),其中叶须虫亚目5种,鳞沙蚕亚目7种。同年,作为我国多毛纲研究的第一人高哲生发表了青岛海滨的多毛类环节动物,其中记载叶须虫科1 种,鳞沙蚕科1 种。英国 Monro (1934)、美国 Treadwell(1936)报告产于中国厦门、烟台等地的多毛类环虫,其中叶须 虫科和鳞沙蚕科共10种。1947 年梁惠文、金德祥、朱光玉记述了厦门的叶须虫科 2种,鳞沙蚕科4 种,1959 年高哲生等发表的华北地区的多毛类记述了叶须虫亚目和鳞沙蚕亚目共15种。 50 年代后期吴宝铃与前苏联多毛类专家乌沙科夫等合作发表了多毛类分类区系和动物地理学方面一系列的论文,其中《黄海的多毛类环虫,叶须虫科和鳞沙蚕科》记述了叶须虫科12种,鳞沙蚕亚目18种,7种为新种和新亚种,10种为首次记录。吴宝铃等在60年代初开展了多毛类形态、分类、生殖、生态和系统演化等方面的工作。在此期间,发表的《小头虫的亚种分化及其生态特点》,为其代表作,从而推动了我国多毛类研究工作的发展。以后的10年,我国的多毛类研究工作完全处于停滞状态。1975年吴宝铃等发表了文革后第一篇论文"西沙群岛多毛类的初步研究"。70年代中期以后,我国开展了渤海、黄海、东海、闽江口和杭州湾等地的污染调查以及东海大陆架、西沙群岛、中沙群岛、南沙群岛、台湾海峡、香港、长江口、黄河口、大亚湾、全国海岸带与海岛的生态综合调查。在以上调查中为多毛类研究提供了大量标本和各种环境资料,促进了多毛类分类区系和生态学等方面的研究。国家海洋局第一海洋研究所、杭州第二海洋研究所、厦门第三海洋研究所、福建省水产研究所、厦门大学海洋系、厦门水产学院、浙江水产学院、暨南大学、上海自然博物馆、中国科学院海洋研究所、中国科学院南海海洋研究所等单位都有人进行多毛类分类和生态研究。 如今 国内对多毛纲分类学的研究主要集中在种类 形态鉴定和地理区系分布特征等基础研究方面。目 前报道的中国海多毛类有60科, 约1,000余种, 其中 已做系统分类学研究的有23科428种, 大部分种仅 有零散的记录, 有的甚至来自于生态学方面的报告 (吴旭文, 2013)。杨德渐和孙瑞平(1988)曾对中国近 海多毛纲种类做过总结, 研究较好的叶须虫目、沙 蚕目和缨鳃虫目已分别在三卷《中国动物志》中发 表(吴宝铃等, 1997; 孙瑞平和杨德渐, 2004, 2014)。生态学研究中所记录的种类存在一定数量的 同物异名和异物同名, 甚至某些海域中所记录的优 势种均属错误鉴定结果。例如不倒翁虫科, 国内普 遍认为该科只有不倒翁虫( Sternaspis sculata ), 然而 在国外多毛纲的分类体系中该科包含多个种, 广泛 分布于许多海域的不同深度(从浅水到4,400 m深)。Kelly和Salazar-Vallejo (2013)对不倒翁虫科进行了 修订, 认为不倒翁虫科有3个属, 新增加了2个属: Caulleryaspis 和 Petersenaspis 。近期国内学者对中国 海的不倒翁虫科进行了调查和分类鉴定, Wu和Xu (2015)基于历史资料和新鲜标本发现了不倒翁虫科 的2个新种, Wu和Xu (2017b)在南海北部鉴定出不 倒翁虫科10个种, 其中有4个新种。 随着分子生物学技术的发展, 国内学者也开始 将其应用于我国海域多毛纲的分类学研究, 得到了 一些有价值的结果。其中, 对异毛虫科(周进, 2008)、 海稚虫科(周进, 2008)、索沙蚕科、矶沙蚕科(吴旭 文, 2013)、欧努菲虫科(吴旭文, 2013)、双栉虫科(隋吉星, 2013)、蛰龙介科(隋吉星, 2013)的研究较为系 统, 纠正了过去一些错误的鉴定和记录。未来在多 毛纲分类学的研究中, 分子生物学技术将是传统分 类方法的一个重要辅助手段(周进和李新正, 2011)。参考资料: 中国动物志_无脊椎动物_第九卷_环节动物门_多毛纲(一)_叶须虫目 中国动物志_无脊椎动物_第三十三卷_环节动物门_多毛纲_(二)_沙蚕目 中国动物志 无脊椎动物_第五十四卷_环节动物门_多毛纲(三)_缨鳃虫目 The Fauna of Indian_Fauvel 1953 Polychaete chaetae: Function, fossils, and phylogeny _ Rachel A. Merz1, and Sarah A. Woodiny 2006 Taxonomy at order and family levels of the benthic groups of Polychaeta in the coastal waters of China _ Meiling Ge , Qinzeng Xu, Shiliang Fan1 , Zongxing Wang , Xuelei Zhang 2018