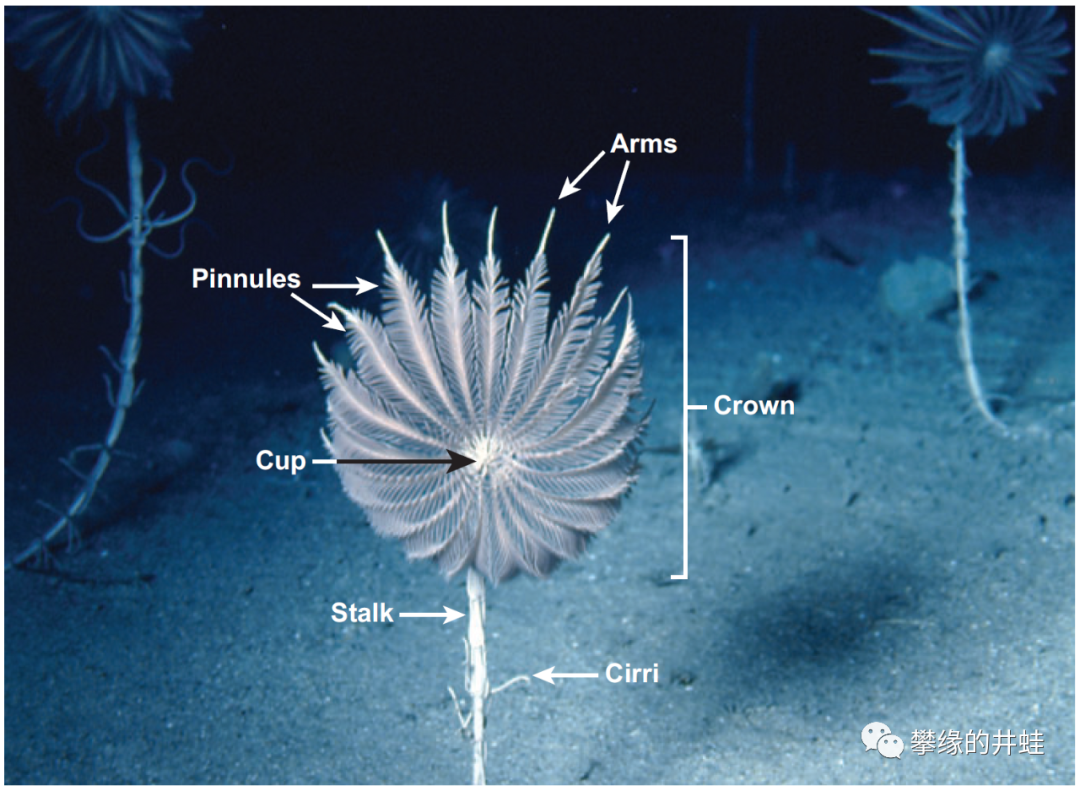
大巴哈马岛(Grand Bahama Island)海域约420米深处,正在过滤食物的美丽新海百合
Neocrinus decorus
。这是海百合最经典的形态:萼(或称体盘,Cup)和羽腕(Arms和上面的小枝Pinnules)组成冠(Crown),由柄(Stalk,或称茎Stem)直立在海底,柄上生长着细小的蔓枝(Cirri)。图片来源自[1]。
它们是攀附在浅海礁盘的瑰魅奇葩:
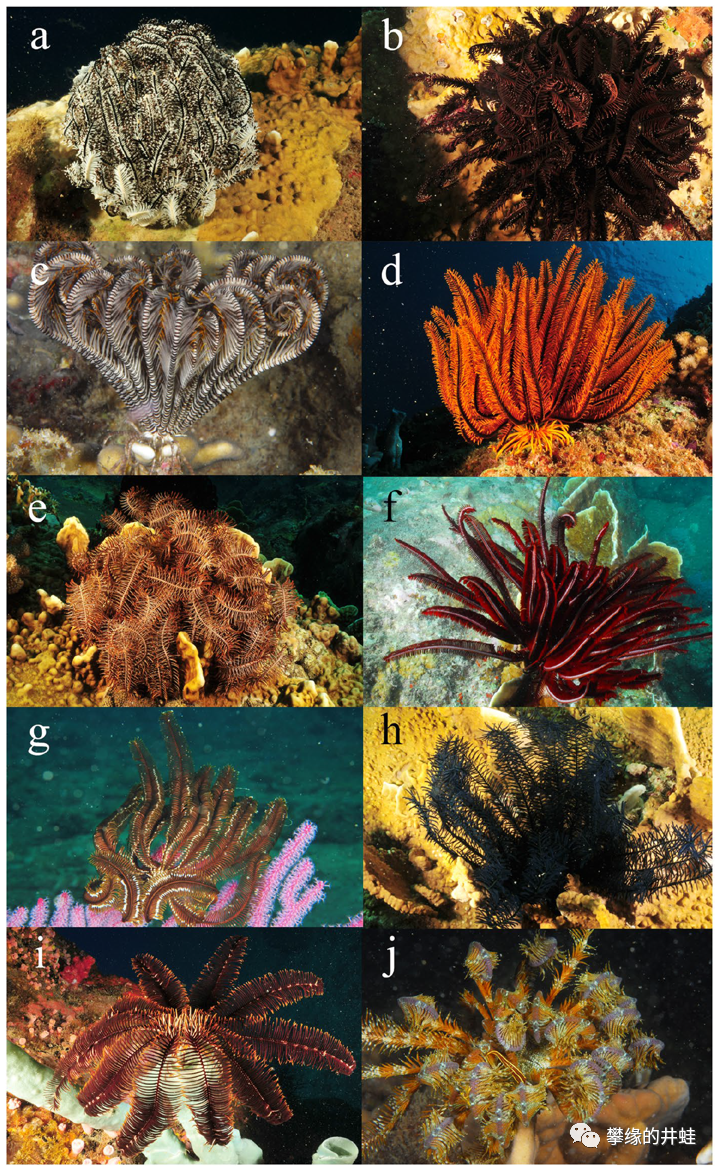
一些栖息在珊瑚礁上的海羊齿,这类海百合的成体没有柄。a:
Comaster nobilis
;b:
Clarkcomanthus alternans
;c:
Stephanometra indica
;d:
Anneissia pinguis
;e:
Comanthus gisleni
;f:
Himerometra robustipinna
;g:
Cenometra bella
;h:
Comanthus parvicirrus
;i:
Colobometra perspinosa
;j:
Lamprometra palmata
。图片来源自[2]。
它们是穿透时空,从亘古映射到现代的一缕生命之光。
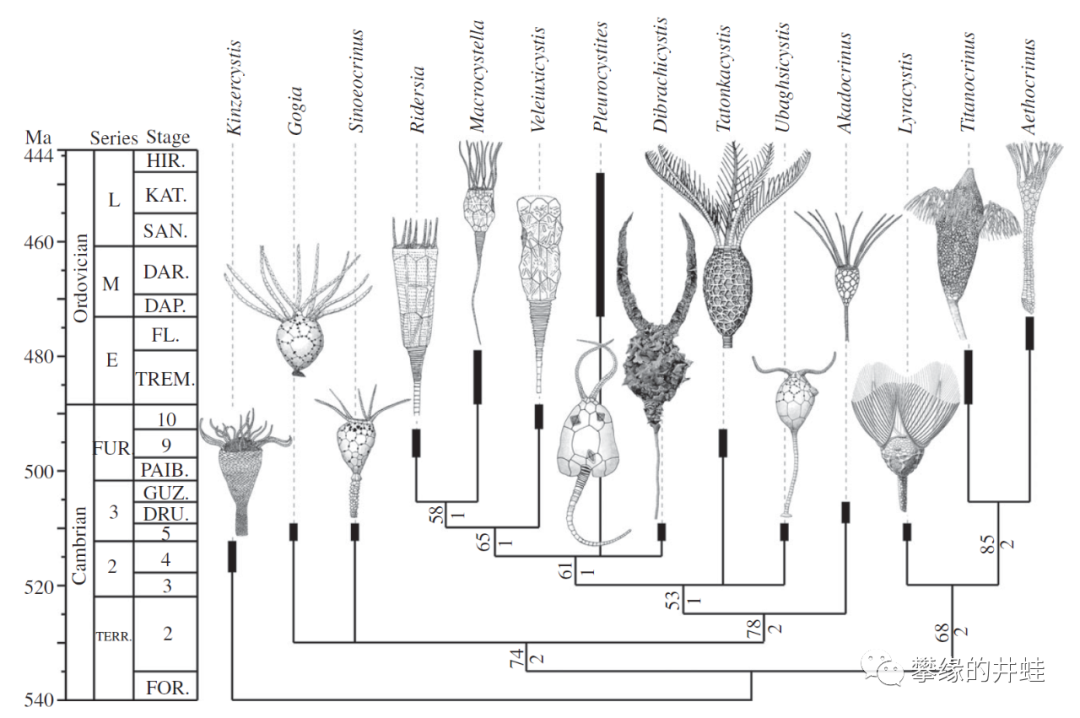
一些寒武纪到奥陶纪的具柄(stalked)棘皮动物。海百合纲继承了它们的样貌和生态位,一直延续到今天。图片来源自[3]。
它们即使在以怪异著称的棘皮动物门中,也是最为特立独行的类群。
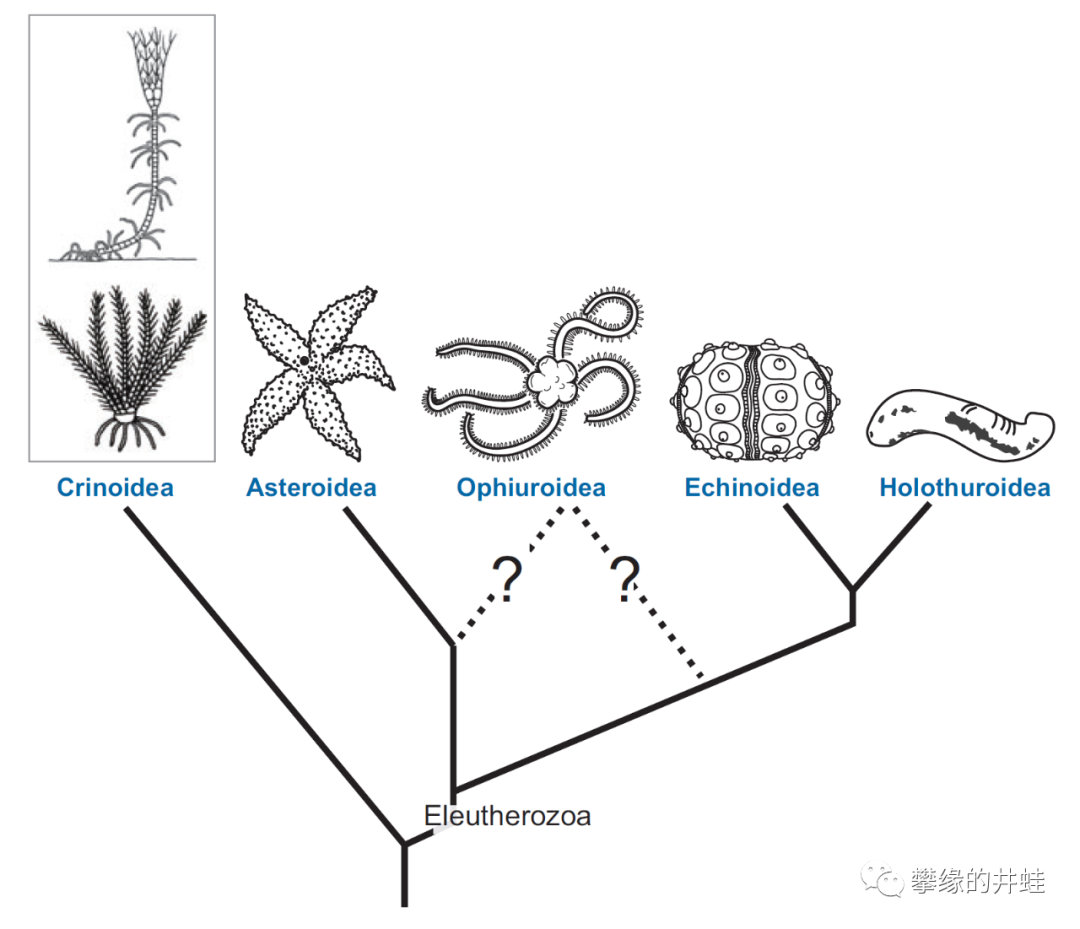
现存棘皮动物门五纲的演化关系。上回介绍过,海胆纲、海参纲、海蛇尾纲和海星纲组成了游移亚门(Eleutherozoa),而海百合纲(Crinoidea)是整个游移亚门的姊妹群。图片来源自[1]。
理论上讲,海百合纲的祖先一定在寒武纪就已经出现。但目前发现的最早的海百合化石生活在奥陶纪。那些寒武纪的形似海百合的化石,基本属于另一个类群:海蕾亚门(Blastozoa)。
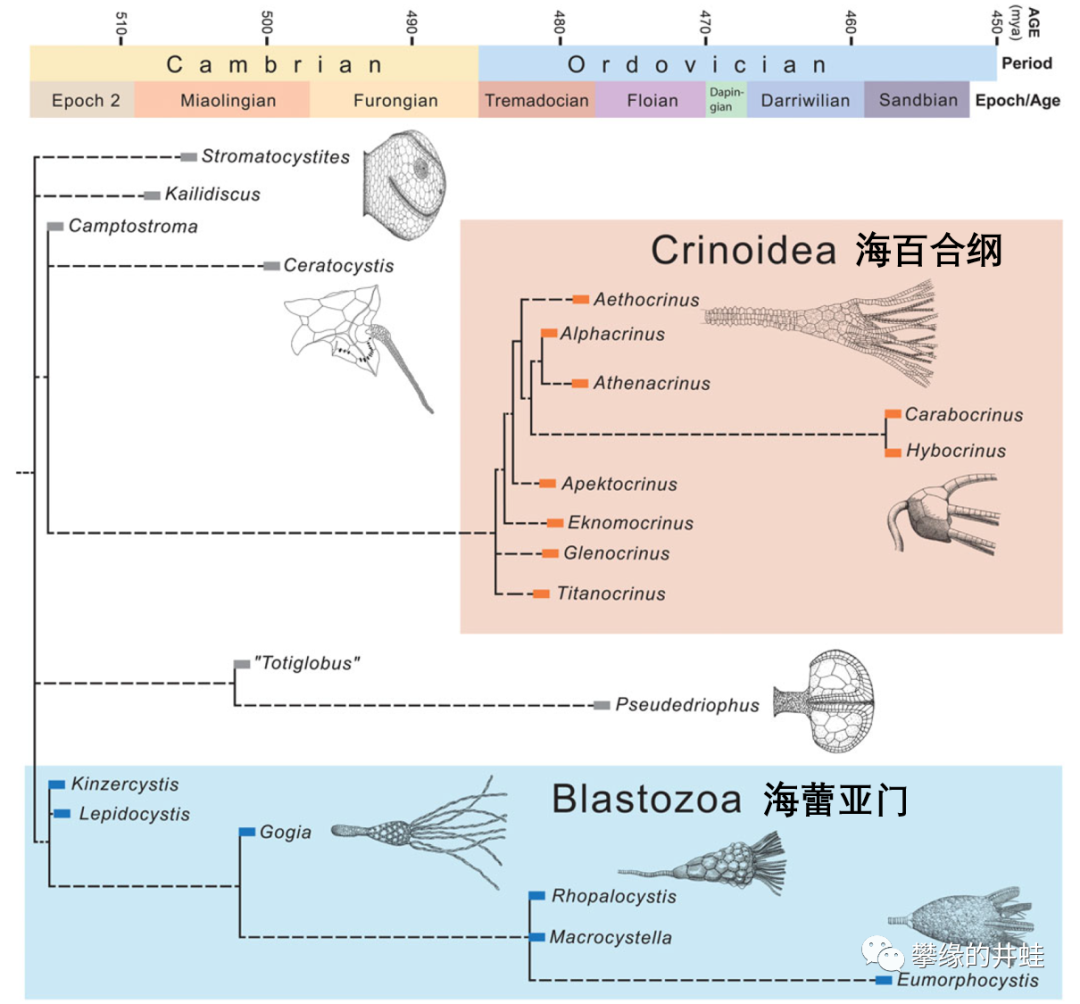
海百合亚门(Crinozoa,其下只有海百合纲一个纲)和海蕾亚门(包括始海百合纲Eocrinoidea、海蕾纲Blastoidea、拟海蕾纲Parablastoidea、拟海百合纲Paracrinoidea、孔菱纲 Rhombifera、双孔纲Diploporita)都具有“柄”的结构,并利用环绕“萼部”的“腕”过滤食物。研究者曾经把它们合称为有柄类(Pelmatozoan)。不过现在更多人认为这两个亚门其实亲缘关系并不近,它们的相似之处只是趋同进化。“有柄类”也不再作为一个分类单元使用。图片来源自[4]。
海百合和海蕾是古生代海洋中争奇斗艳的并蒂双姝,留下了极其丰富的资料(关于古生代的海百合和海蕾,可以参看【第七十四回 异界来客4:异界妖花】;【第一百三十一回 螺宫】;【第二百十八回 寒武纪的余烬:棘皮动物篇(下)】)。然而二叠纪末大灭绝摧毁了海洋生态系统,海蕾最终灰飞烟灭;海百合纲也被逼到了灭绝的边缘。
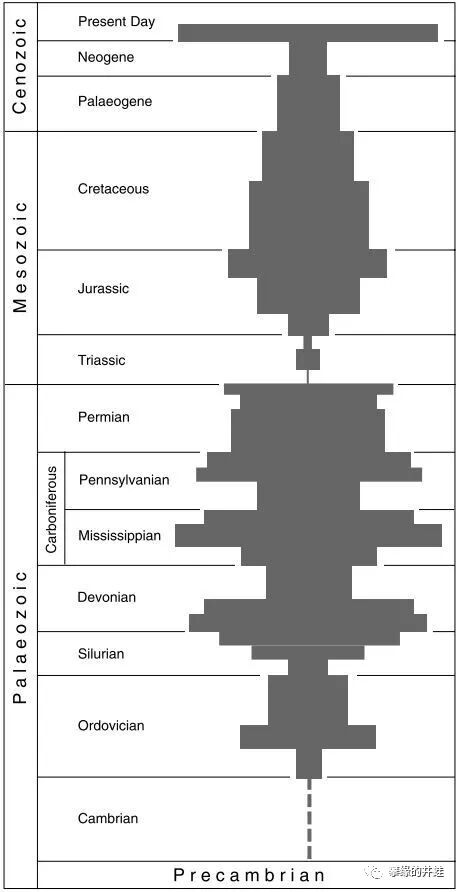
海百合纲多样性在地质史上的变化情况。古生代-中生代交界的环境剧变是海百合纲经历过的最大危机。三叠纪初那根窄窄的生命线看得让人揪心,似乎随时可能绷断。更糟糕的是,多样性好不容易稍微恢复之后,下一场大灭绝又袭来了。图片来源自网络。
二叠纪末的大洗牌对海百合纲的影响极其深远。以大灭绝为分界,海百合的演化史被清晰地分隔成“古生代(Paleozoic)”和“后古生代(Post-Paleozoic)”两个阶段。
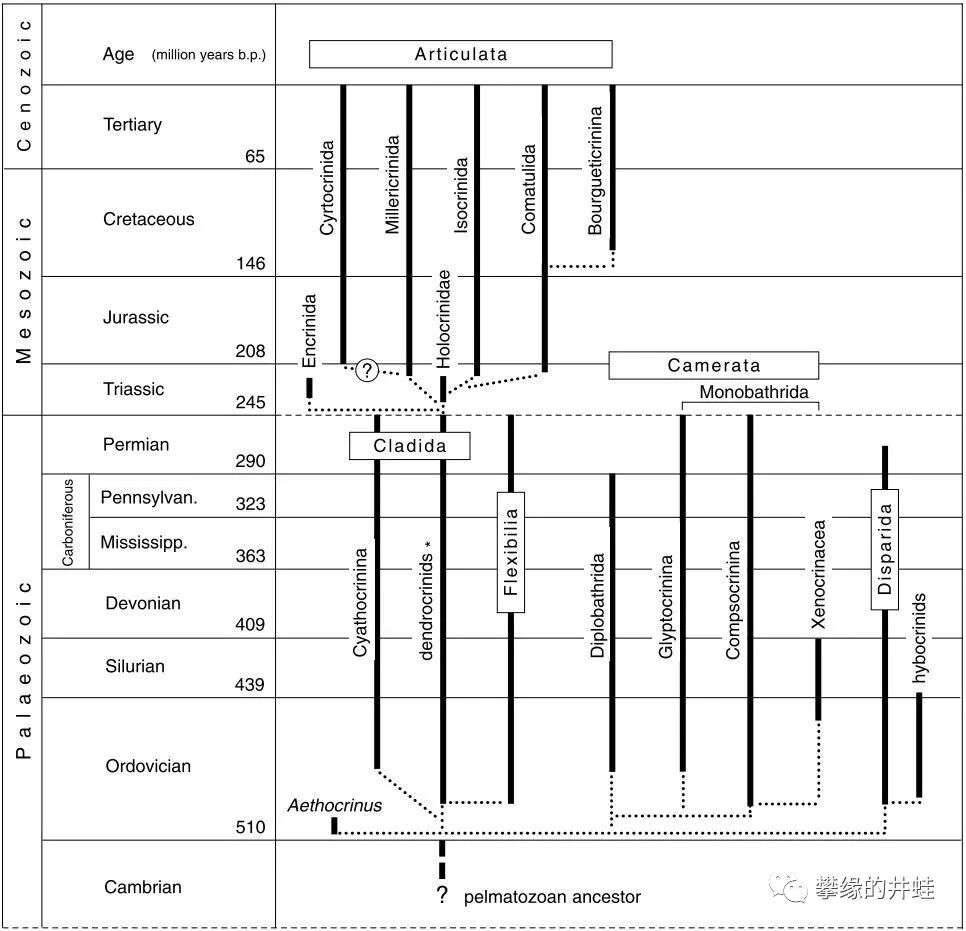
海百合纲主要类群生存年代。古生代海百合最具代表性的四大亚纲:幼枝海百合亚纲(Cladida),可曲海百合亚纲(Flexibilia),圆顶海百合亚纲(Camerata),不等海百合亚纲(Disparida)在二叠纪末被一齐“断头”。图片来源自网络。
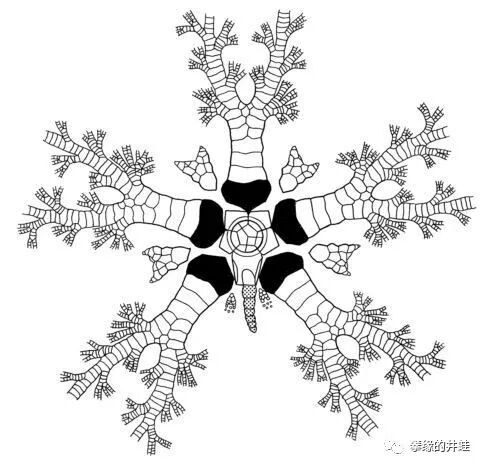
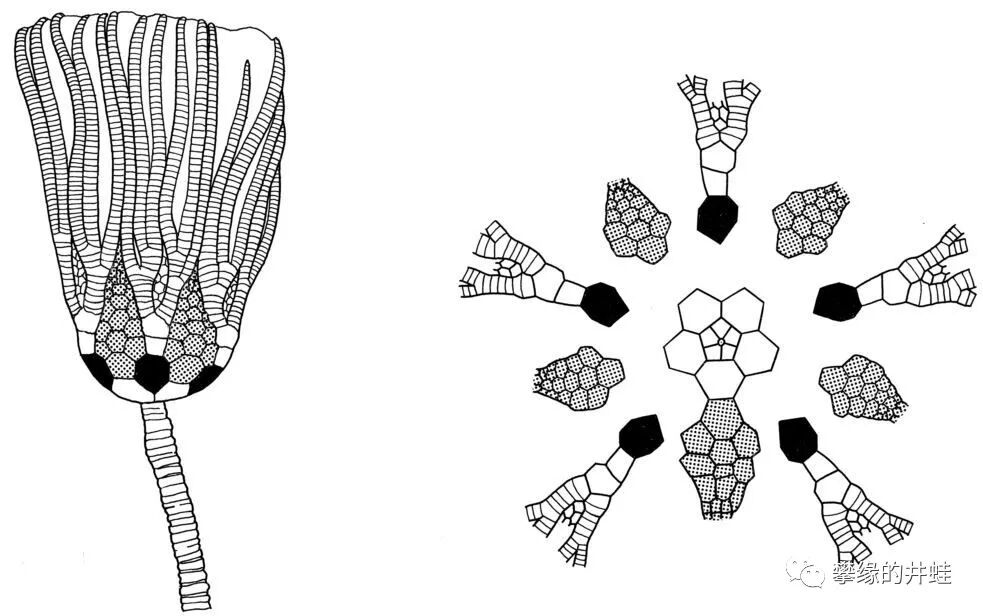
大概朋友们对海百合都有些“脸盲”,觉得它们全都长一个样。没关系,我也是。下面是井蛙从网上找到的古生代海百合四大亚纲的典型特征(骨板排布和连接方式,萼和腕的形态,等等),大概了解一下就行了:
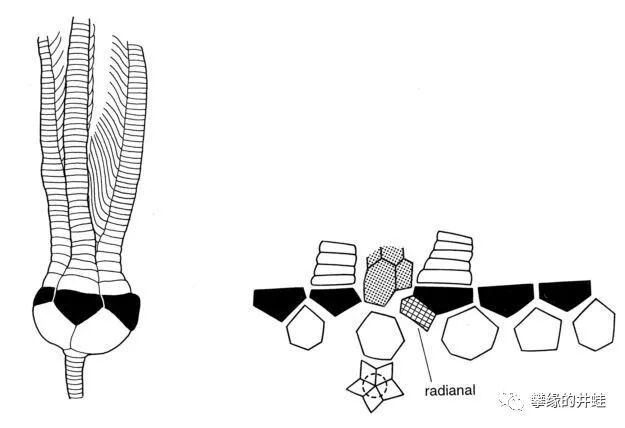
幼枝海百合亚纲
可曲海百合亚纲
圆顶海百合亚纲
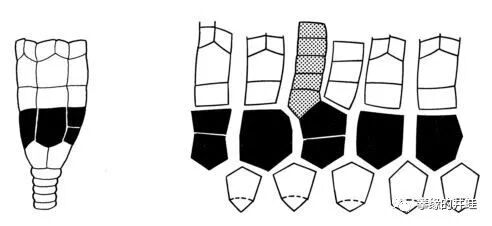
不等海百合亚纲。图片均来自[5]。
干巴巴的知识远没有千奇百怪的海百合化石和复原有趣。井蛙这里再放几种非常有特点的古生代海百合,感受一下这个类群多变的画风。
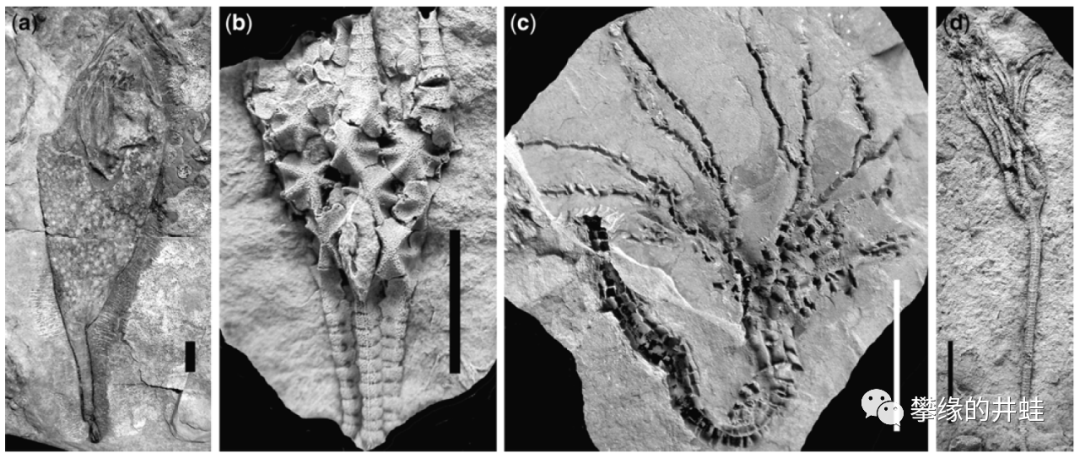
一些奥陶纪海百合的化石。(a)
Titanocrinussumralli
,犹他州;(b)
Aethocrinusmoorei
,法国黑山(Montagne Noire);(c)
Ramseyocrinus vizcainoi
,法国黑山;(d)
Disparid indet
,摩洛哥小阿特拉斯山脉(Anti-Atlas)。图片来源自[6],标尺长度1厘米。
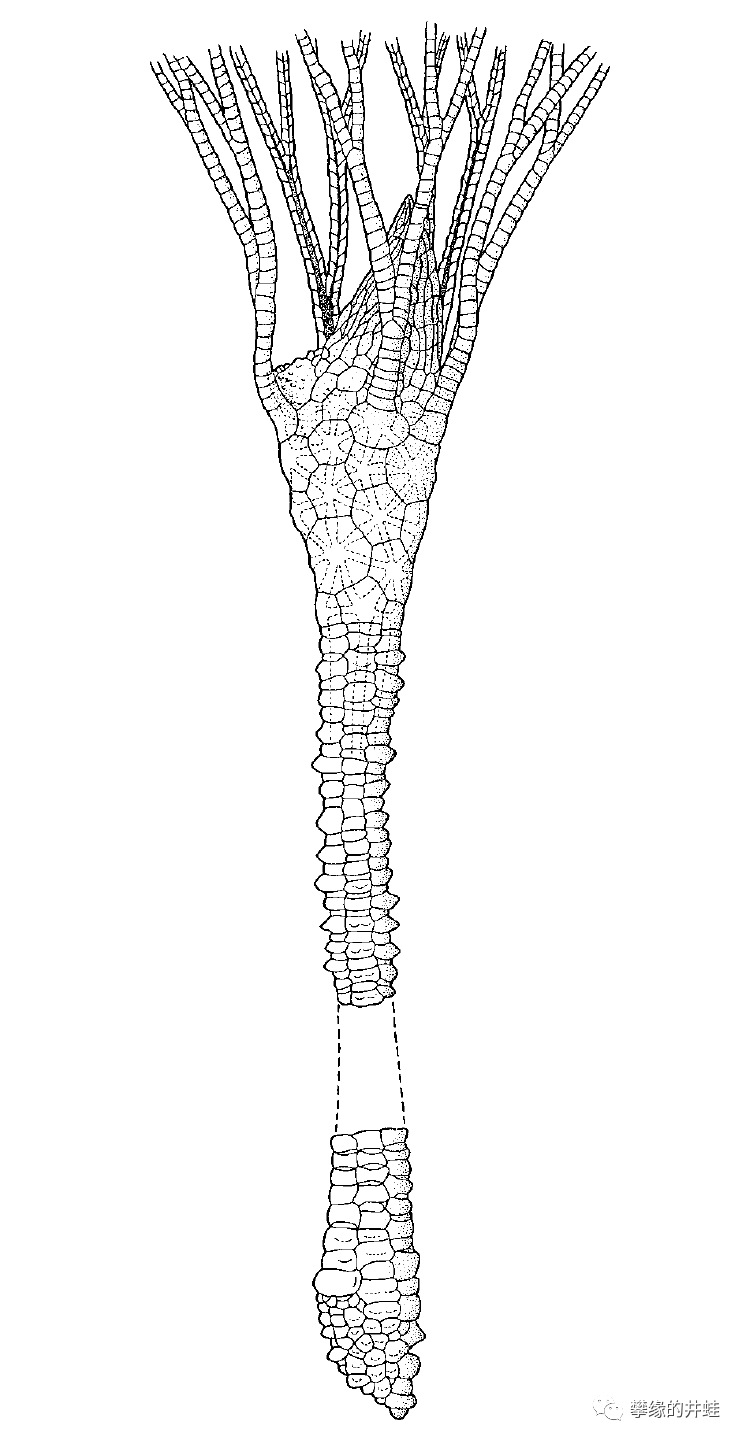
Aethocrinus moorei
复原图。奥陶纪的海百合形态都比较原始,无论柄、腕还是体盘(萼),没有出现特别复杂的结构。图片来源自[7]。
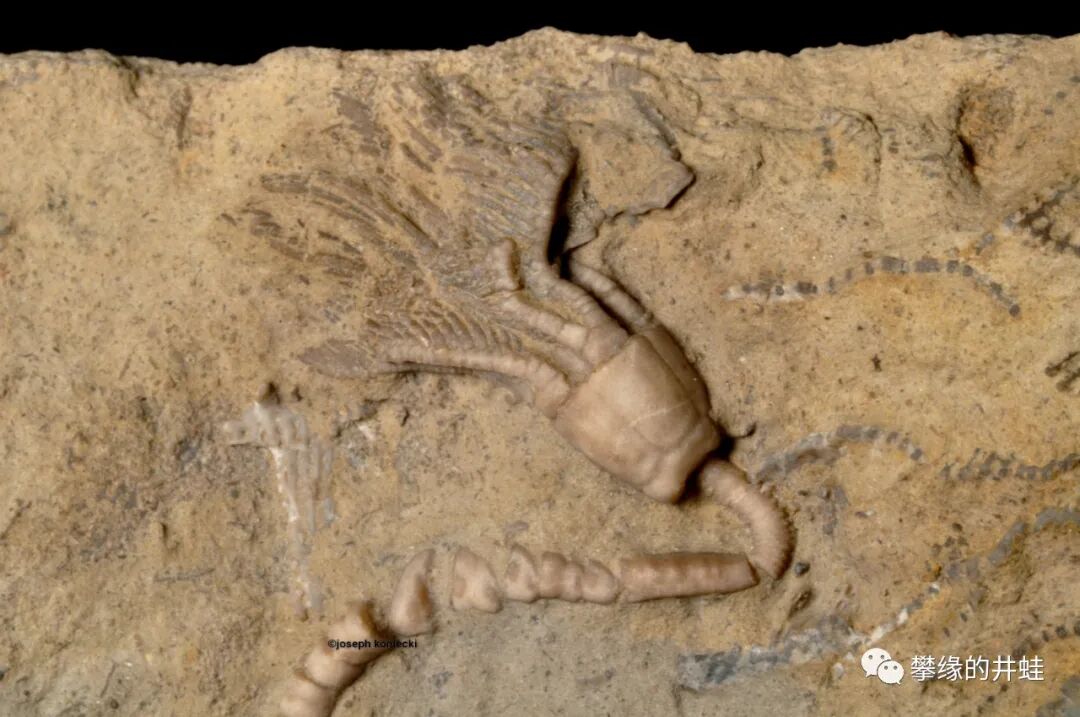
伊利诺伊州发现的石炭纪早期海百合
Camptocrinus multicirrus
化石。图片来源见水印。
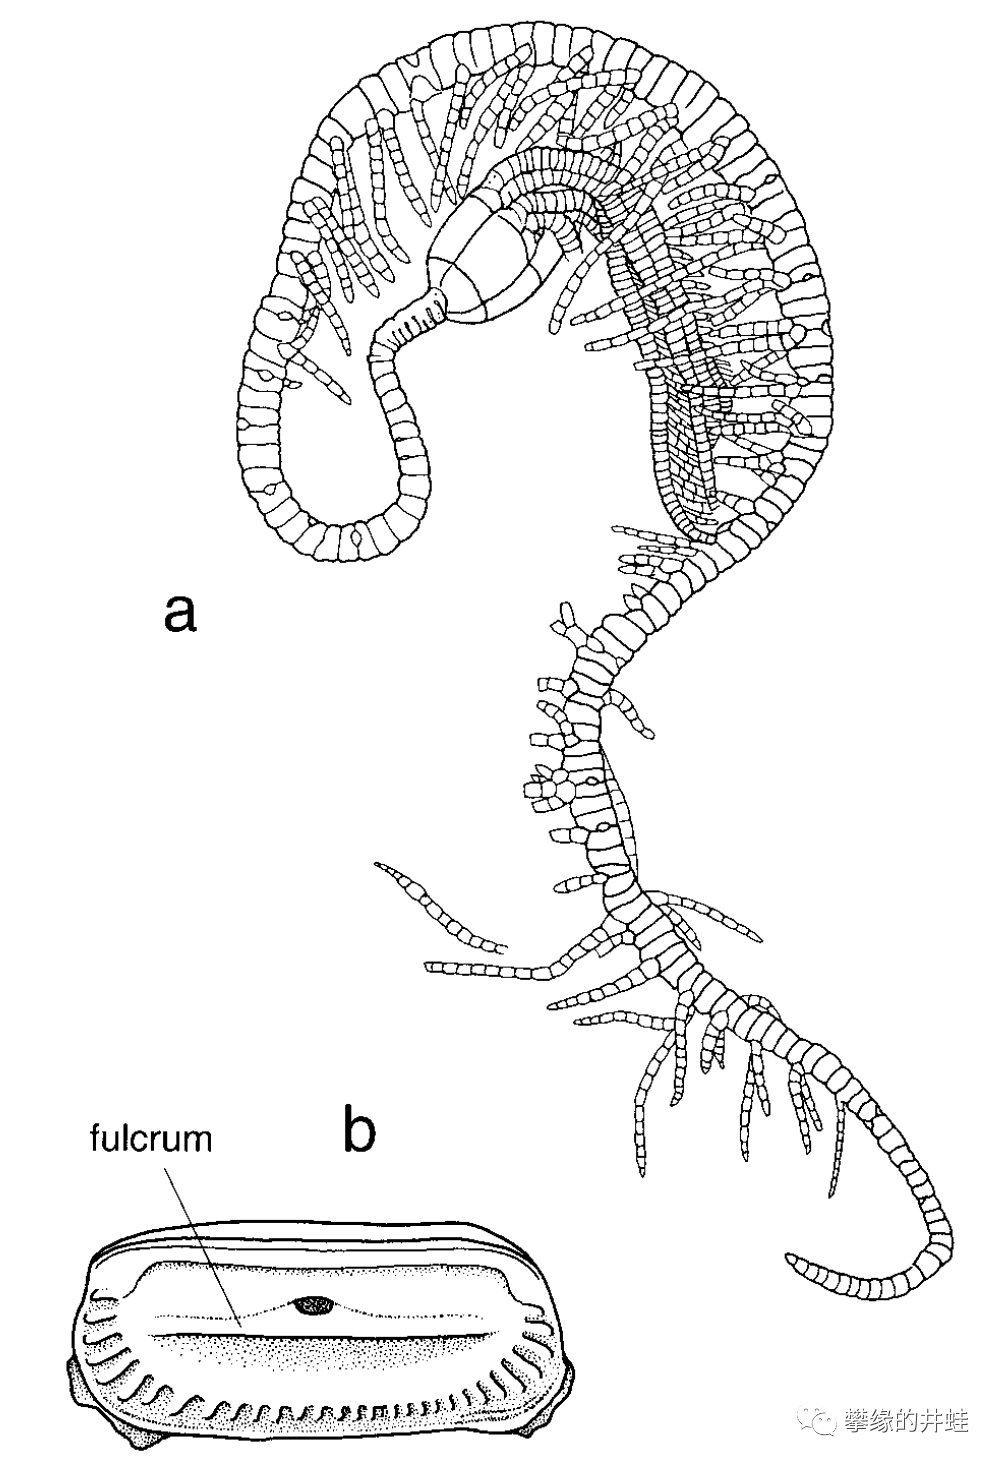
Camptocrinus multicirrus完整形态复原图。它的“柄(或茎)”末端没有附着器,在柄上生长有许多可以自由运动的蔓枝(Cirri),它可以像蜈蚣一样在海底蜿蜒爬行,找到基质和水流适宜的地方,“昂首挺胸”,张开羽腕,过滤食物。图片来源自[7]。
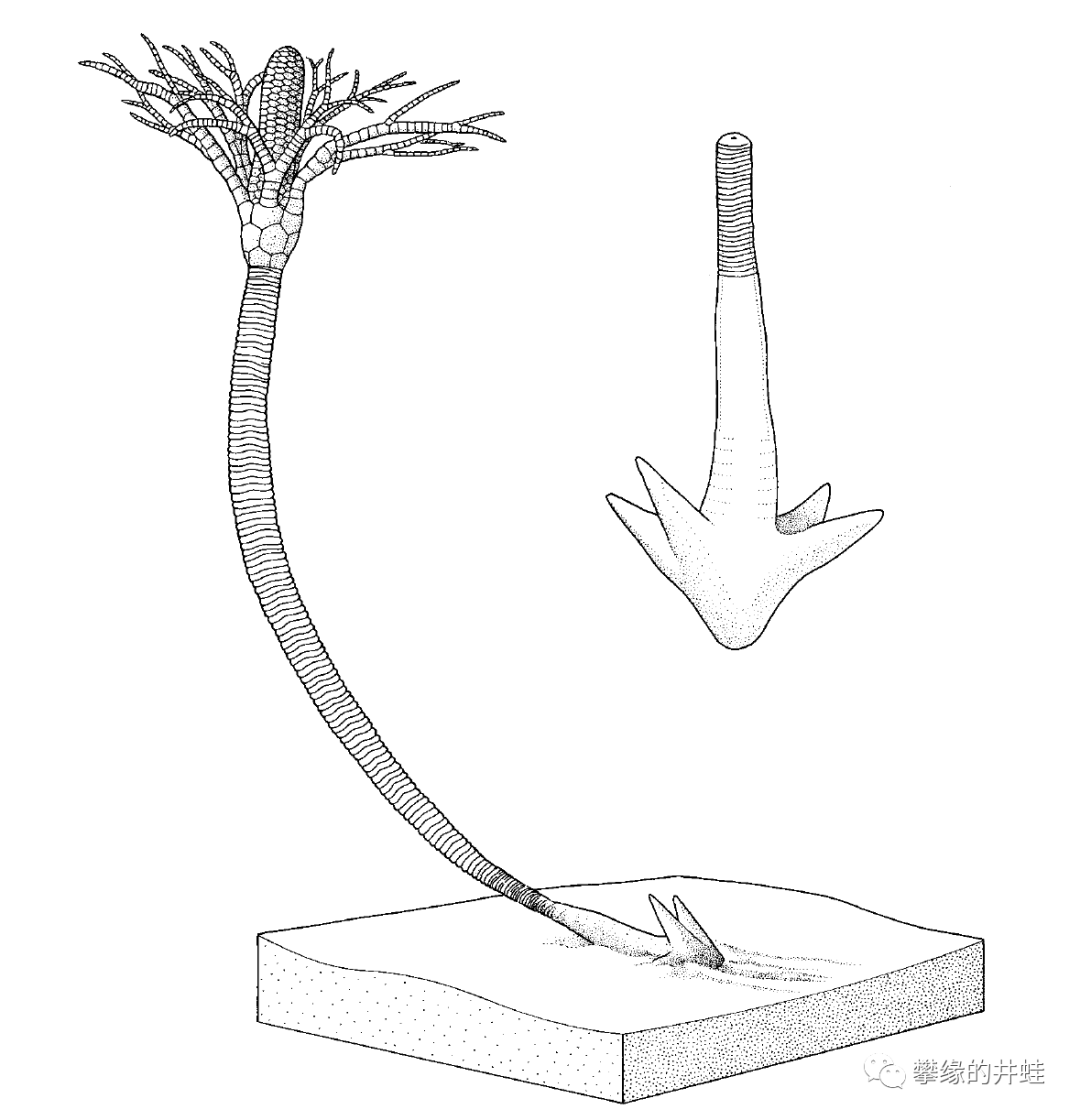
纽约州发现的泥盆纪海百合
Ancyrocrinus bulbosus
复原图。它的柄末端形成一个“锚头”,把自己固定在海底。图片来源自[7]。
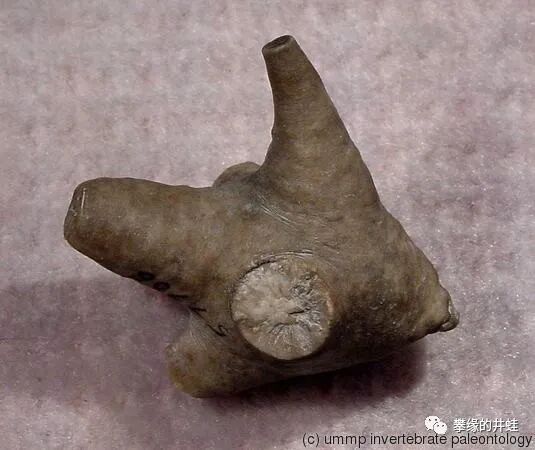
Ancyrocrinus bulbosus
的“锚头”化石。图片来源见水印。
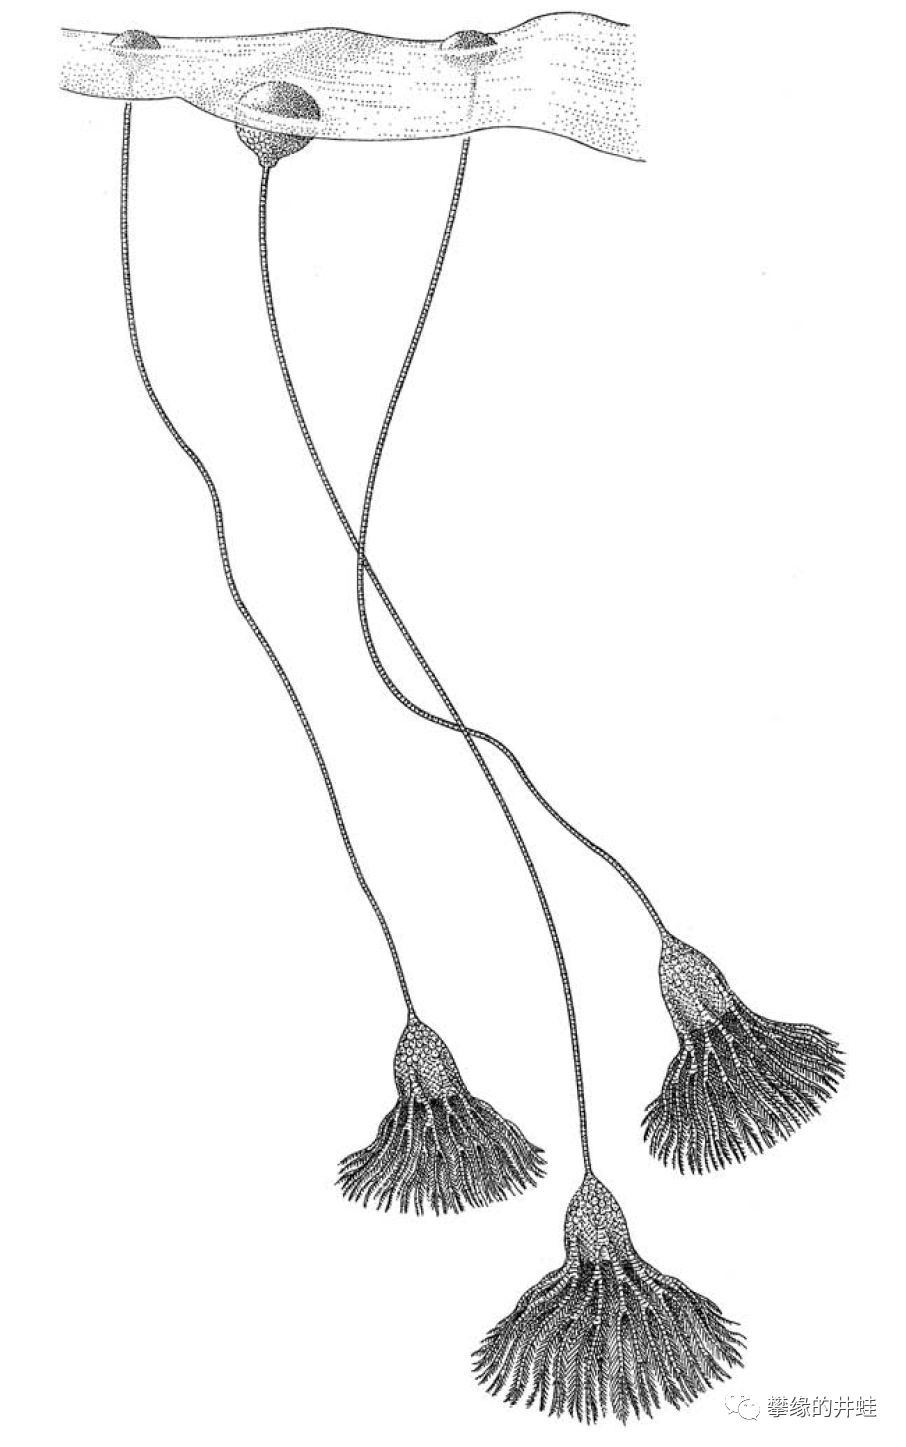
Scyphocrinitids类海百合生活在泥盆纪早期。它的柄末端演化成充气的“浮球(lobolith)”,让自己在海上漂流,就像另一个世界的僧帽水母。图片来源自[8]。
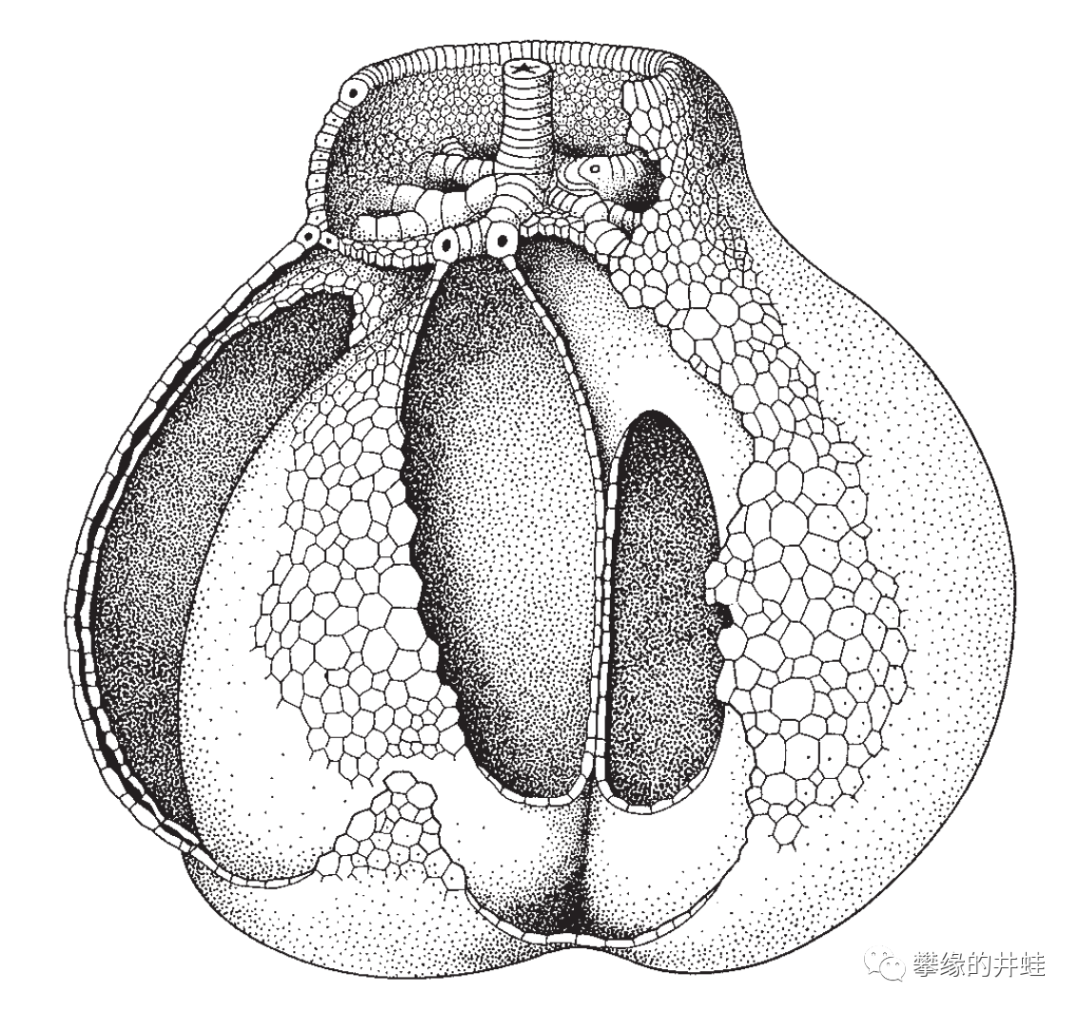
Scyphocrinitids类海百合“浮球”的内部结构。图片来源自[8]。
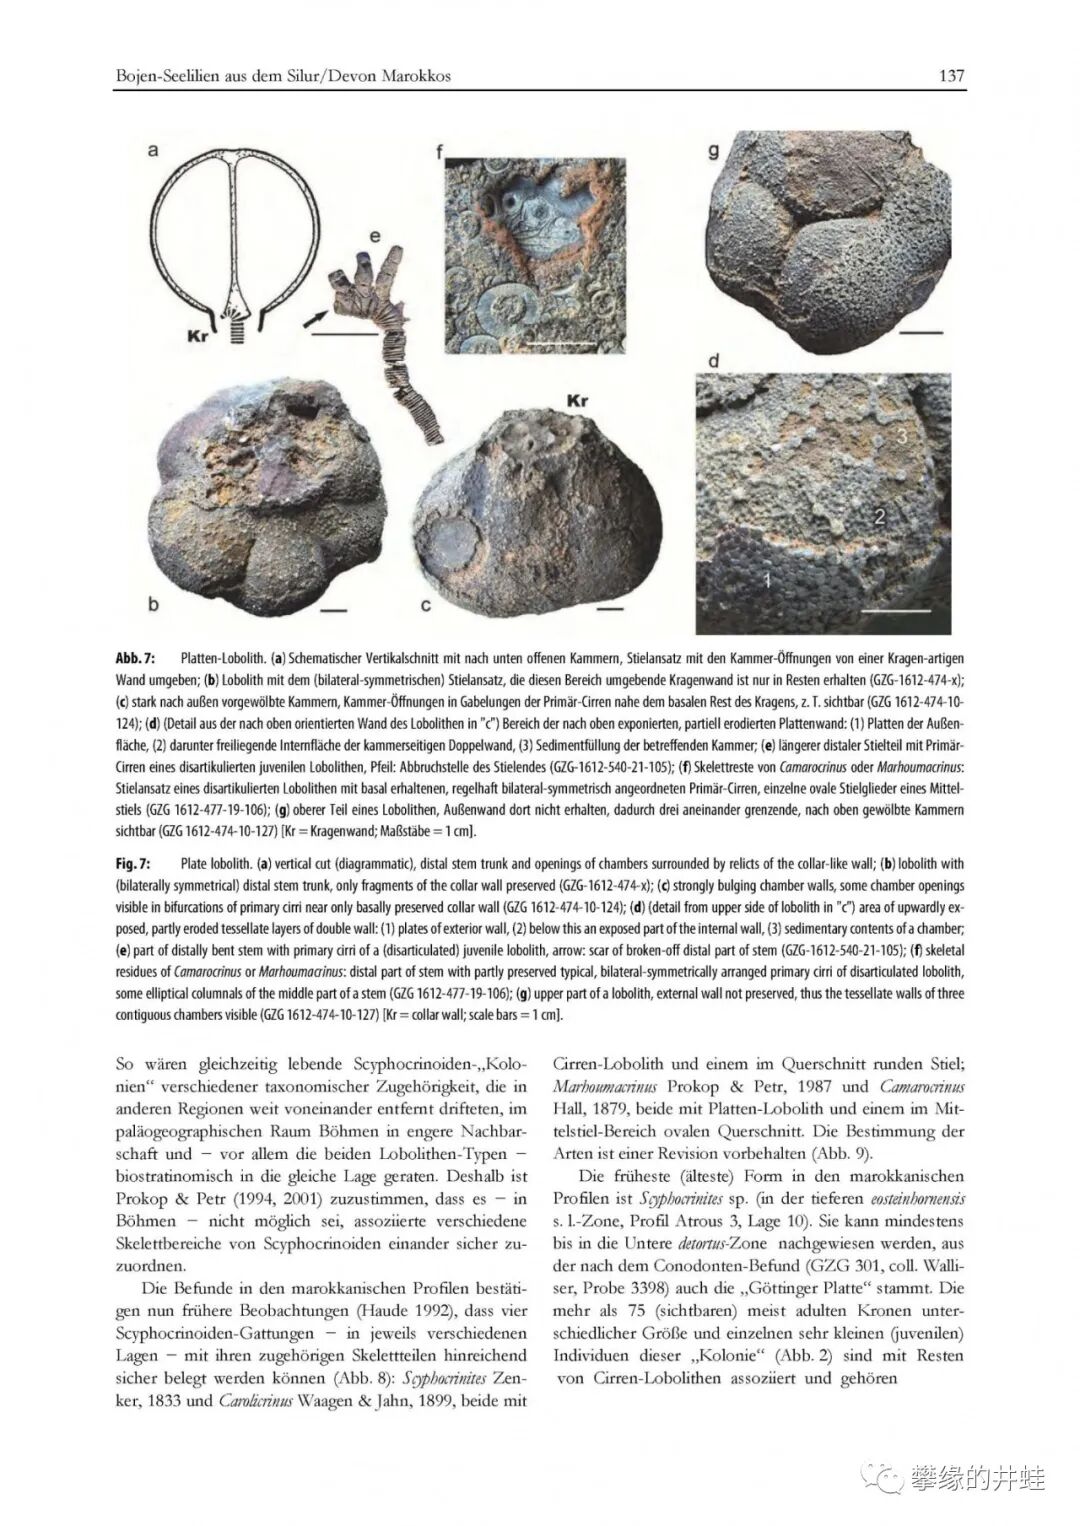
关于Scyphocrinitids类海百合“浮球”的介绍。图片来源自网络。
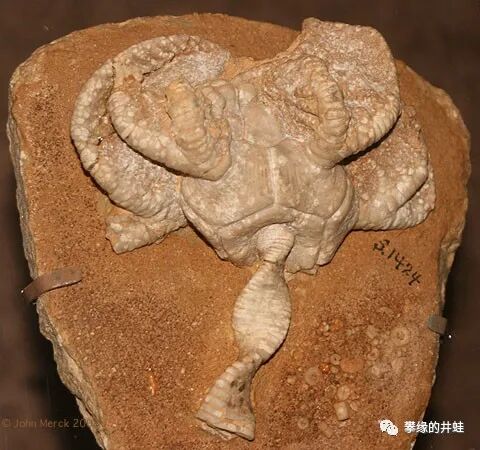
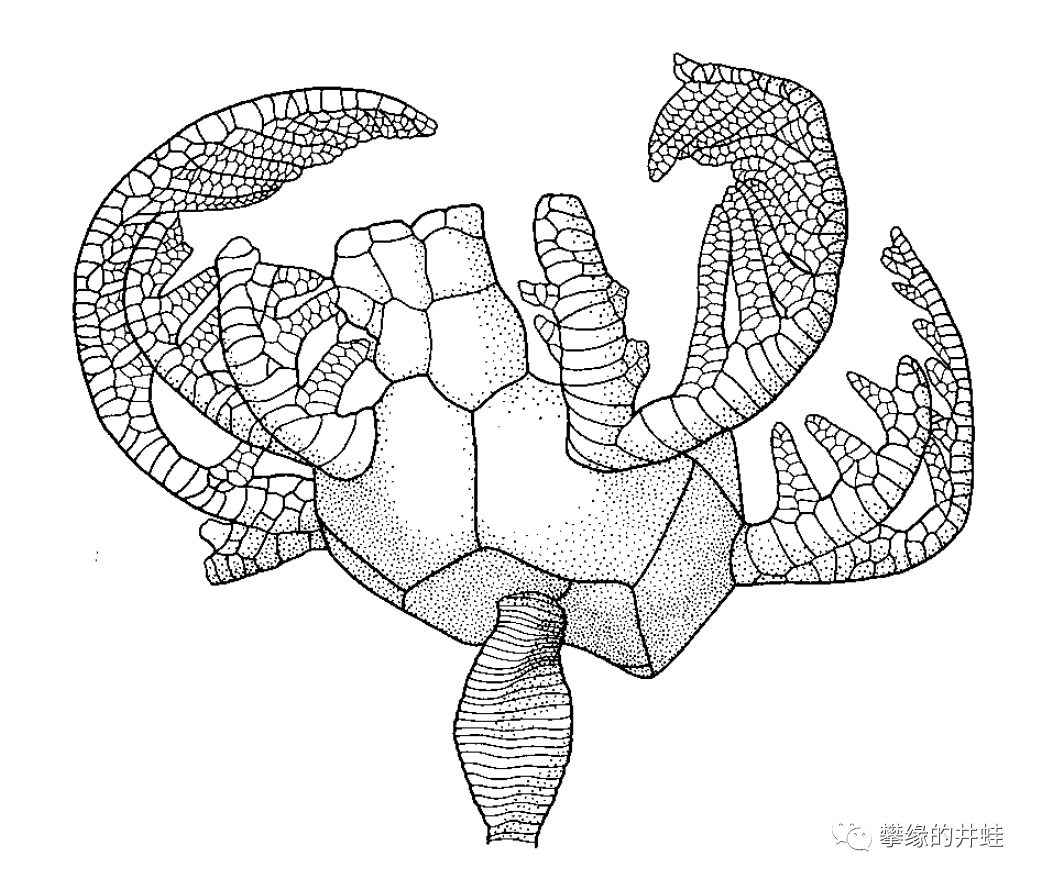
爱荷华州布林顿灰岩(Burlington Limestone)发现的石炭纪早期海百合
Eucladocrinus pleuroviminus
化石(来源见水印)和复原图(来源自[7])。这块化石有两个看点:一是类似“手形”的萼和腕;二是像DNA双螺旋似的盘绕柄。
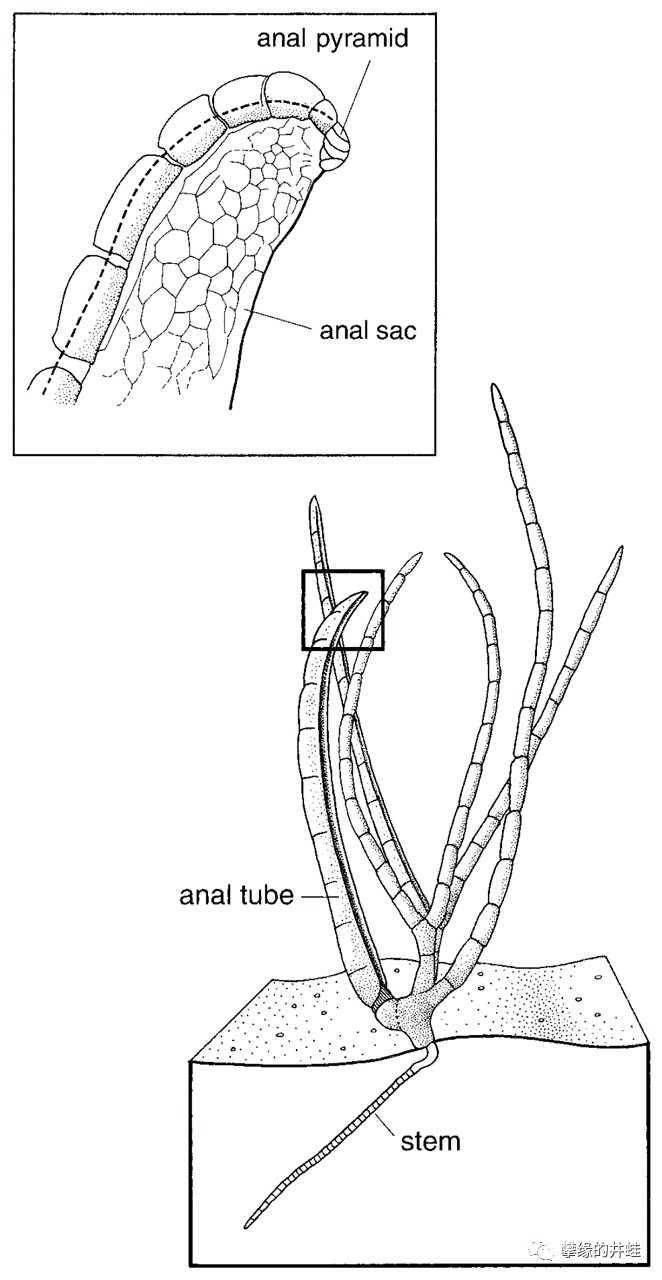
德国洪斯吕克板岩(Hunsrück Slate)发现的泥盆纪早期海百合
Senariocrinus maucheri
复原图。井蛙没有找到化石照片。它的形态已经完全不像是“百合”了,倒更像牛筋草一类的“杂草”。图片来源自[7]。
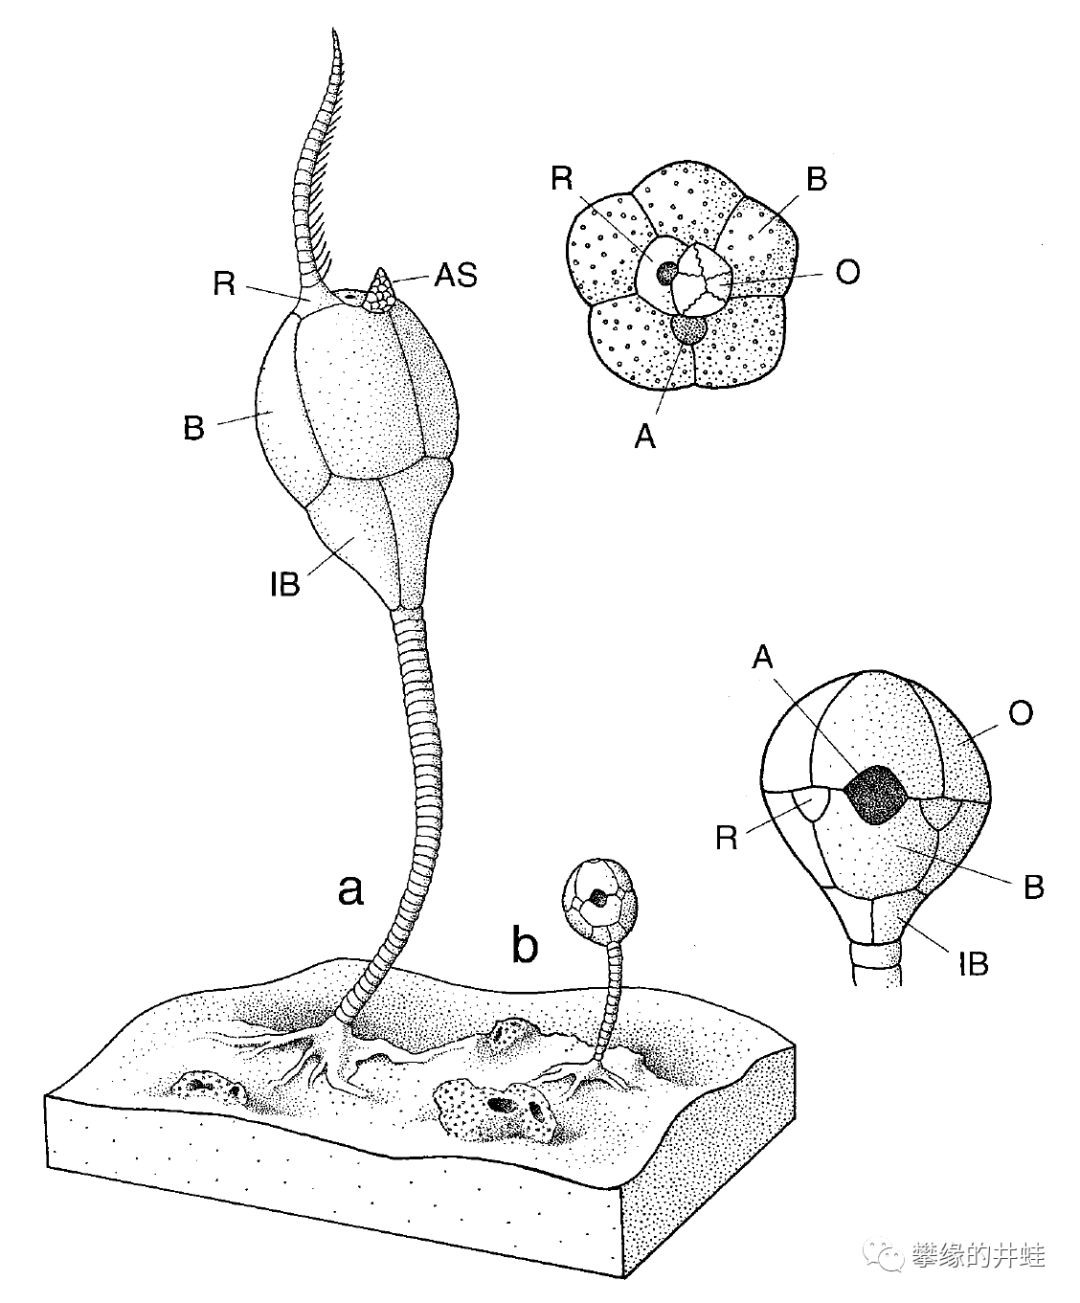
两种印度尼西亚帝汶岛(Timor)发现的二叠纪海百合复原图。a是单腕海百合
Monobrachiocrinus ficiformis
,萼上仅长有一根腕。b是胎海百合
Embryocrinus hanieli
,一根腕都没有。秃倒是秃了,但应该没变强,不然也不至于挺不过大灭绝。图片来源自[7]。
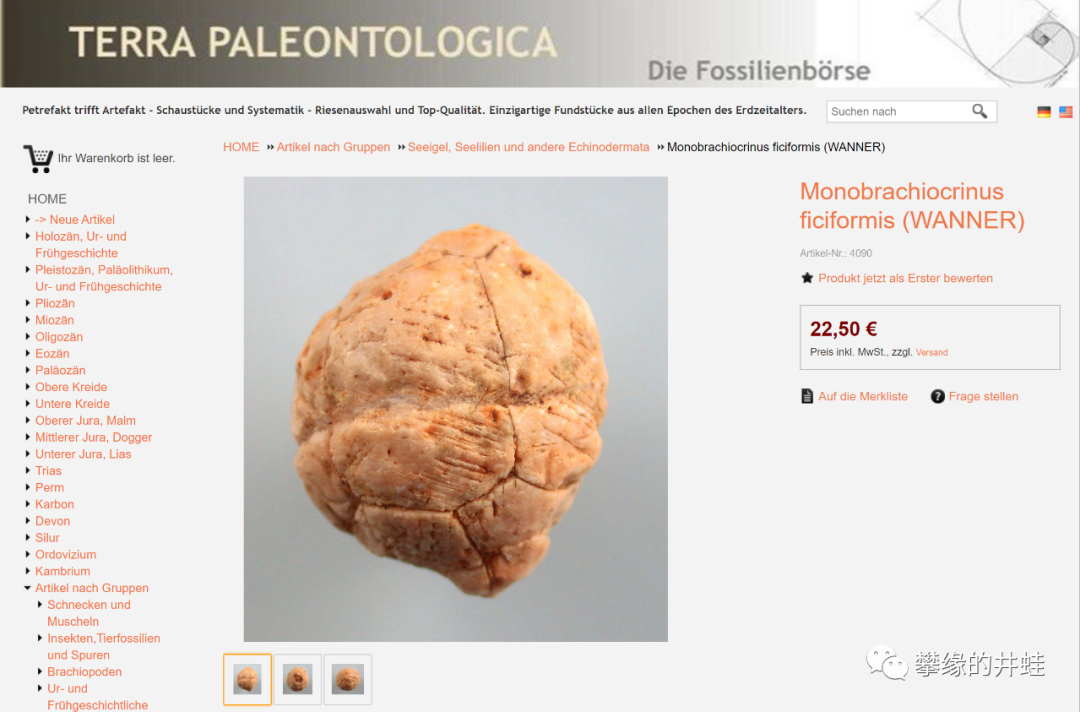
网上出售的单腕海百合萼部化石。
丰富多彩的古生代海百合在二叠纪末尽数凋零。就算还有极少数种类幸存,看起来等待它们的也不外乎两种命运:或者像海蛇函那样,进入“死支漫步”状态,在下一次大灭绝中彻底消失;或者像那些“孑遗生物”一样,躲到深海苟延残喘,最后被作为“活化石”写进教科书。
然而正是那一点犹如风中之烛的生命之火,却在中生代迸发出耀眼的光芒。它们的后裔迅速开始了新一轮辐射演化,形成了一个专属于“后古生代”的全新类群:关节海百合亚纲(Articulata),并孕育出完全不输给古生代海百合的多样性和奇妙设计,直到今天依旧在海洋中恣肆地绽放。
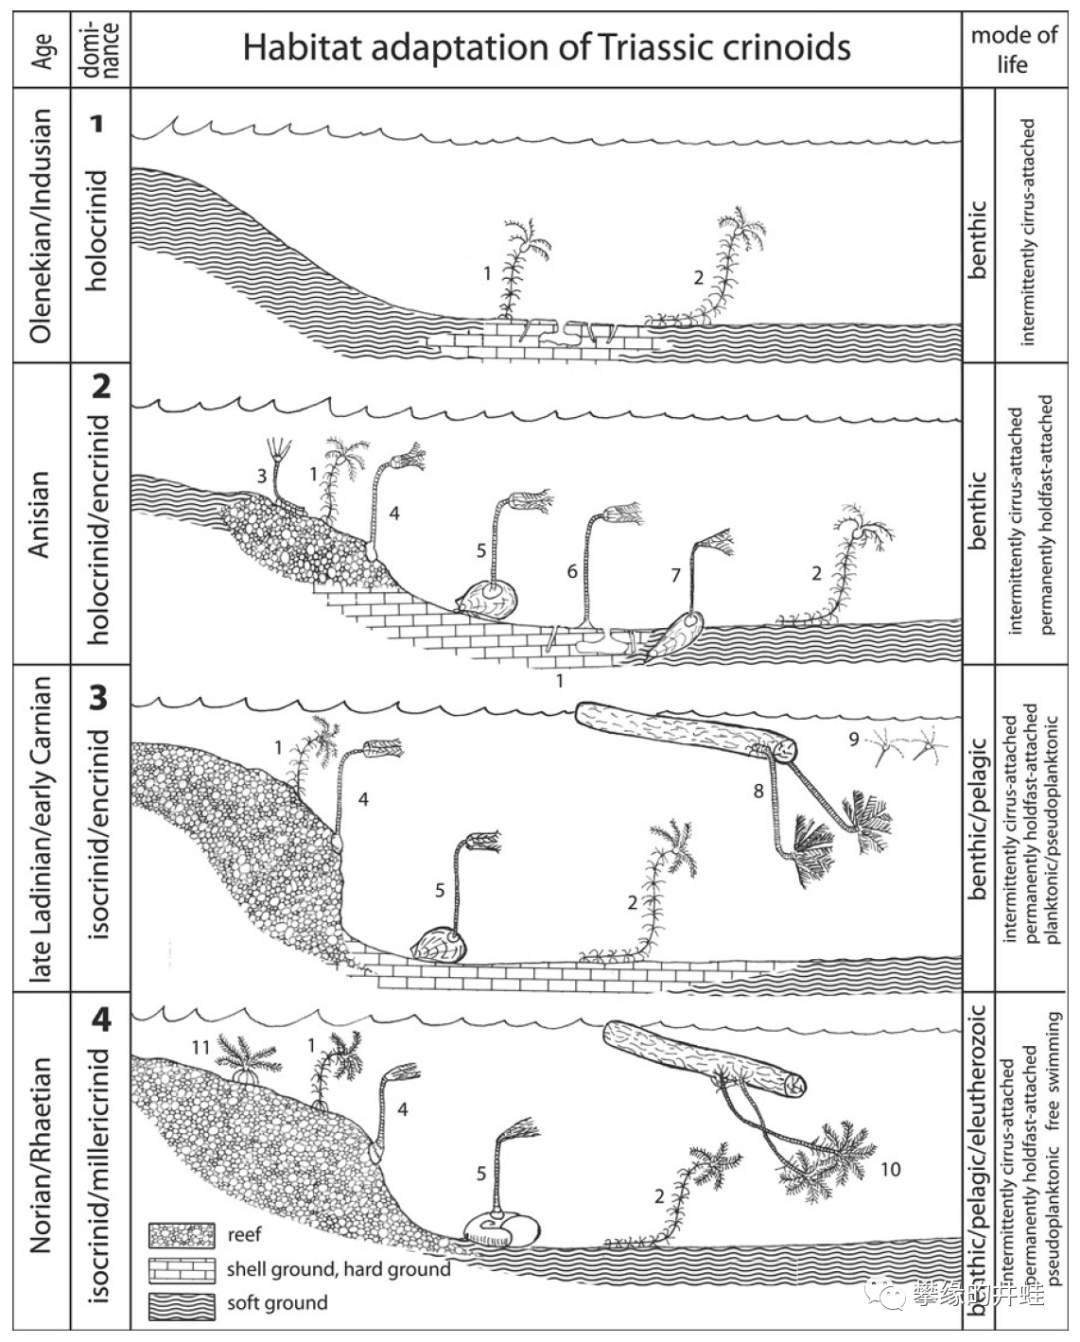
海百合的复兴与三叠纪早期海洋生态系统的复苏同步。上图简单展示了三叠纪海百合的发展过程。从上到下依次为:1.印度阶和奥伦尼克阶,仅有少数幸存的底栖海百合。2.安尼期,适应各种海底基质的海百合迅速增加。3. 拉丁期到卡尼期,除了底栖种类之外,附着在浮木上,和自由漂移的种类也开始出现。4. 诺利期到瑞替期,无柄的类型(海羊齿)出现。图片来源自[9]。
和所有的棘皮动物一样,海百合也有着超强的再生能力。因为萼部太小,很少被攻击到;基本上都是腕或柄受到伤损,然后缺失的部分再重新生长出来。
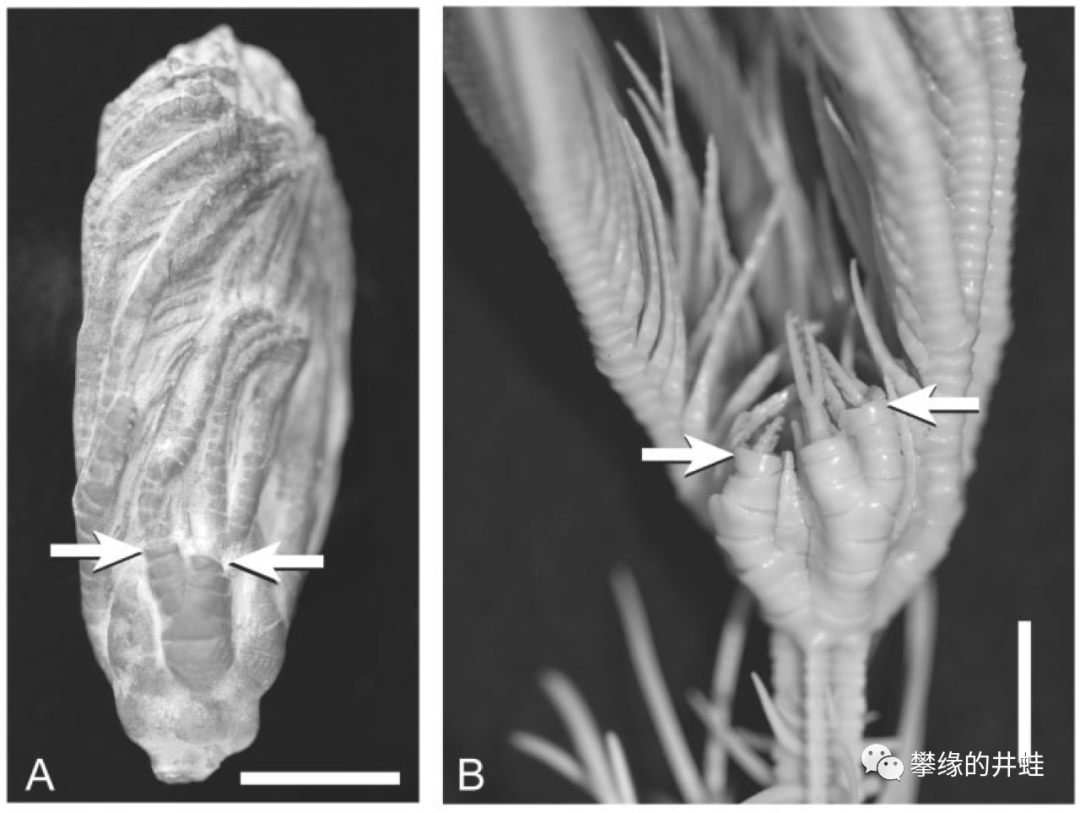
A:印第安纳州发现的早石炭世海百合
Pachylocrinus aequalis
,箭头标示了腕受损后再生出来的部分。B:一种现代海百合
Metacrinus rotundus
,也用箭头标示了再生的腕,作为对比。图片来源自[10],标尺长度1厘米。
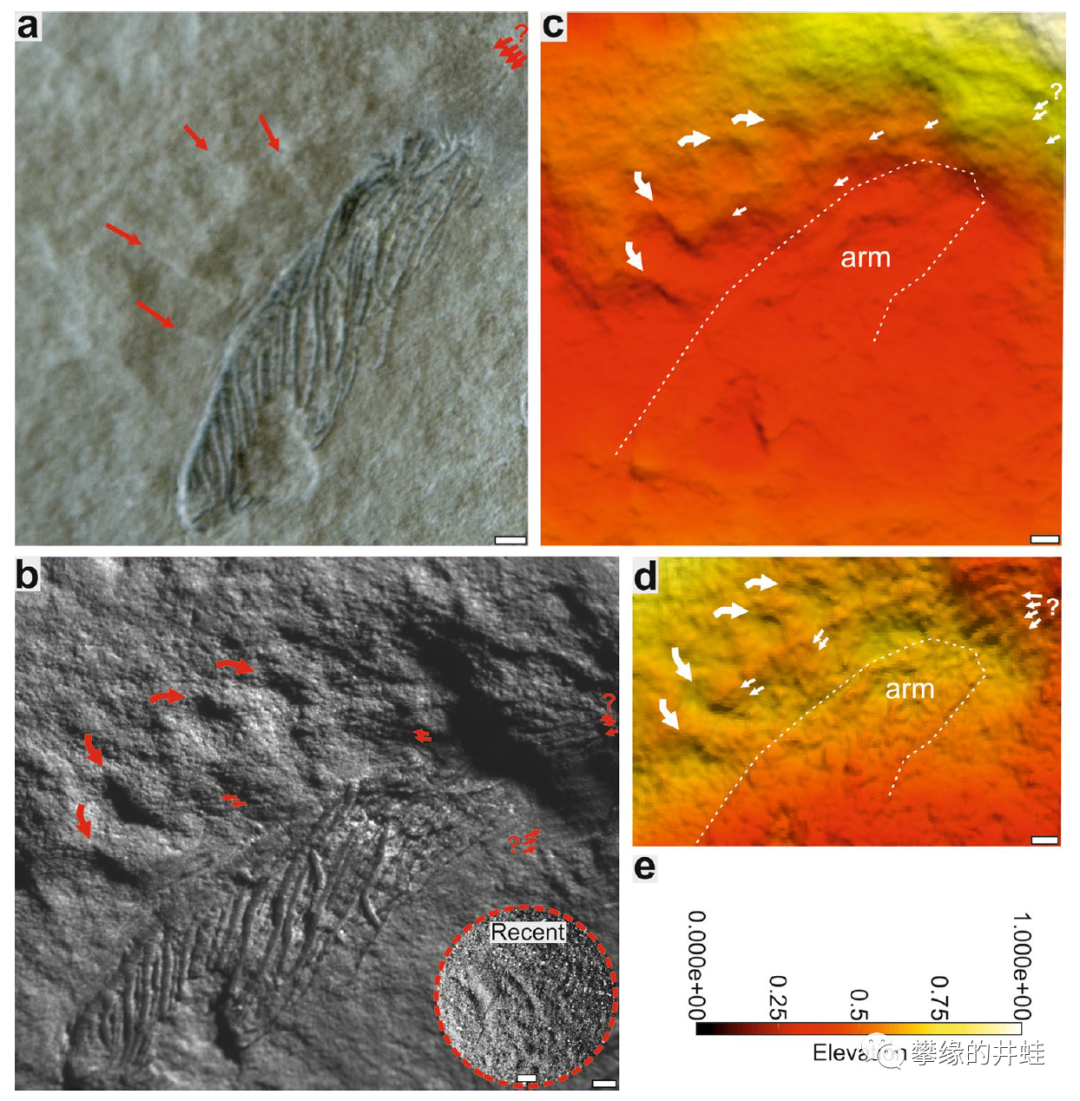
一些海百合的腕甚至还有类似“壁虎断尾”的功能。上图是法国发现的一根早三叠世海百合
Holocrinus sp.
的断腕,旁边的凹痕是这根断腕剧烈扭动留下的,可能是为了吸引捕食者的注意。而现代海百合
Metacrinus rotundus
也有同样的自切行为,剧烈拍打的断腕也会留下类似的凹痕。图片来源自[11],标尺长度1毫米。
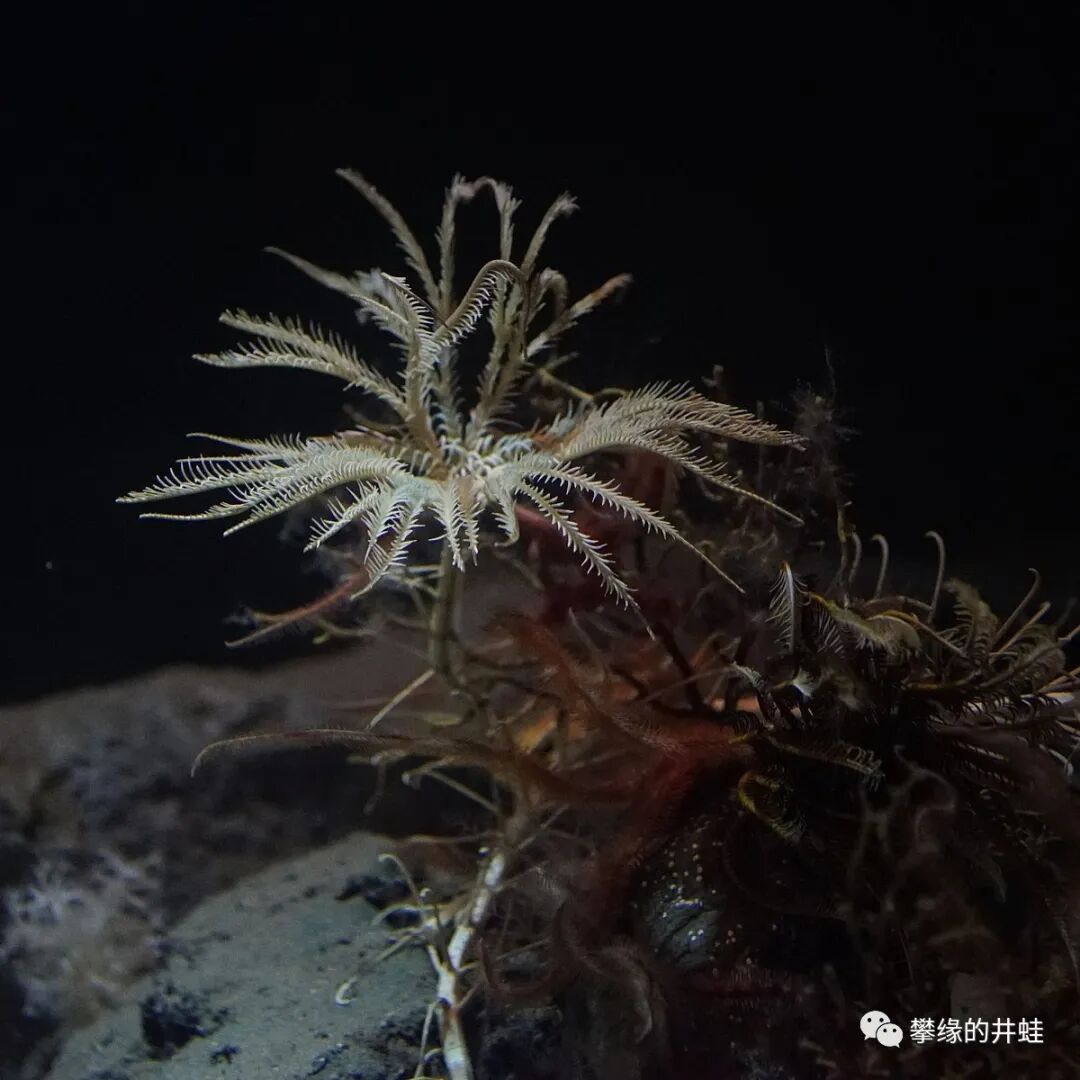
Metacrinus rotundus
的样子。图片来源自Wikimedia。
但是固着生长的海百合有一个致命的弱点:它们的“柄”或者“茎”一旦遭到破坏,就无法固定身体,摆正姿势。“脚下没根”的海百合会被水流携带翻滚,或者被沉积物掩埋,最终死于饥饿或者窒息。
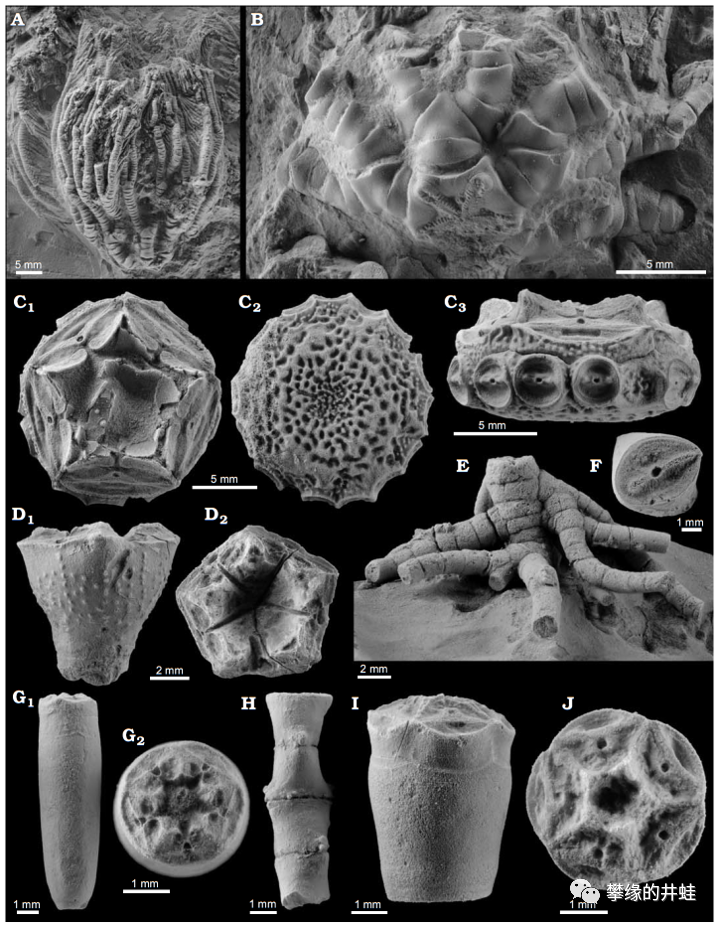
一些西班牙发现的白垩纪到始新世海百合化石。其中E是
Democrinus sp.
的附着器,就像植物的根一样,把海百合固定在海底。图片来源自[12]。
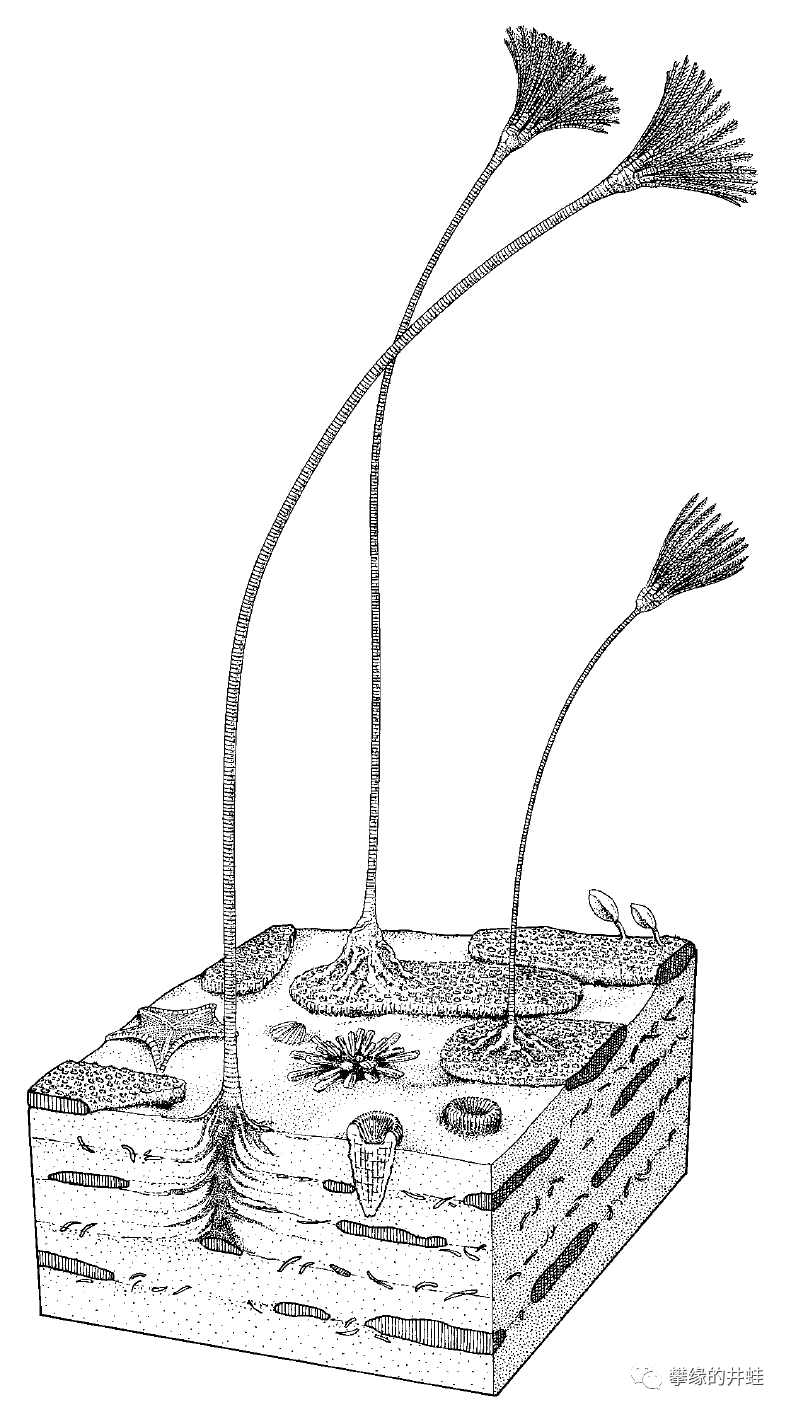
由于海底基质的复杂多样,海百合的固着方式也各不相同,甚至同一种海百合也可能生长出几种固着器官。上图是侏罗纪海百合
Liliocrinus munsterianus
复原图。两个个体(中、后)用基盘把自己“粘接”在死去的珊瑚骨骼上,另一个个体则把根状的蔓枝扎进软质泥沙。这种固定生长的模式曾经是海百合纲的绝对主流。但是这样的海百合一旦“断茎”,就会陷入上天无路入地无门的绝境,就算有再生能力也无济于事。图片来源自[7]。
“断茎”的危险在三叠纪之后急剧增加。这主要是因为有能力破坏海百合骨骼的底栖食肉动物,比如十足目的虾蟹,特别是肉食性的海胆的在这一时期发展迅速。
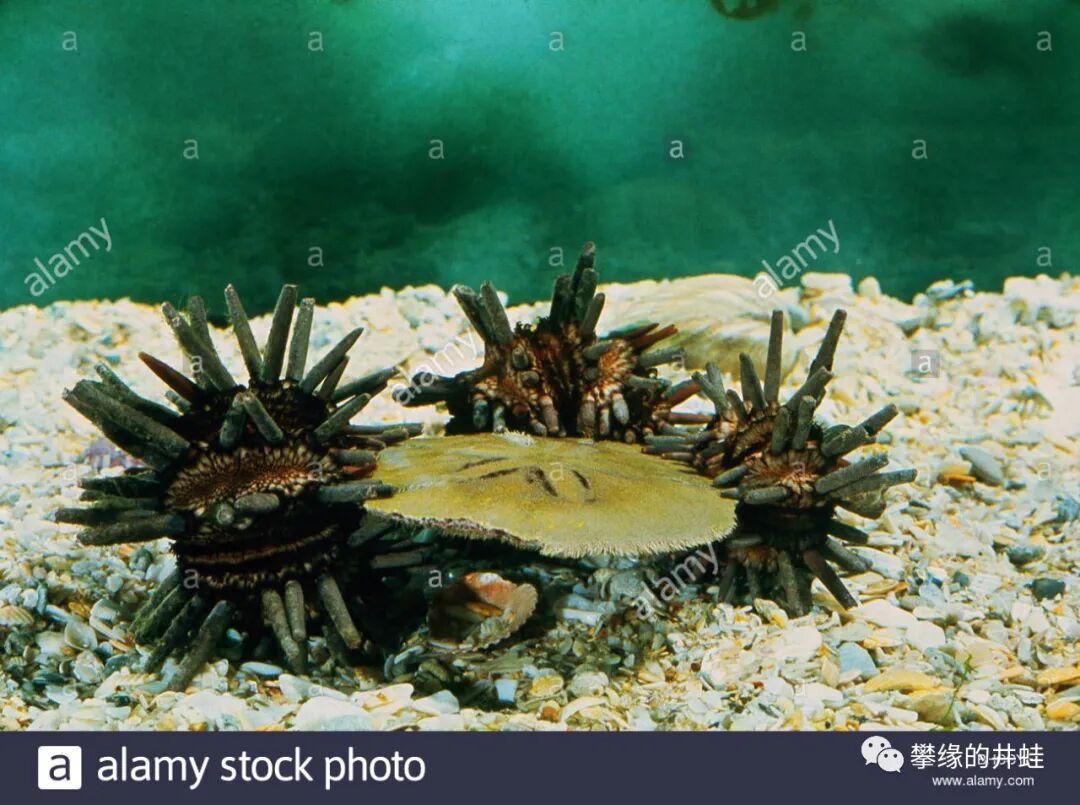
一群真头帕属
Eucidaris
肉食性海胆正在啃食一只沙币海胆。海胆和海百合是肉食性海胆的理想猎物:运动能力弱容易捕捉,可以用“亚里士多德提灯“轻易咬碎,又能够提供足够的钙质。至于缺乏营养,反正肉食性海胆也一样瘦骨嶙峋,不需要多少的营养。图片来源见水印。
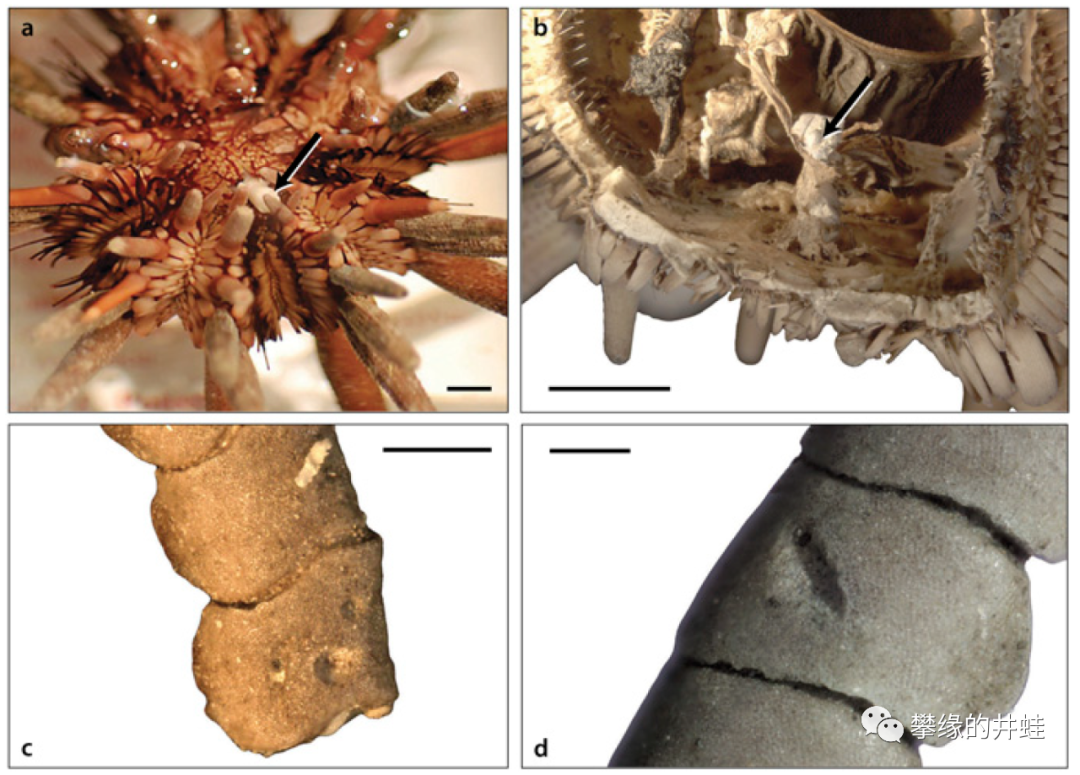
a:真头帕属肉食海胆腹面观,它正在吞食一条海百合的茎(箭头标示)。b:另一只真头帕属肉食海胆的解剖图,它的体内有许多海羊齿腕的碎片(箭头标示)。c-d:真头帕属肉食海胆肠道内的海羊齿腕碎片,上面可以看到海胆牙齿(亚里士多德提灯)啃咬的印痕。图片来源自[13],标尺长度1毫米。
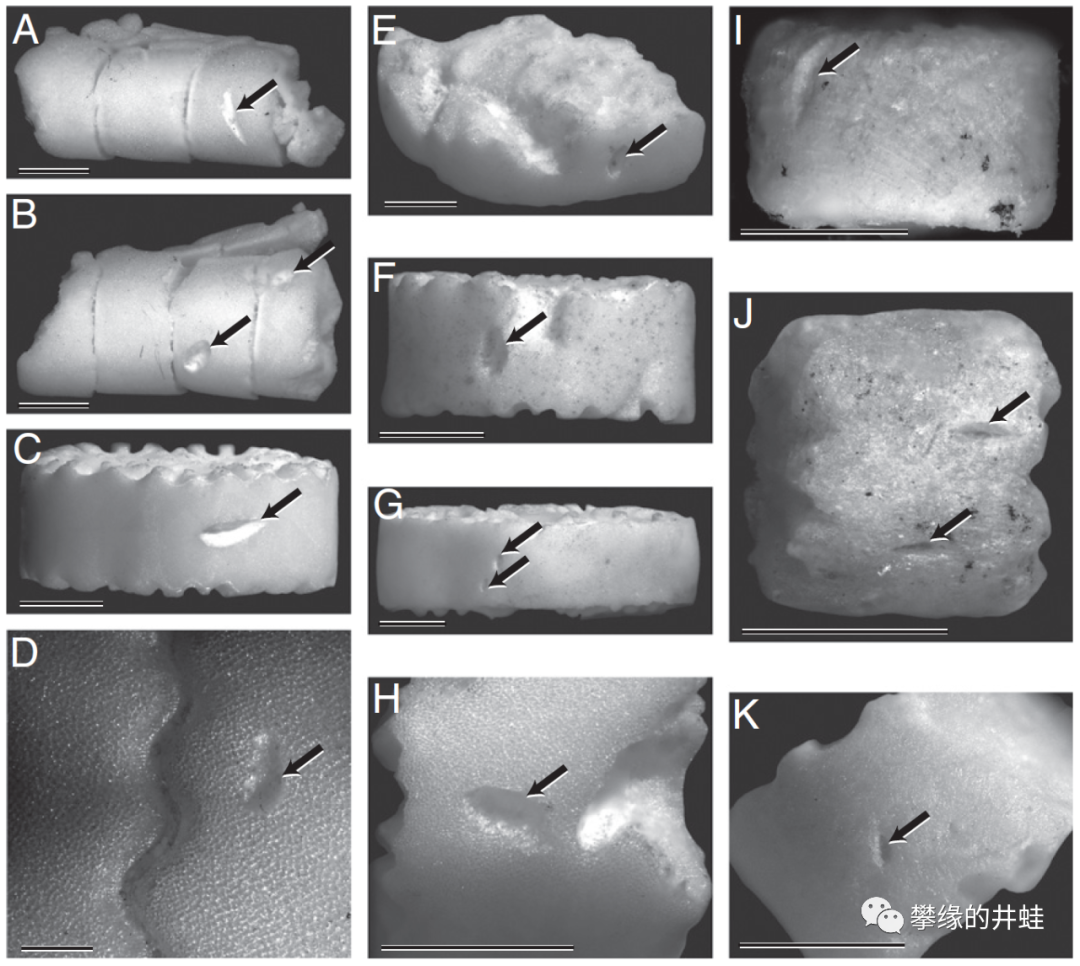
A-H:带有海胆咬痕的现代海百合骨骼碎片。I-K:波兰圣十字山(Holy Cross Mountains)发现的中三叠世海百合化石,上面也出现了类似的咬痕。这表明肉食性海胆对海百合的猎杀,至少从三叠纪就开始了。图片来源自[13] ,标尺长度1毫米。
很可能是为了应对新的天敌,和古生代海百合相比,后古生代海百合有一个明显的改变,那就是可以自由移动的种类所占的比例大幅增加,最终成为海百合纲的主流。
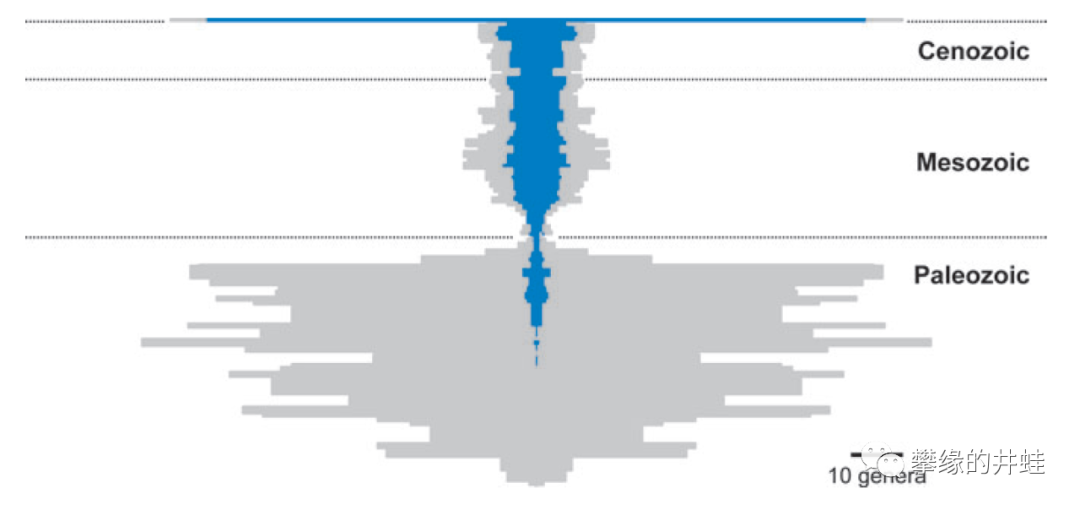
古生代(Paleozoic)和后古生代(Mesozoic和Cenozoic)海百合多样性(属的数量)对比。注意蓝色的横条代表可以自由移动的属,灰色的横条代表固着生长的属。二者的比例在二叠纪末大灭绝之后发生了明显的反转。图片来源自[1]。
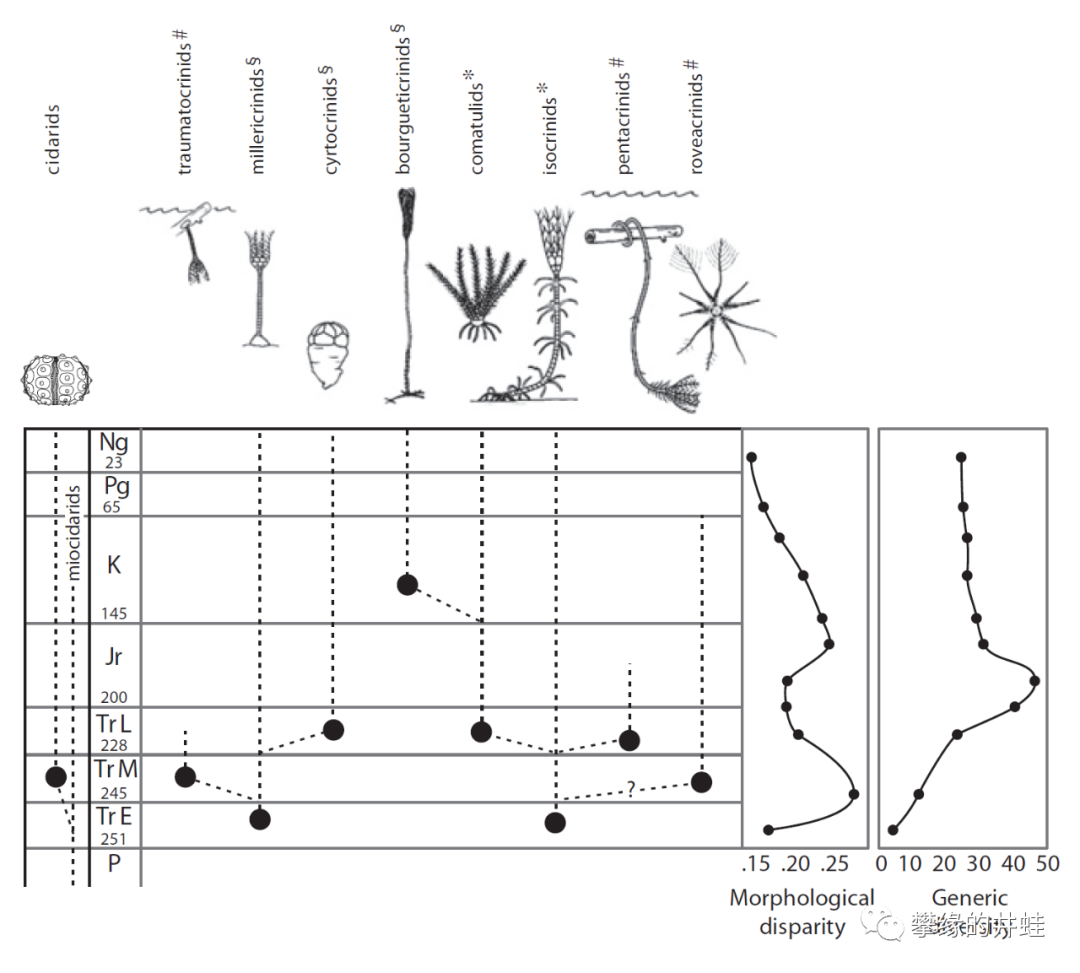
头帕类海胆(Cidaroida,主要的肉食性海胆类群)在中三叠世大量出现(最左列)。与此同时,游移生活的海百合数量迅速增加。很容易想到这是一场棘皮动物间的军备竞赛。图片来源自[13]。
下面就来看看海百合们是怎么实现自由运动的。
最简单的做法就是抛弃柄端的固着器官,转而用柄上的蔓枝(Cirri)“站“在海底。
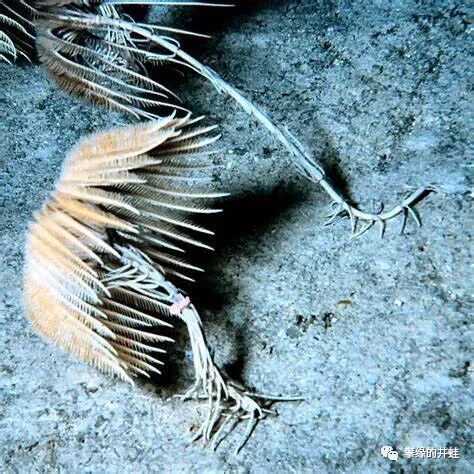
本回第一张图里的美丽新海百合。注意它是怎样用柄后端的几圈蔓枝“抓“住海底,以”挺直身体“。图片来源自网络。
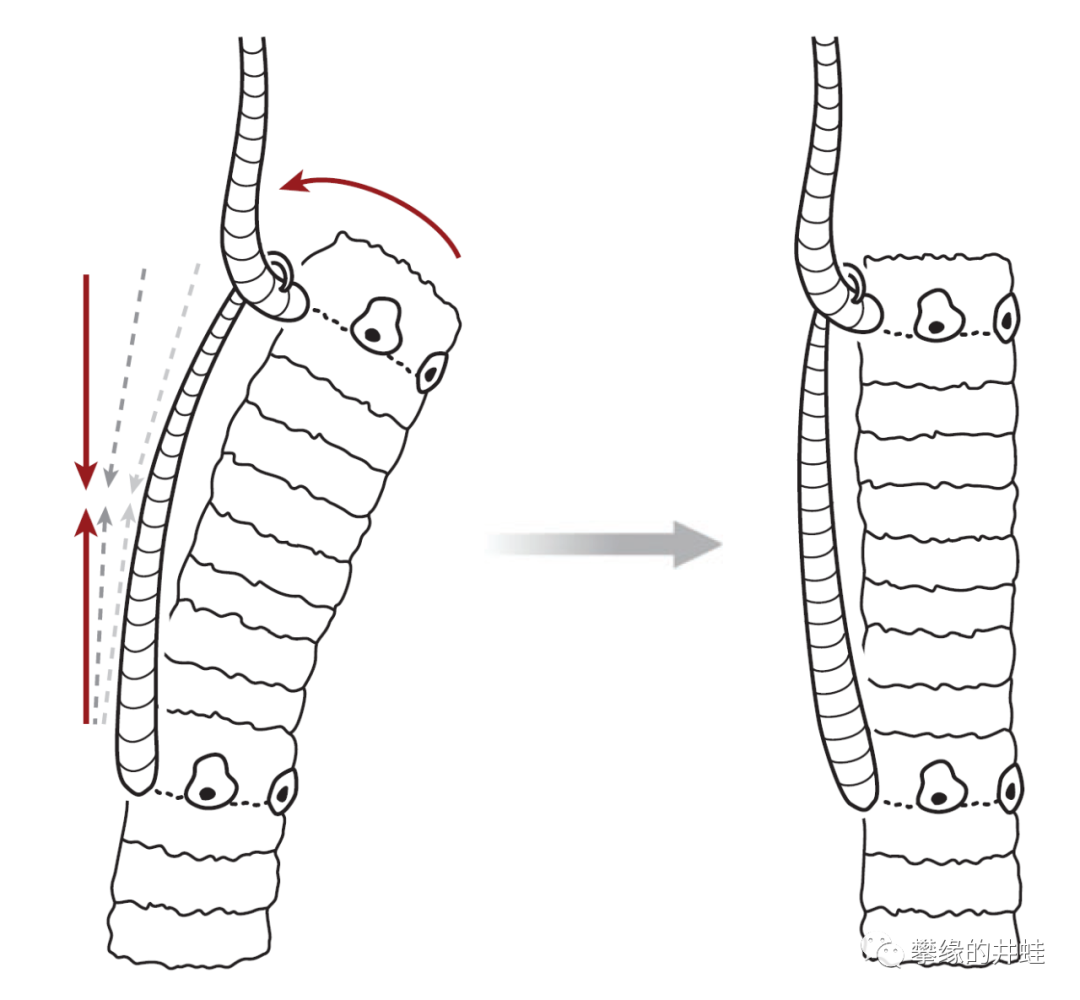
每条蔓枝都可以自由扭摆、伸展和卷曲,不但可以站立,还能辅助爬行,或者互相勾连,让柄弯曲成合适的弧度。图片来源自[1]。
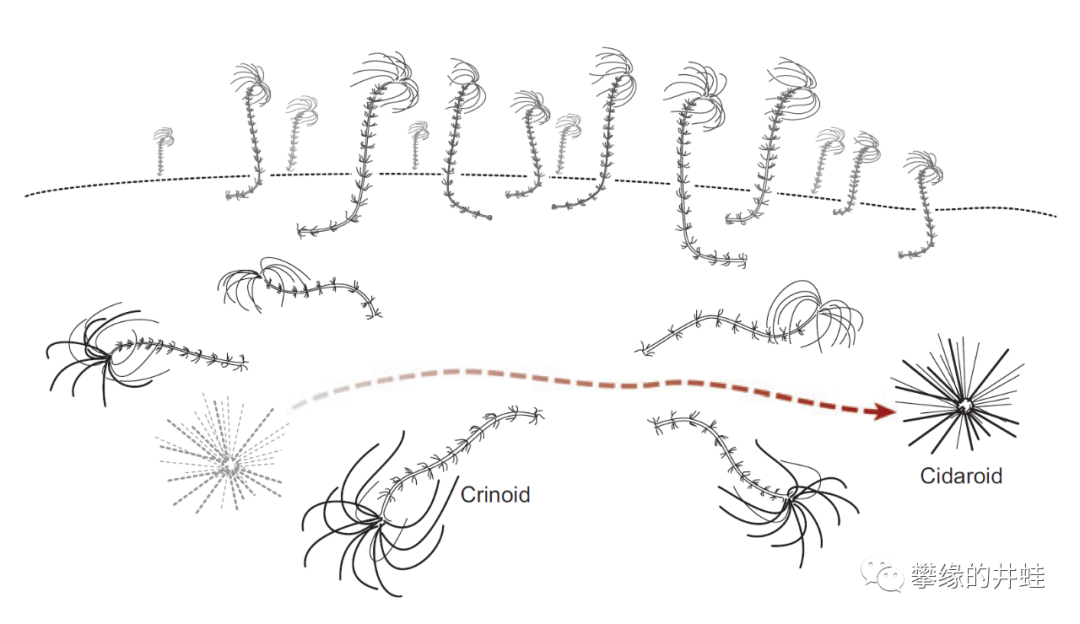
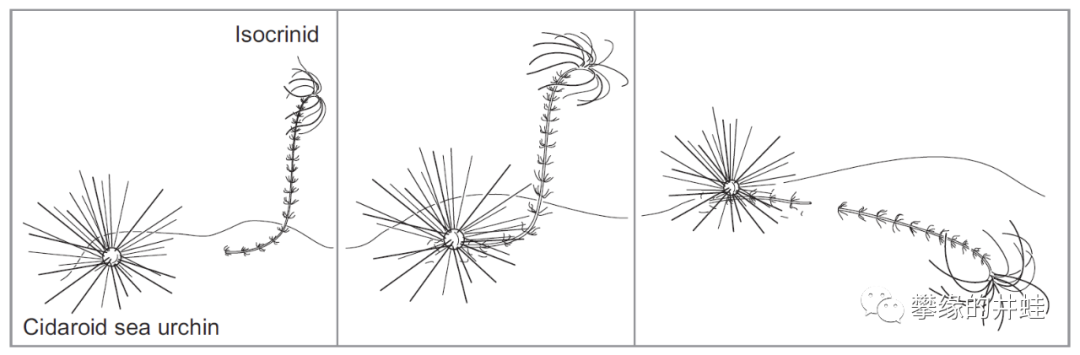
用蔓枝而不是固着器“站立“的海百合无疑获得了更高的机动性。它们可以从肉食性海胆的身边爬开(上图);或者在被海胆啃食时放弃部分柄逃生(下图)。图片来源自[1]。
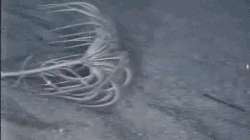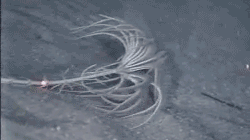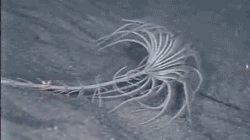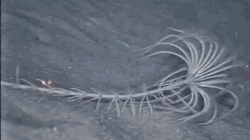
一只海百合路过。它会寻找水流、食物、基质适合的地方,再支棱起来。图片来源自网络。
有些海百合继续保留固着器,但把自己固定在海胆绝对够不着的地方——比如在海面上飘荡的浮木。生长在浮木上的海百合最早可以追溯到泥盆纪[8]。在卡尼期后,由于暴雨浇灌,茂密的森林覆盖了世界各地,被冲入海洋的浮木急剧增加,附着在其上的海百合也大量出现。
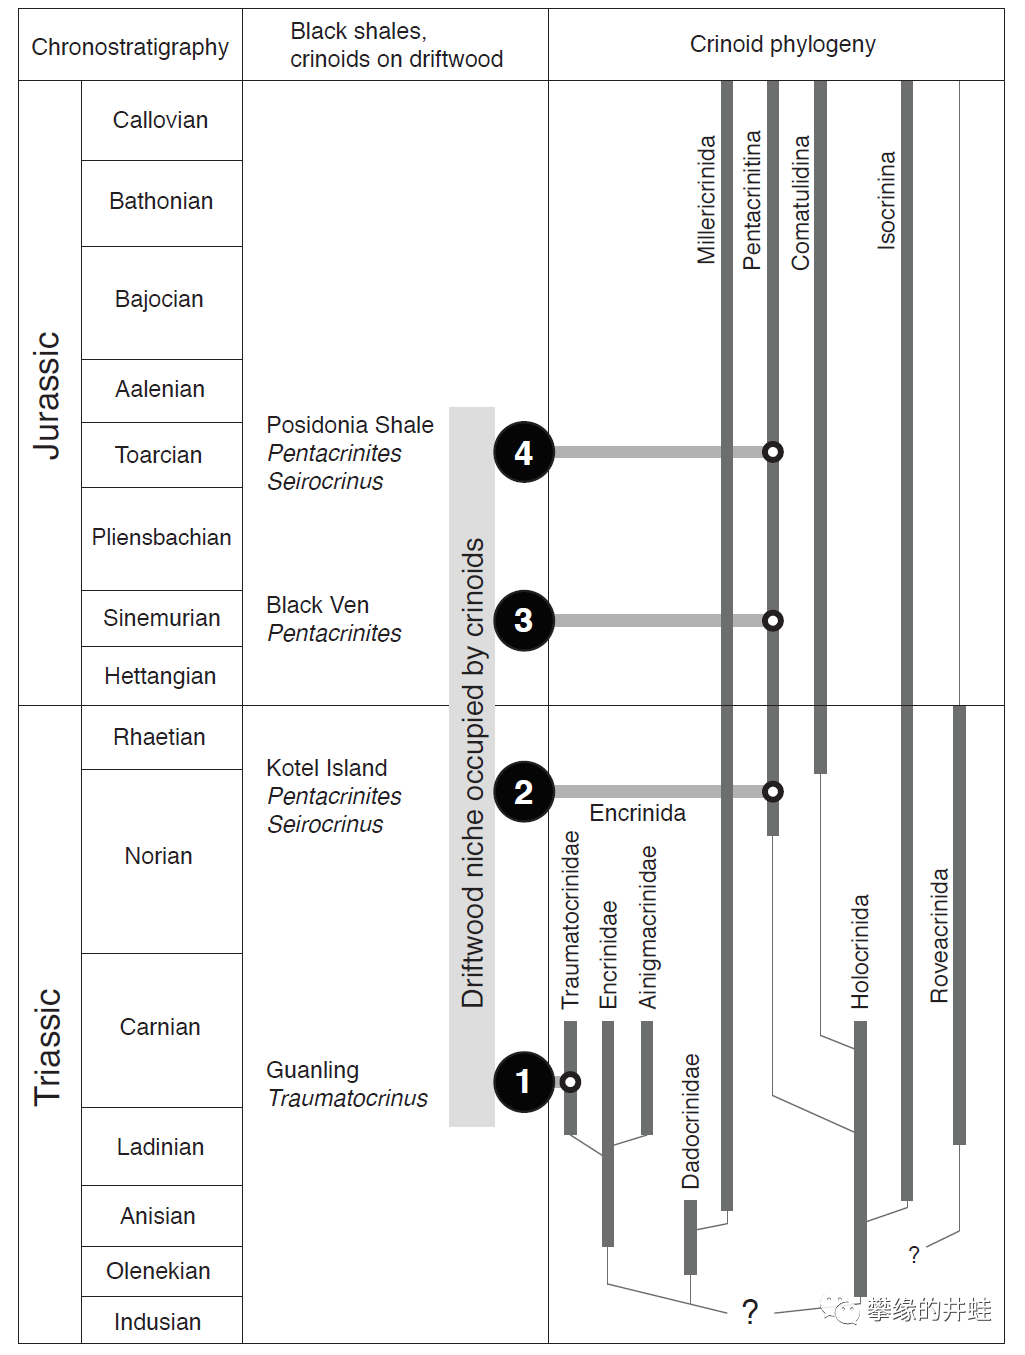
晚三叠世到早侏罗世附生在浮木上的海百合。1为关岭化石群发现的创孔海百合属
Traumatocrinus
。2,3,4都是Pentacrinites科的海百合,化石在西伯利亚(2)、英国(3)和德国(4)发现。图片来源自[8]。
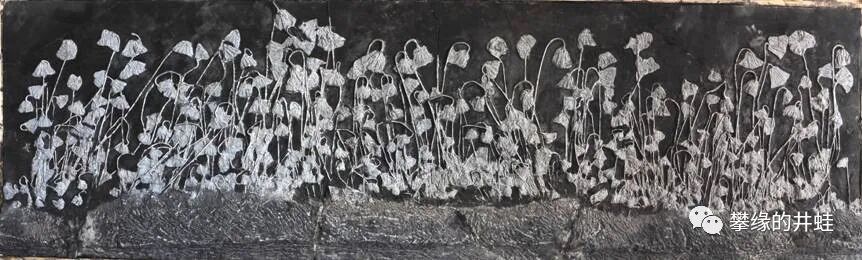
贵州关岭化石群发现的晚三叠世许氏创孔海百合
Traumatocrinus hsui
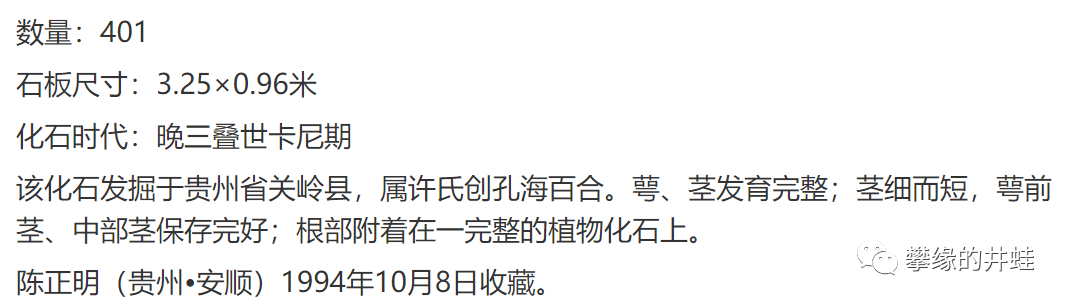
。根据上海大世界基尼斯总部网站的介绍,这是“单块天然石板上有最多“朵”海百合化石“。摘录化石资料如下:
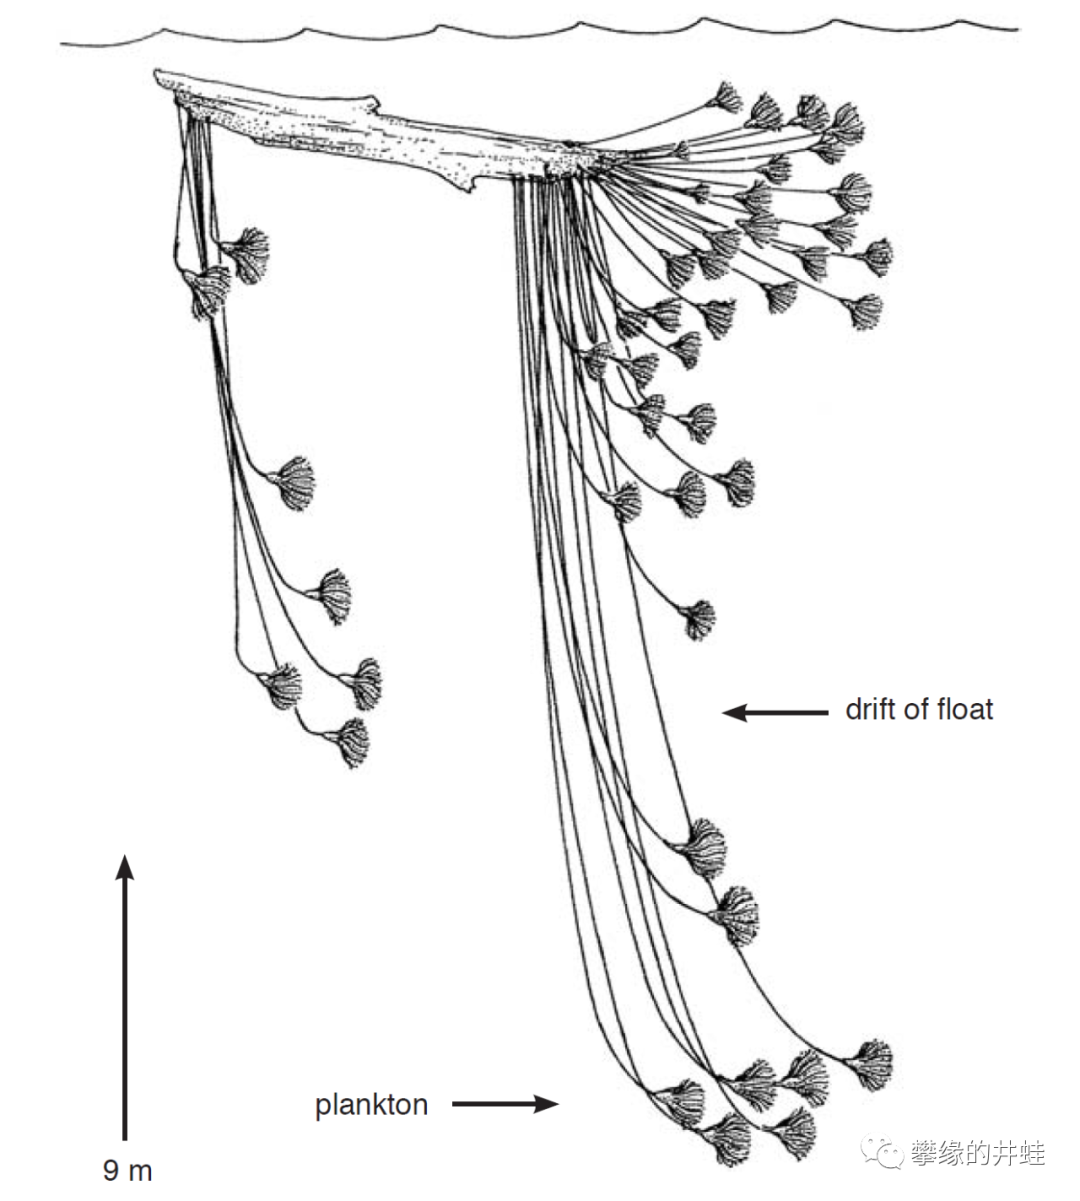
浮木上的许氏创孔海百合群落复原图。图片来源自[8]。
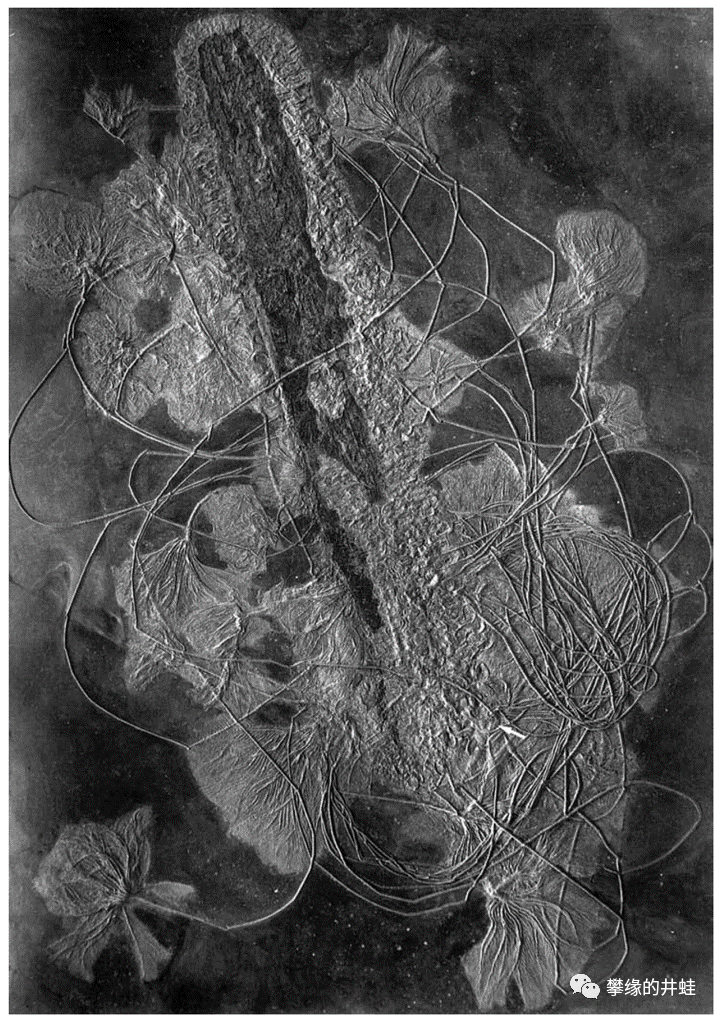
德国获尔兹梅登(Holzmaden)发现的侏罗纪托阿尔阶(Toarcian)海百合
Seirocrinus subangularis
,也是成群生长在一根浮木上。石板尺寸:2.5x3.5米。图片来源自[8]。
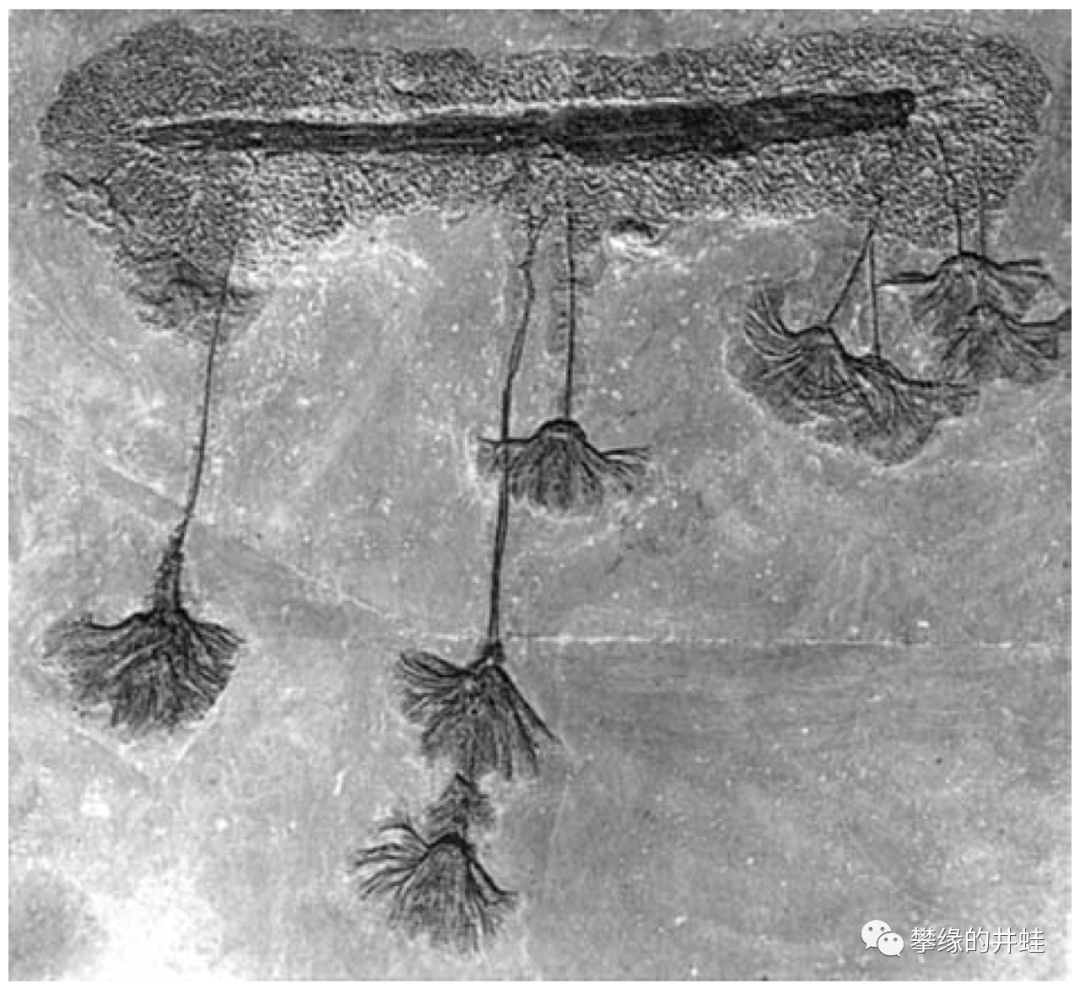
另一块
Seirocrinus subangularis
化石。石板尺寸:2.5x2.6米。图片来源自[8]。
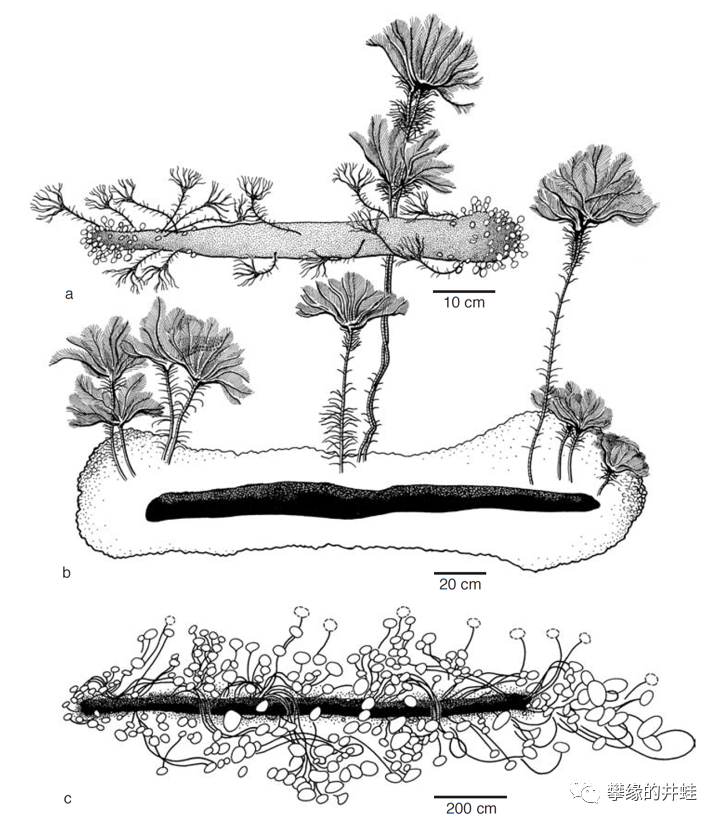
浮木上的
Seirocrinus subangularis
群落复原图。图片来源自[8]。
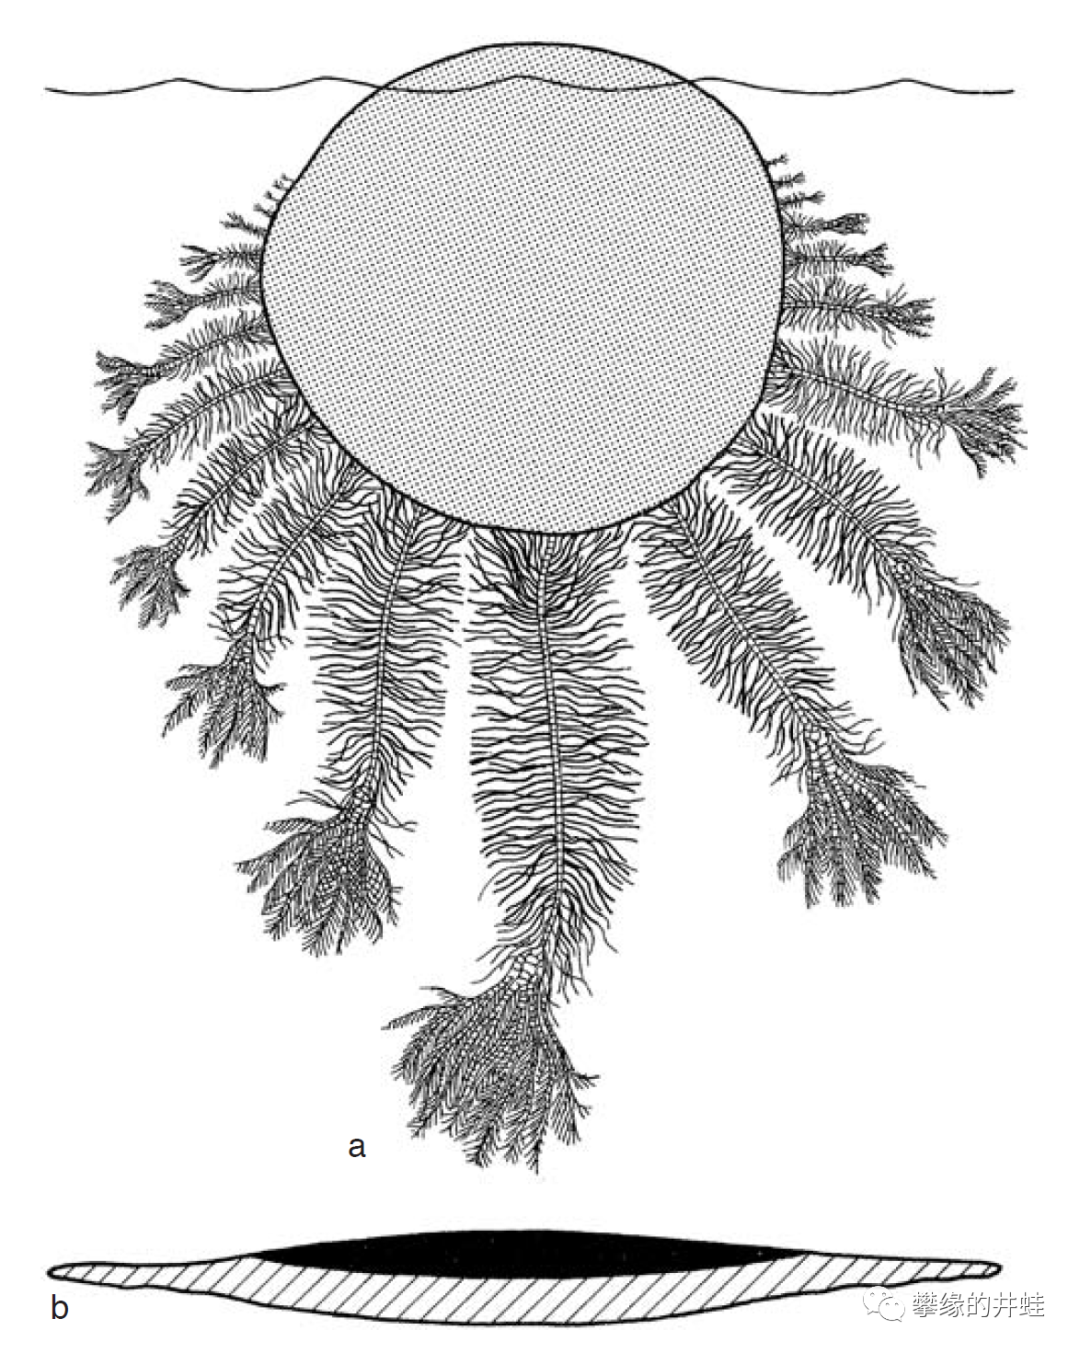
Seirocrinus
属所在的Pentacrinites科在浮木上的生长情况。看来海百合的幼体会最先占据浮木底部的位置(食物最丰富,也能躲避日晒和海浪拍击),这里的海百合年龄和体型也最大。后来者只能往周围排,于是越往两边,越靠近水面的位置,海百合越年轻,加上环境恶劣食物缺乏,体型也越发小。这个种群的内部也在进行着激烈的竞争。图片来源自[8]。
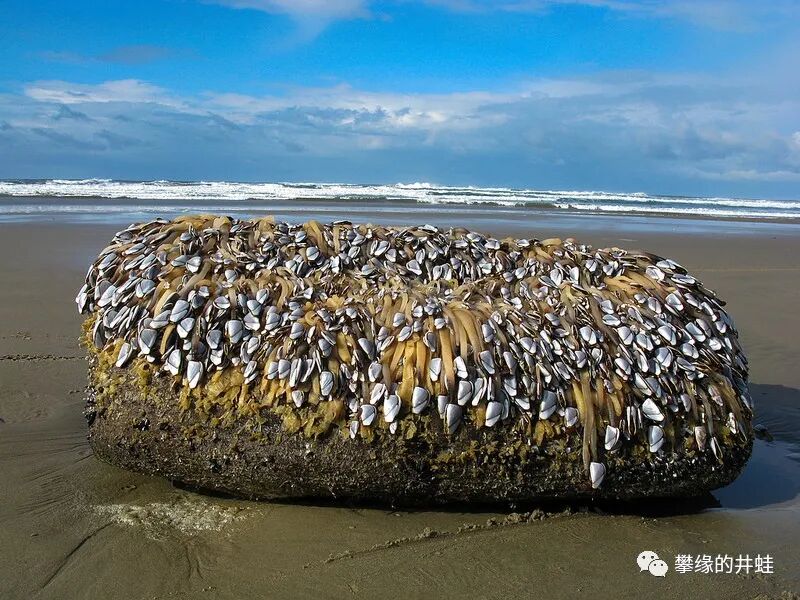
现代已经没有附生在浮木上的海百合了。和它们生态位最接近的,可能要数甲壳动物中的茗荷(Goosebarnacle)。侏罗纪的时候再介绍。图片来源自网络。
也有的海百合更进一步,它们抛弃了祖传的柄,从而获得更高的机动性。从三叠纪到现在,许多海百合类群都平行演化出“无柄”的形态。
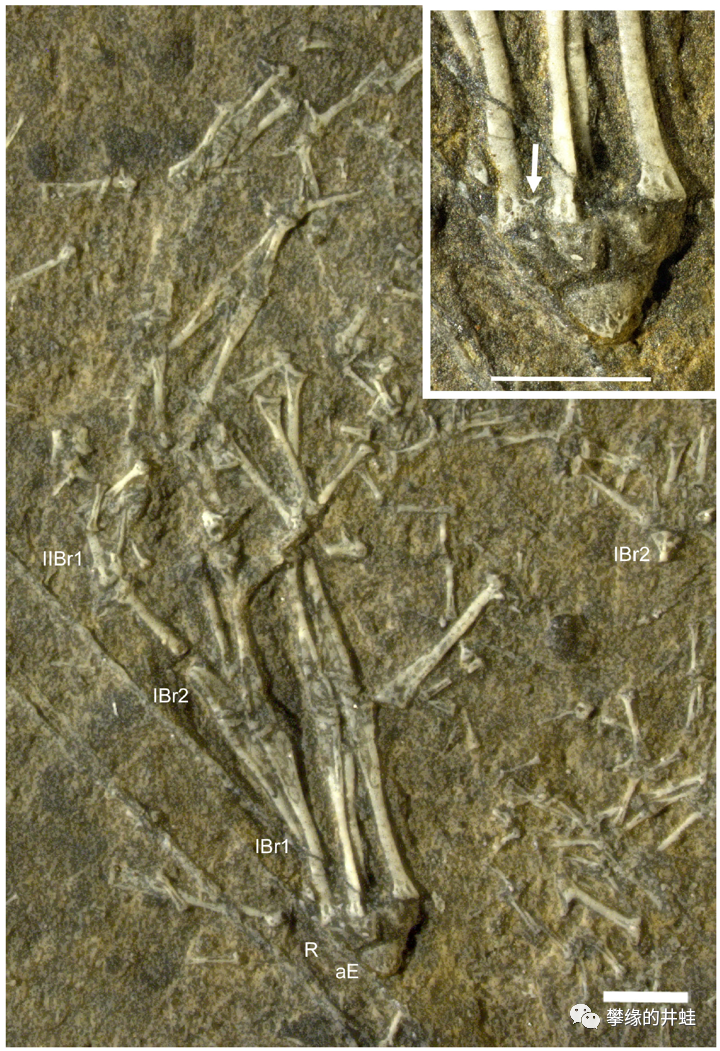
这堆像是骷髅爪子的东西是中华大骨海百合
Osteocrinus sinensis
的化石,发现于贵州关岭上三叠统小凹组。这类海百合完全没有柄,也没有蔓枝或者其他附着器官(右上的小图展示它的萼的后端光秃秃的)。图片来源自[14],标尺长度1毫米。
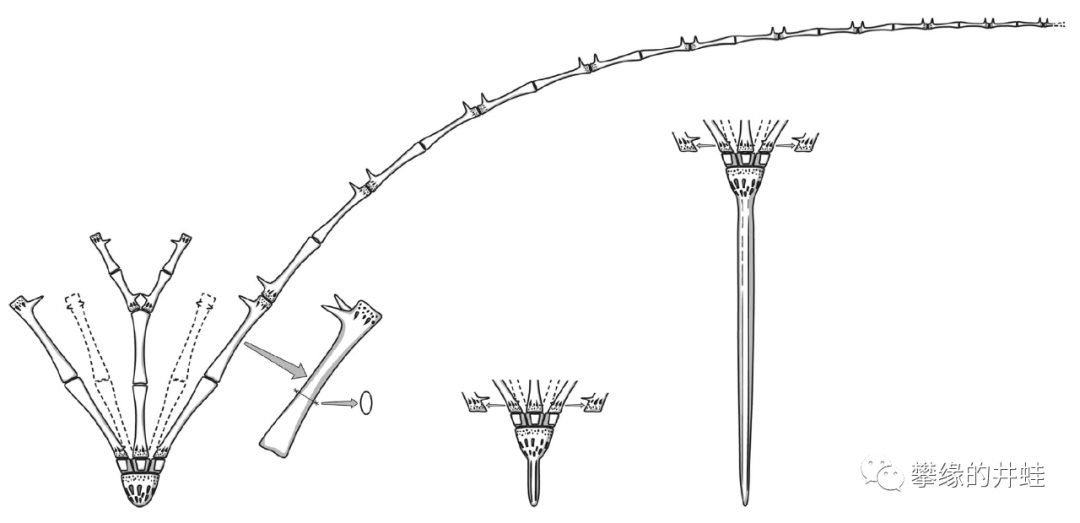
中华大骨海百合复原图。它们的身体具有很大的表面积,骨骼纤细中空,非常适合漂荡在海洋表层滤食浮游生物。有些大骨海百合萼的后端会长出一根尖刺,也许是保护自己不被吃掉(其实我觉得没有什么鱼会喜欢这样的食物);或者是像鱼漂一样,帮助平衡身体吧。图片来源自[14]。
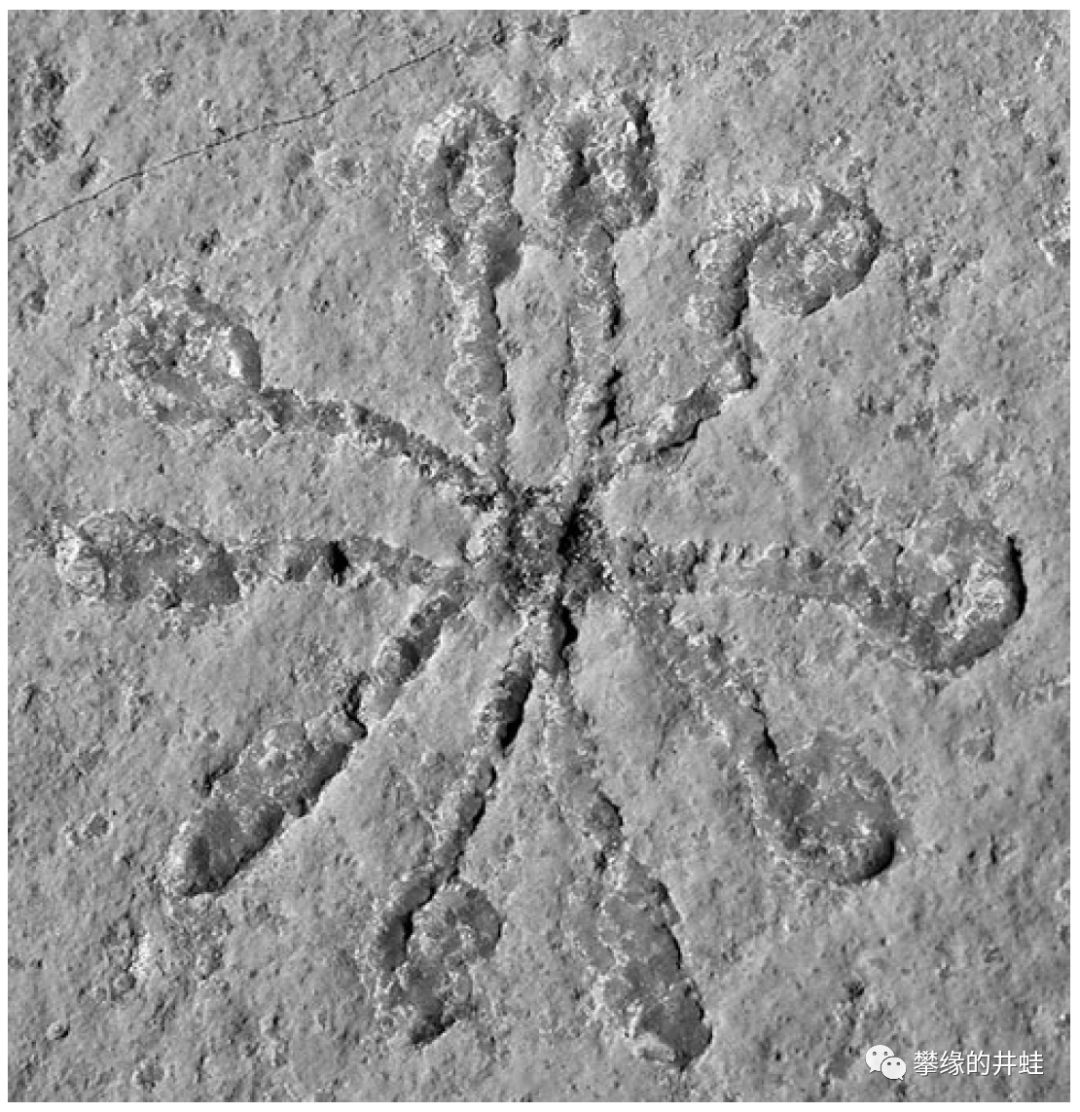
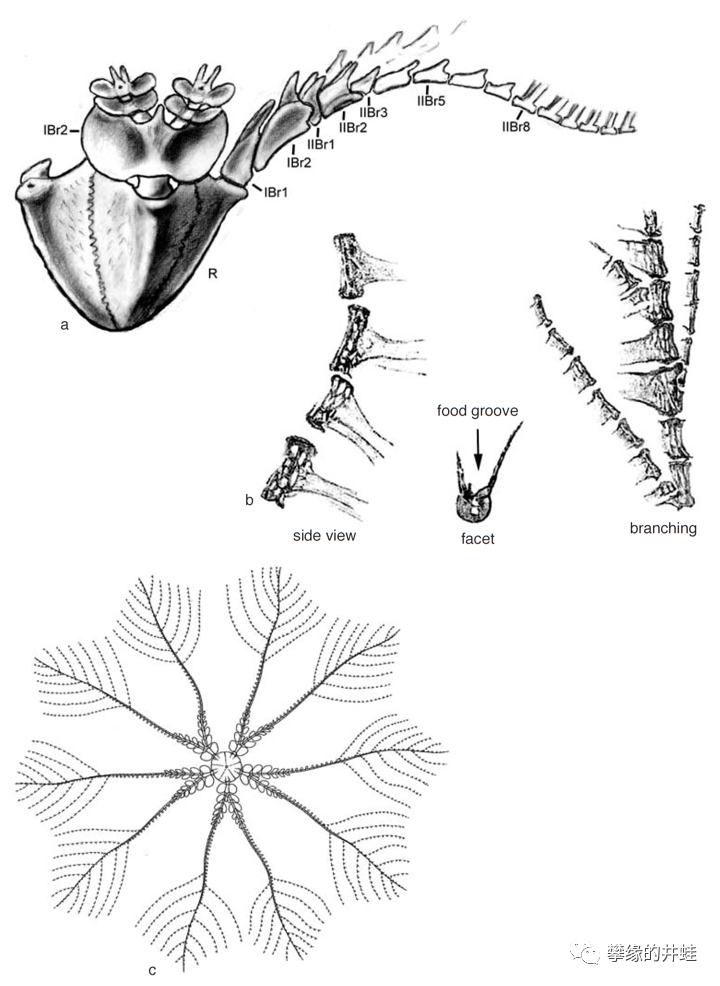
德国索伦霍芬(Solnhofen)发现的晚侏罗世提塘期(Tithonian)海百合
Saccocoma tenella
化石(来源自[15])和复原图(来源自[8])。
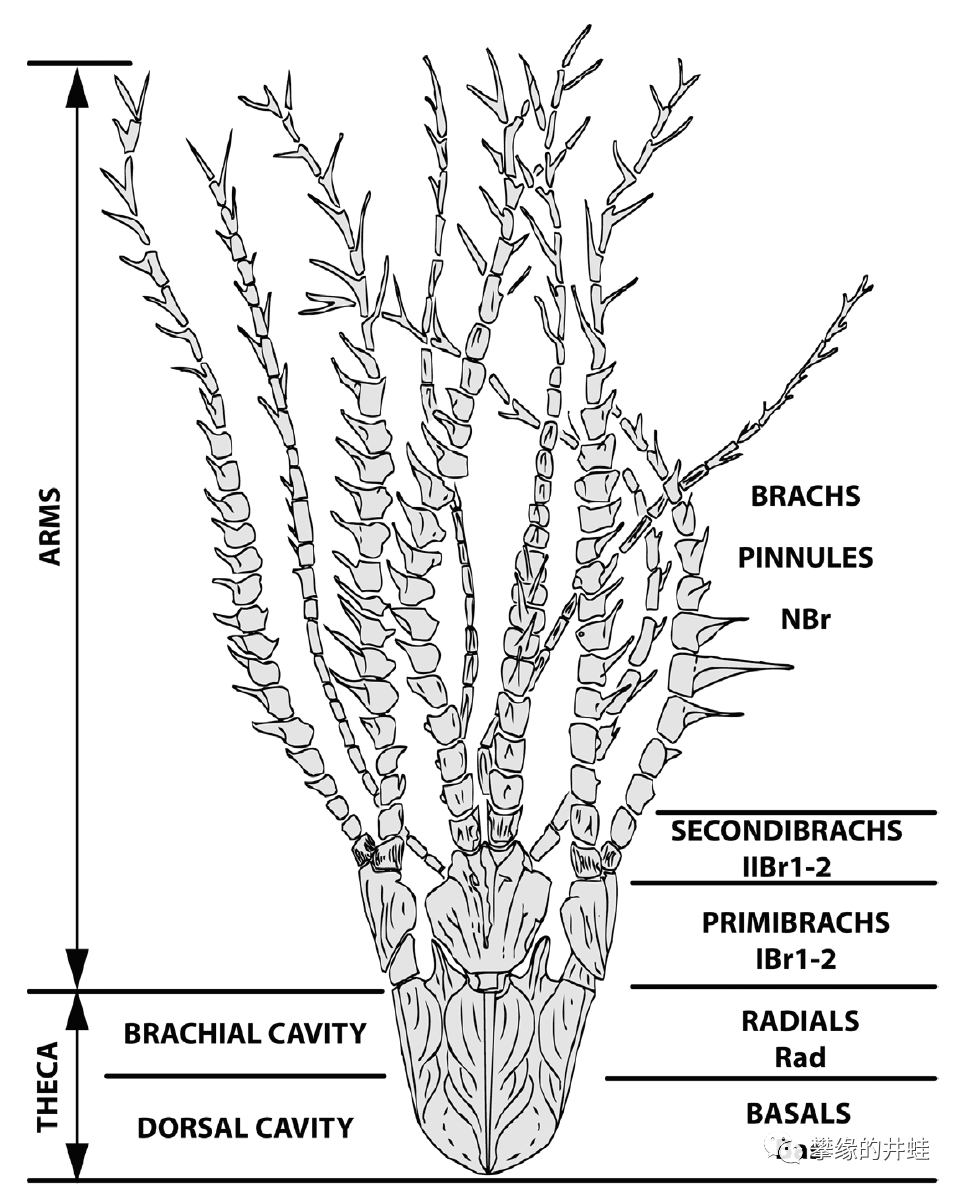
墨西哥发现的白垩纪漂泊海百合
Roveacrinus geinitzi
复原图。以上三种“无柄”海百合都属于漂泊海百合类(Roveacrinids)。这类海百合营远洋浮游生活,生存时间从三叠纪一直到白垩纪。图片来源自[16] 。
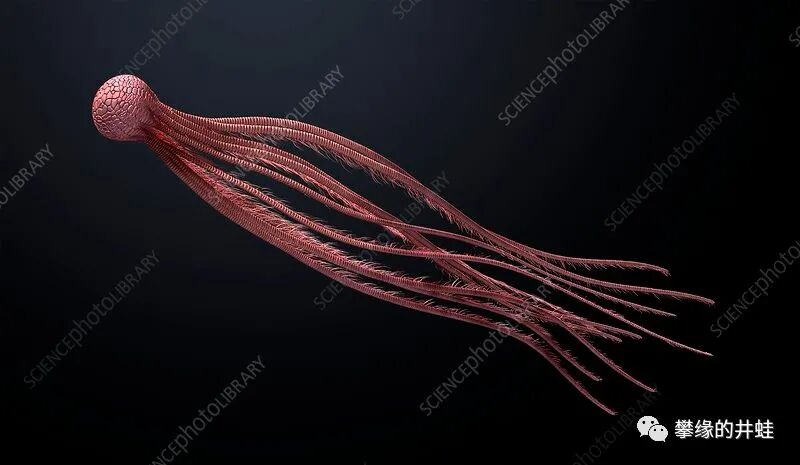
白垩纪晚期还有一类演化出“无柄”结构和浮游生活的海百合:
Uintacrinussocialis
,化石在堪萨斯州斯莫基山(Smoky Hill Chalk)发现。这个造型,是准备去抢水母的生态位了吗?图片来源见水印。
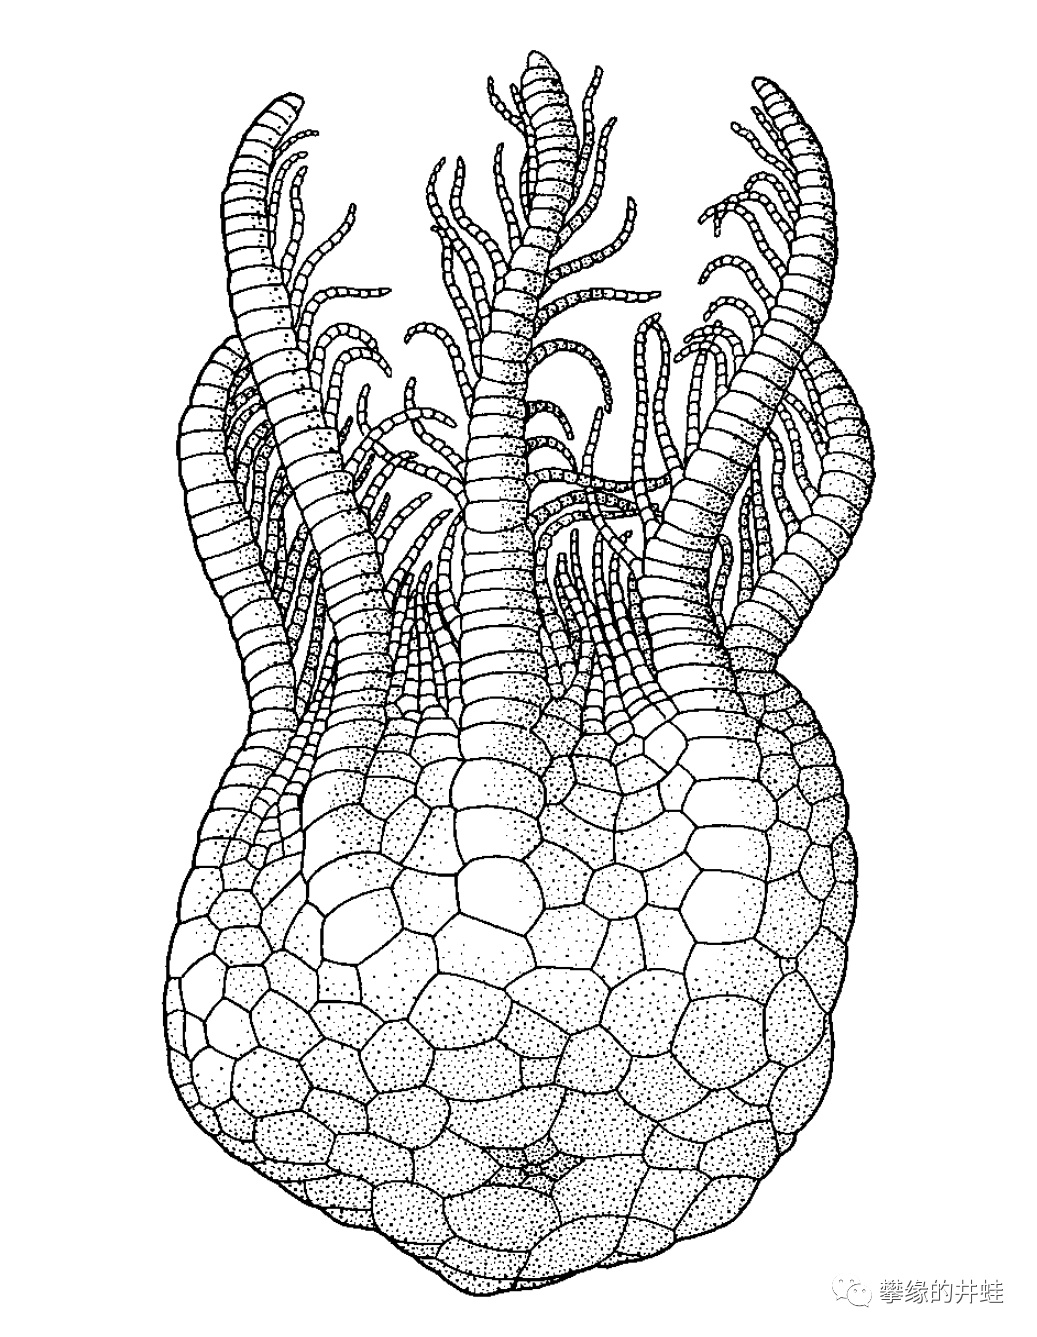
Uintacrinus socialis
萼部骨片结构。图片来源自[7]。
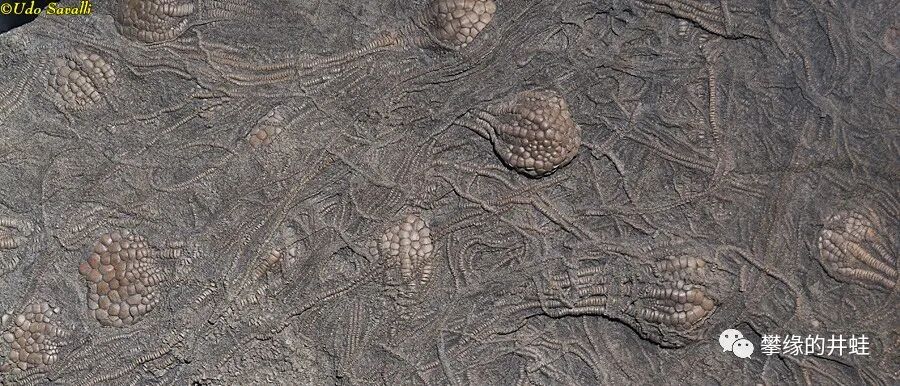
成群
Uintacrinus socialis
形成的化石墙。图片来源见水印。
最繁盛的“无柄”海百合被称为“海羊齿”,或者“羽星(feather star)”。不过和中生代的浮游海百合不同,现代海羊齿主要还是营底栖生活,它们保留了发达的蔓枝,用来固定身体或者在海床上爬行。
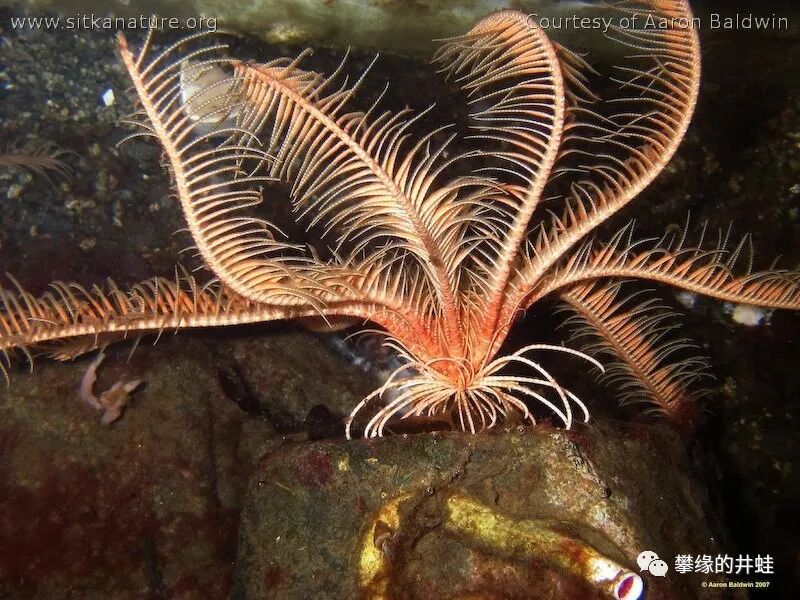
一种现代海羊齿
Florometra serratissima
。海羊齿很像“压扁”了的海百合,上方生长着茂密的羽腕,下方则有许多蔓枝,含有重要脏器的萼部被严密地包裹在中间,小得几乎看不见。这样的结构既不怕被波浪打翻,又可以自由移动到适宜生活的区域,更让试图攻击它的动物只能啃到一嘴的骨头渣子。图片来源见水印。
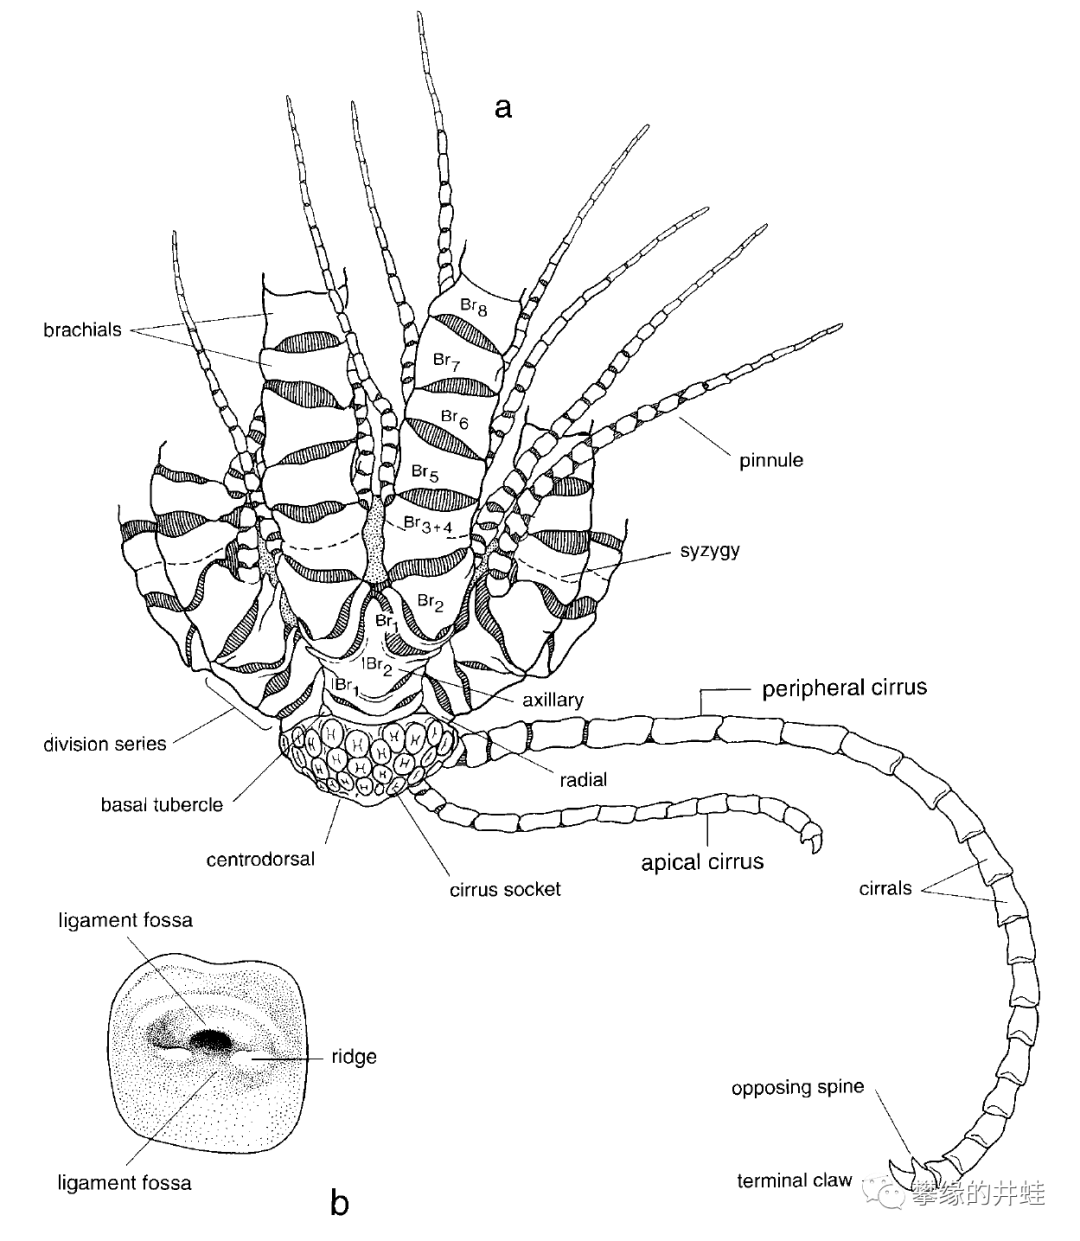
海羊齿的身体结构简图。图片来源自[7]。
蔓枝相当于海羊齿的“脚脚”,可以缓慢爬行。此外,海羊齿还会扇动羽腕来游泳。欣赏一下各种海羊齿的飘逸泳姿吧:
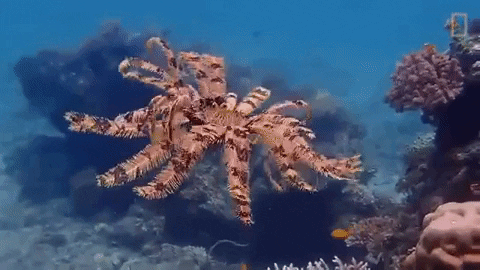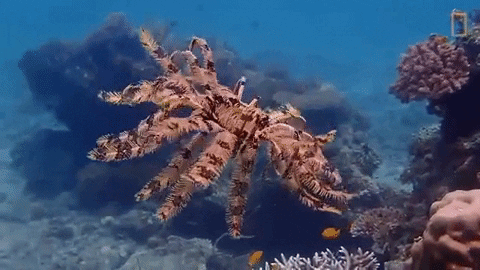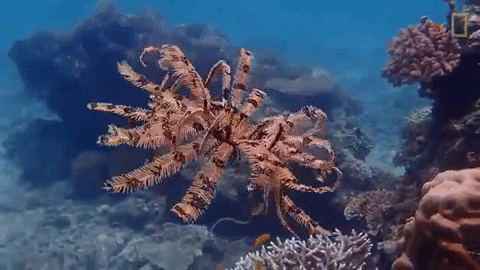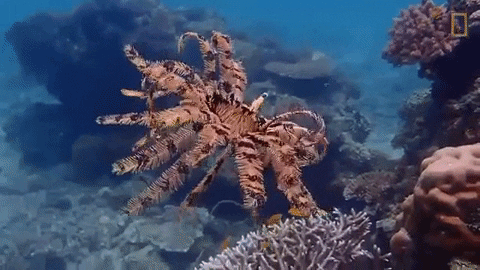
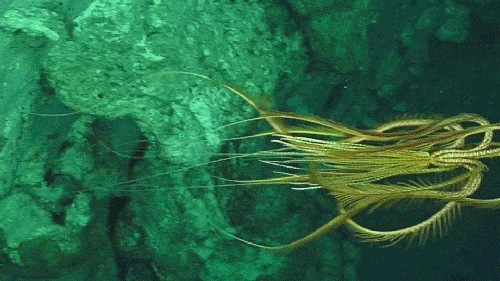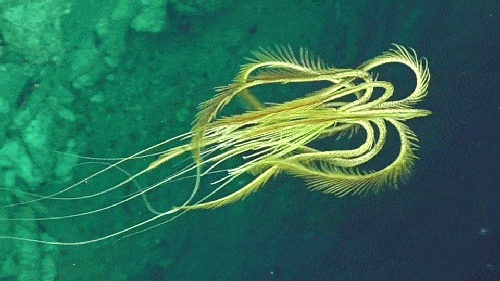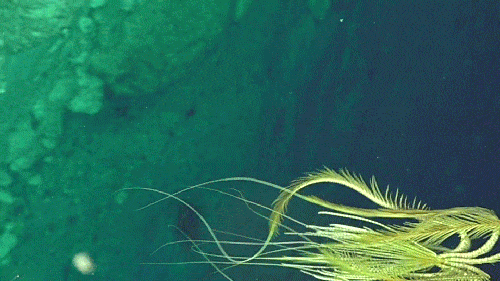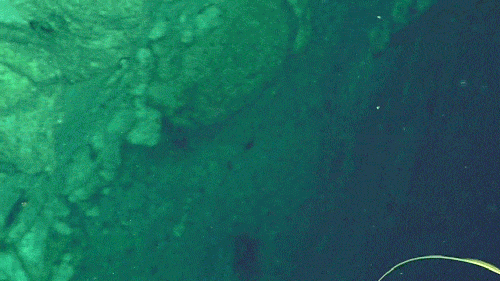
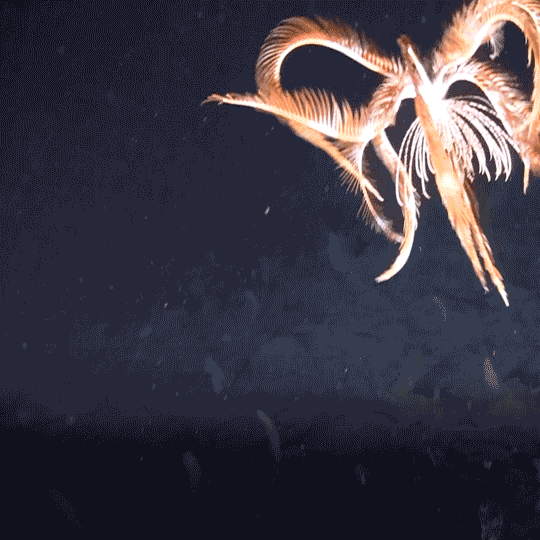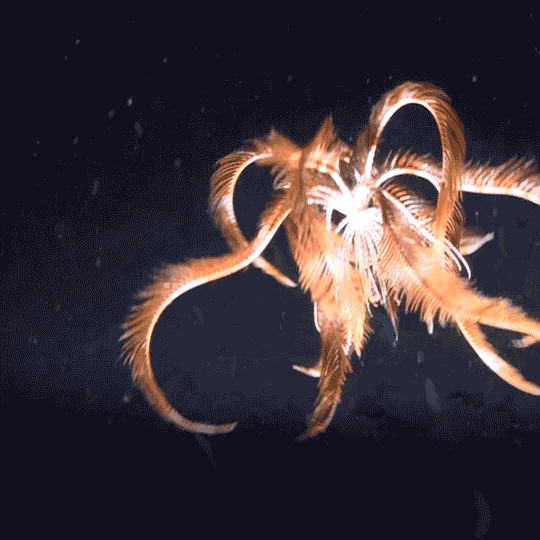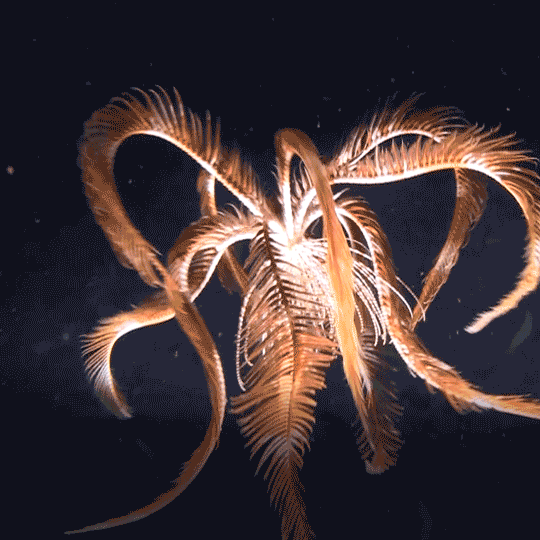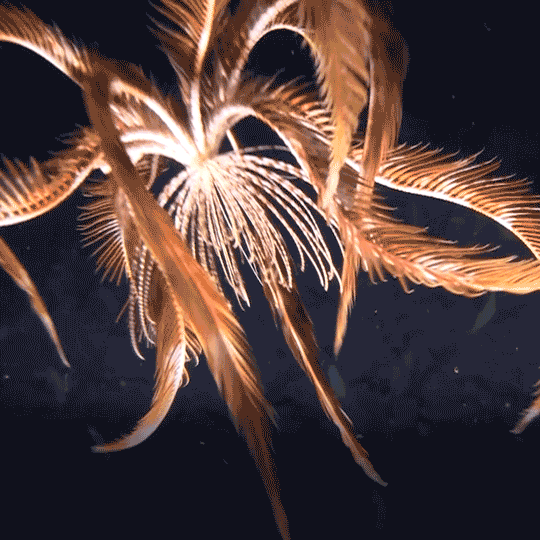
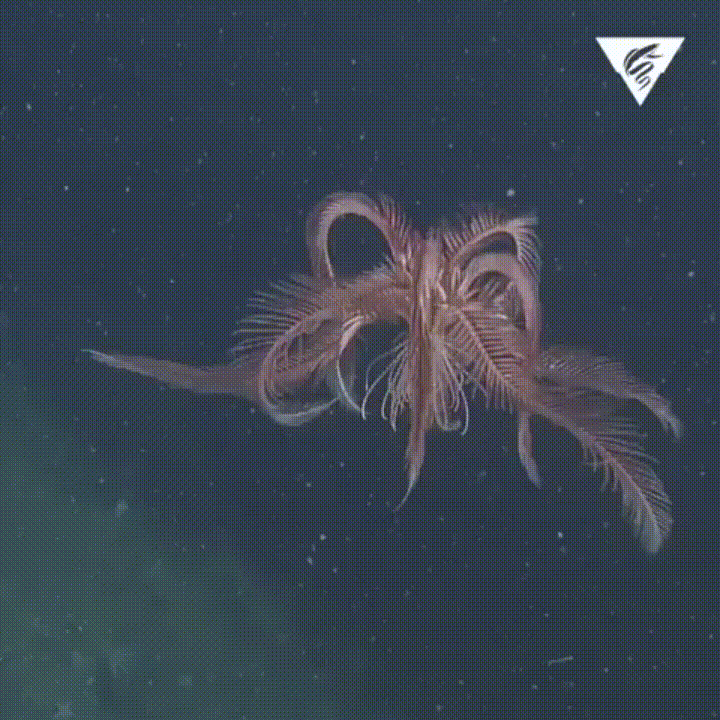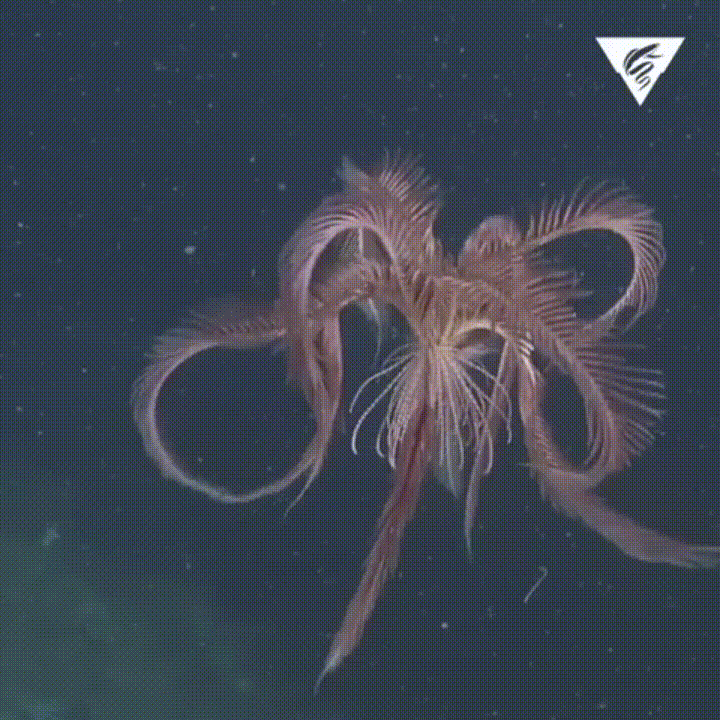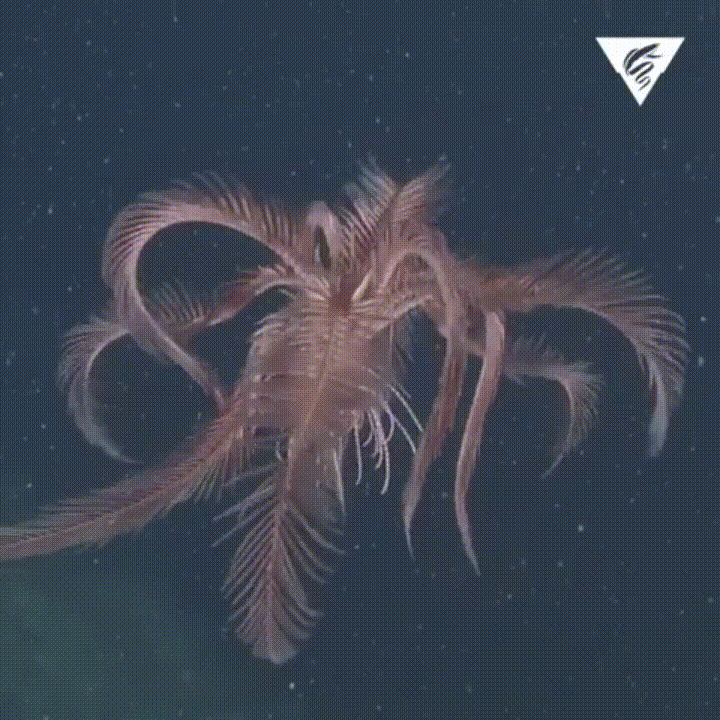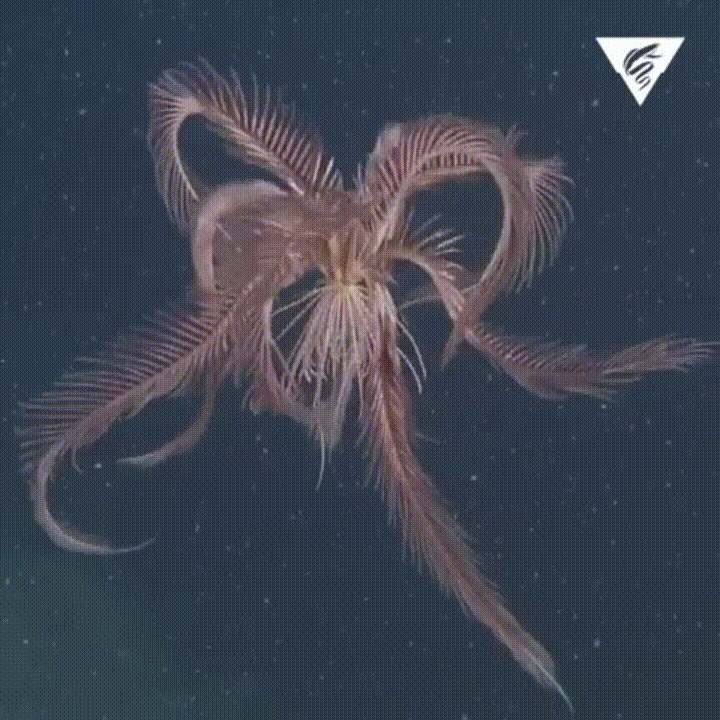
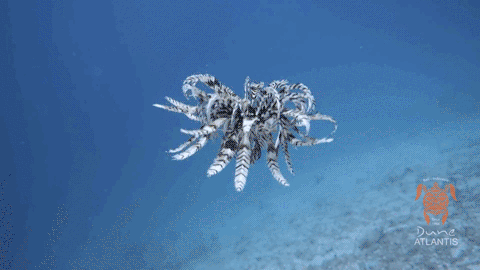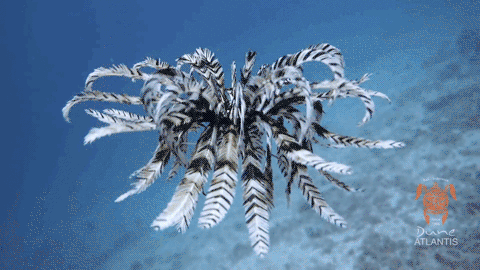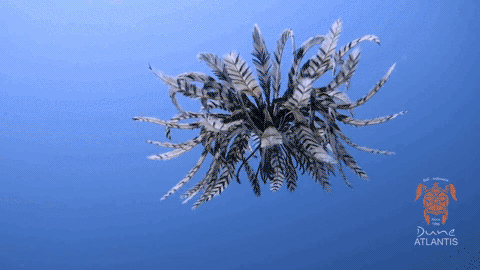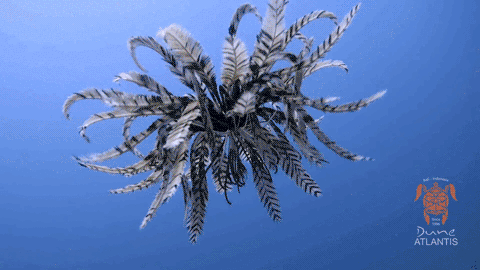
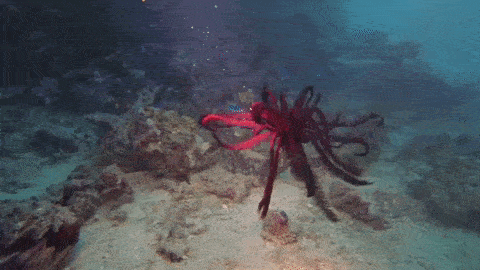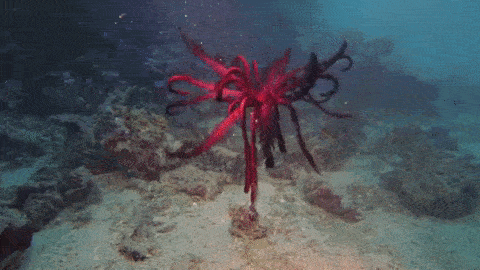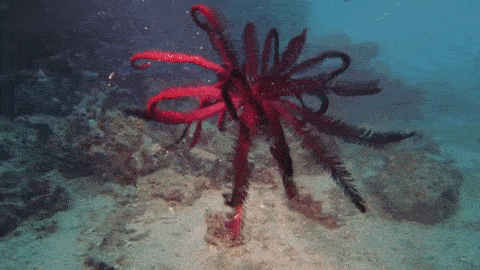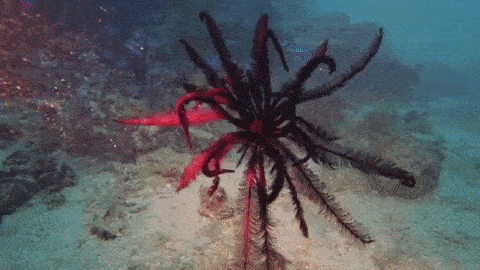
图片来源见水印。
海羊齿的发育过程完美地展示了它们是怎样抛弃柄和固着器的。
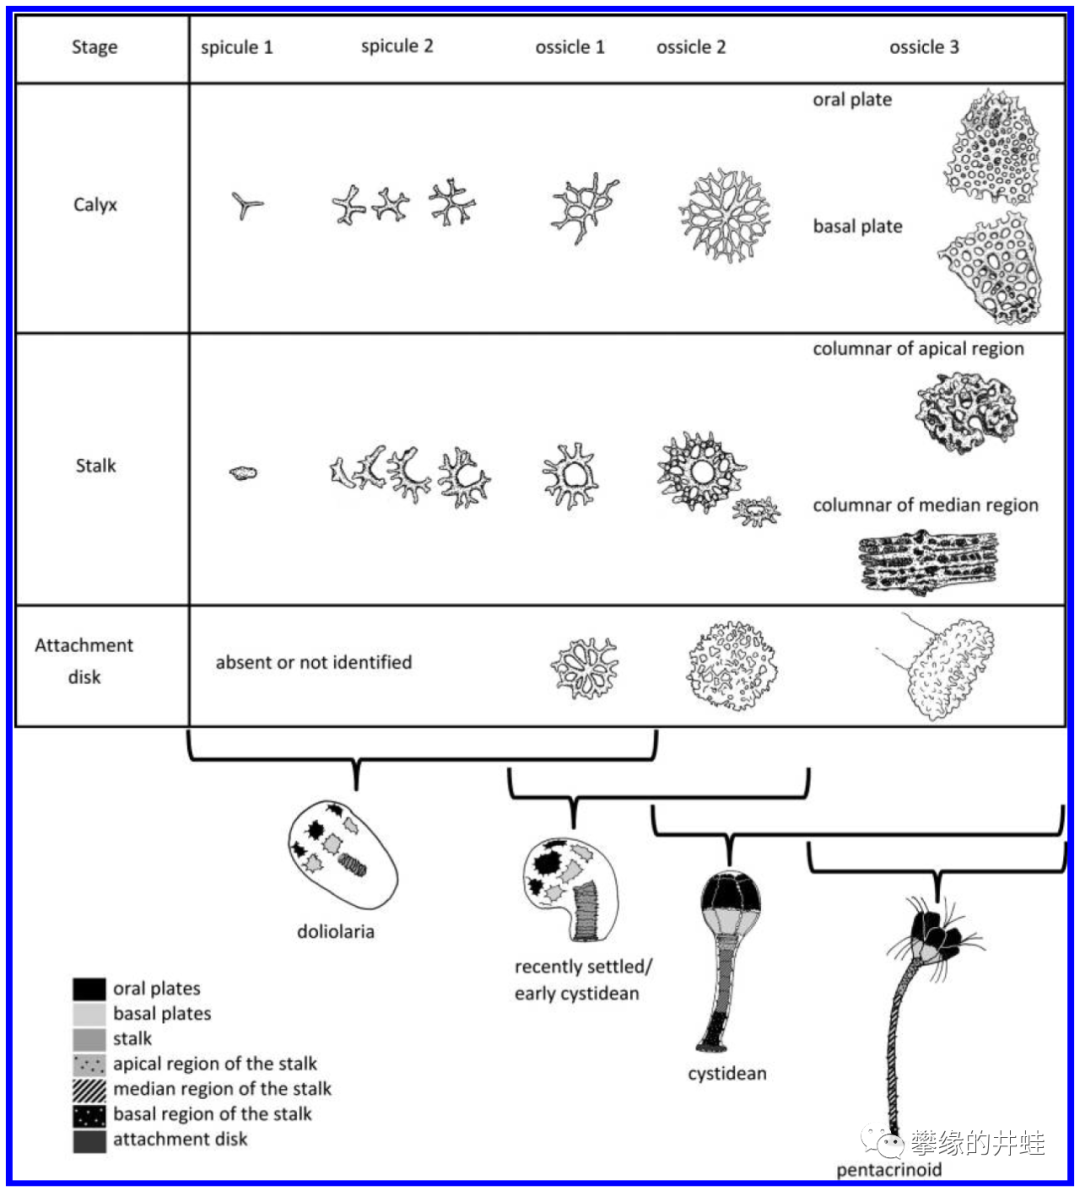
上面提到的海羊齿
Florometra serratissima
的早期幼体发育。受精卵孵化后,发育成海百合类特有的樽形幼虫(doliolaria)。然后萼部和柄的骨片发育,这个阶段叫做“囊形幼虫(cystidean)”。囊形幼虫会长出固着器,它们沉降到海底,固定身体,发育成长柄幼虫(pentacrinoid);这个时候的海羊齿幼体看起来就像一棵小小的海百合。图片来源自[17]。
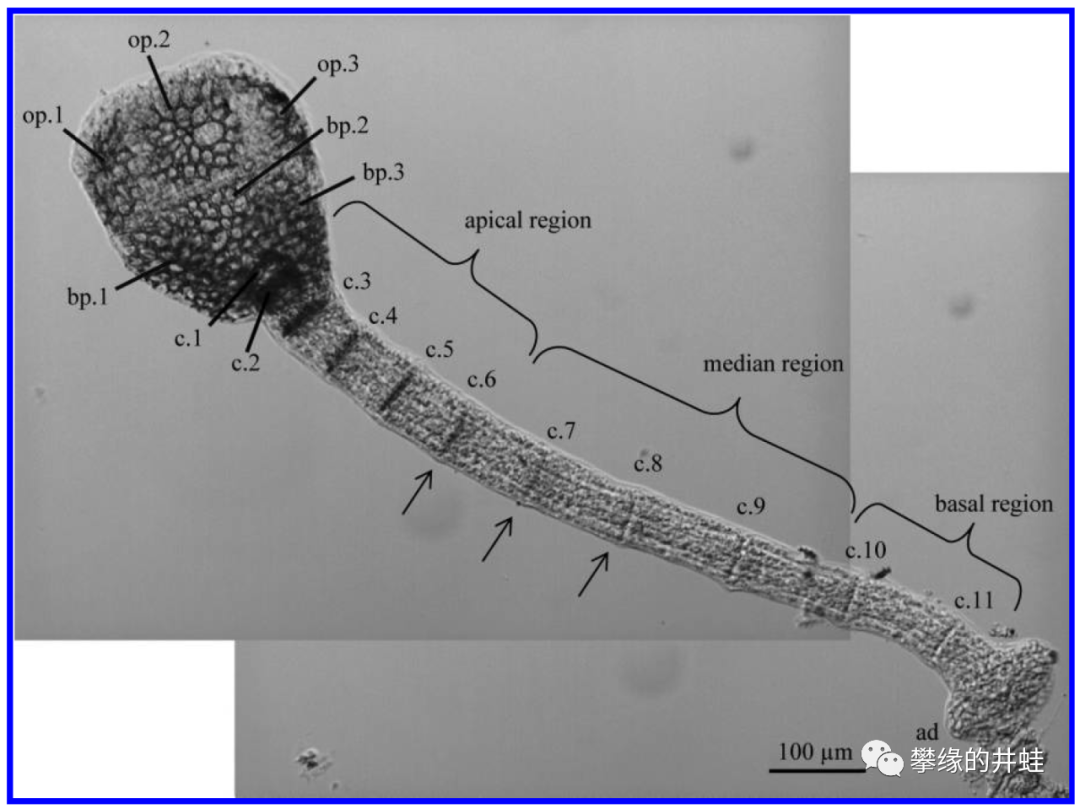
孵化43天的
Florometra serratissima
囊形幼虫。可以清晰地看到发育中的萼、柄和固着器。图片来源自[17]。
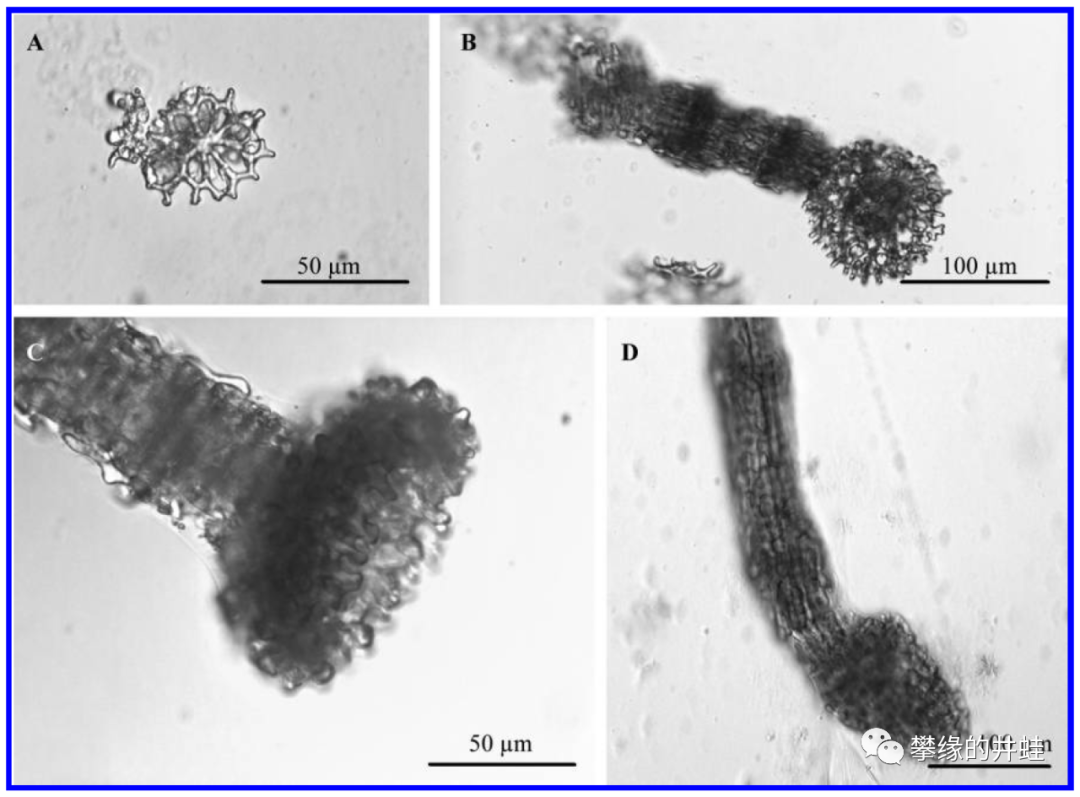
Florometra serratissima
幼体固着器的发育过程。A:8天的樽形幼虫;B:11天的囊形幼虫;C:15天的囊形幼虫;D:45天的长柄幼虫,已经附着在基质上。图片来源自[17]。
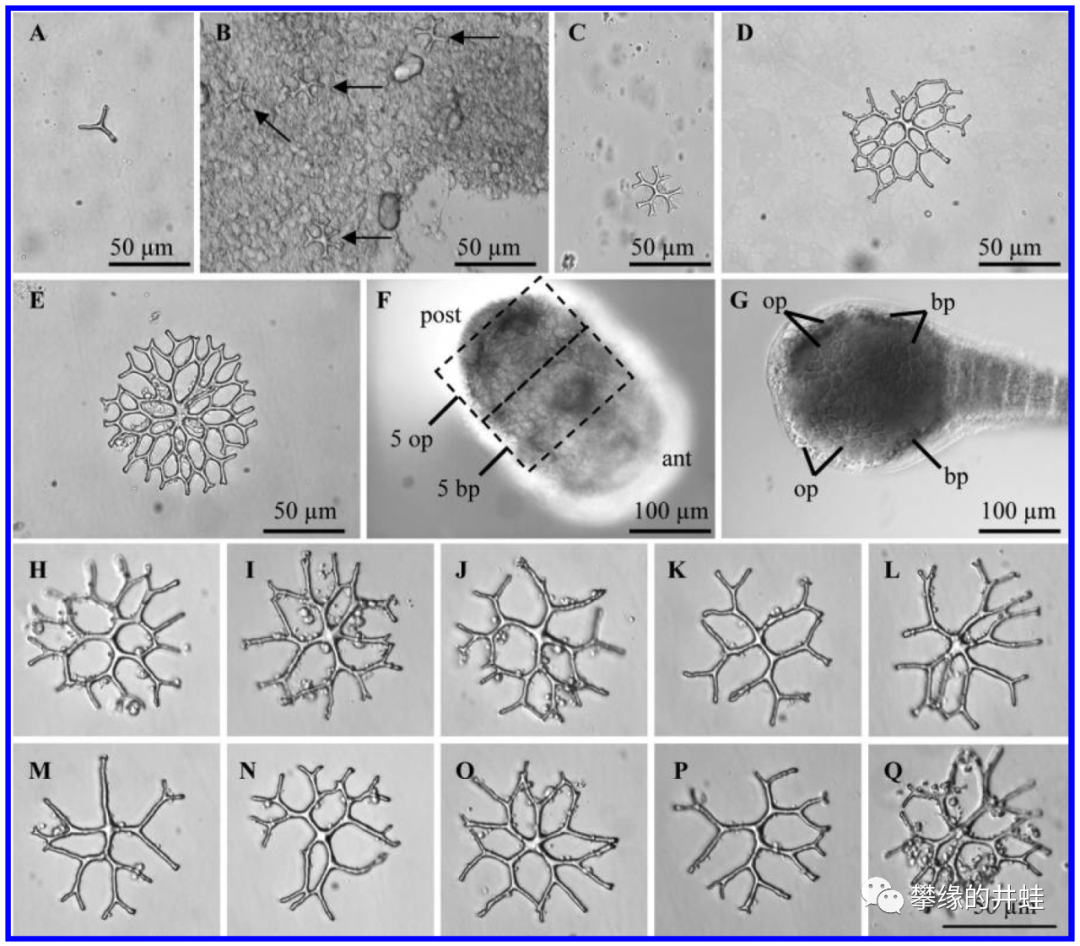
多说一句:这是海羊齿早期幼体骨板的形态和发育过程。有兴趣的朋友可以看看上回,和海参体内的小骨片(特别是杆状体)对比一下。很明显,海参的小骨片就是没有发育,保持幼体形态的骨板。差异巨大的两类棘皮动物(废话,棘皮动物就没有差异不大的),就这么联系在一起。图片来源自[17]。
长柄幼虫经过一段时间的发育,柄就会从萼部脱落。“海百合”就此转变成“海羊齿”,开始自己的游走生活。
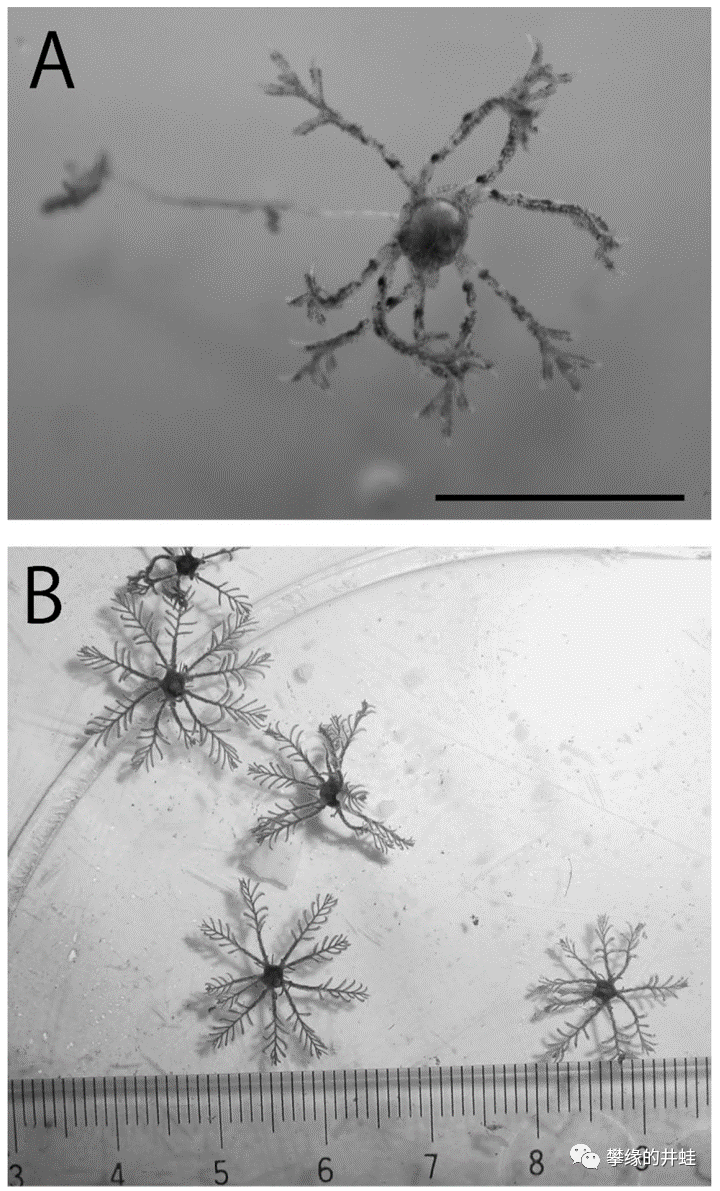
另一种海羊齿
Oxycomanthus japonicus
。A是还没有和柄分离的幼体;B是柄已经脱落,正式进入“游走阶段”的海羊齿。图片来源自[18],标尺长度0.5毫米。
海羊齿的发育过程,很像一些刺胞动物的水螅型和水母型世代的交替。中生代的其他无柄海百合,很可能也经历了类似的发育过程。
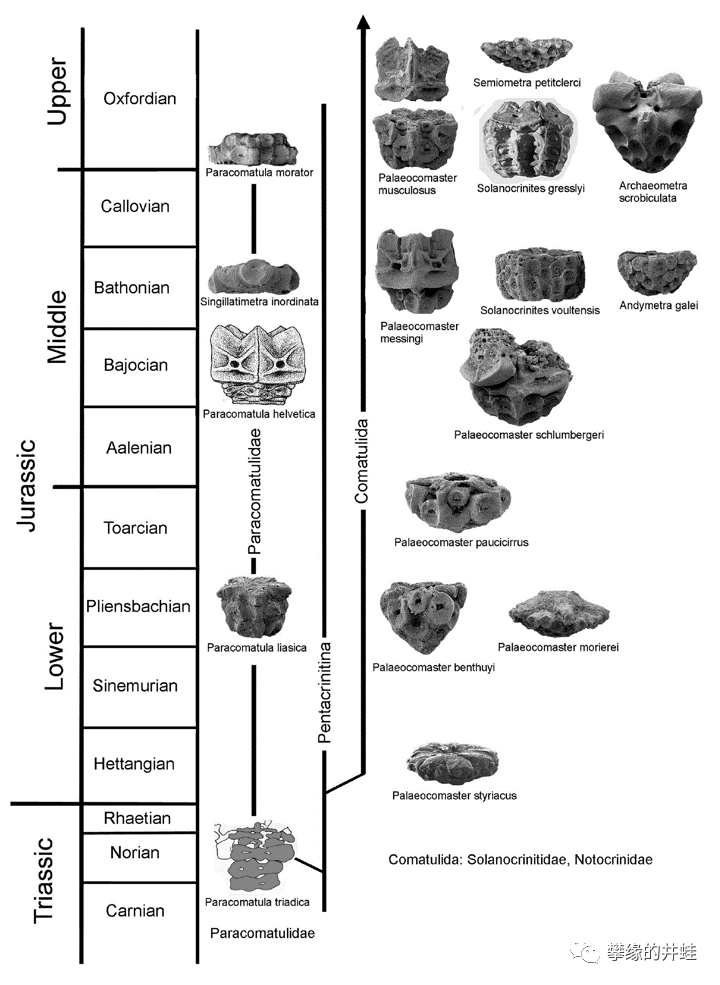
海羊齿目(也称栉羽星目,Comatulida)在三叠纪晚期出现,进入侏罗纪后发展迅速。直到今天,仍然有大约650种海羊齿活跃在海洋中。图片来源自[19]。
无柄的海羊齿大多分布在阳光明媚的浅海,它们也和珊瑚礁中的大多数动物一样,身上涂上了艳丽的色彩。骨瘦如柴的身形让大多数掠食者对它们不感兴趣;遇到不挑食的肉食性海胆,就扇动羽腕游走;一些海羊齿还会在体内积累令鱼类厌恶的化学物质[2]。几重保险之下,海羊齿成为现代海百合纲中最成功的类群,占了全部种类的大约90%。
而具柄的现代海百合大多退到幽暗的深海,颜色也变得暗淡。值得一提的是,分子生物学的证据显示,一些现代海百合其实是起源于海羊齿[20]。也就是说,一些海羊齿又重新长出了柄。一般来说,退化了的器官不会重新出现。棘皮动物真的是可以轻易打破演化规律的神奇类群。就海百合纲来说,看来5亿年的漫长岁月并没有榨干它们的演化潜力。谁又知道,在遥远的未来,它们会给地球带来什么样的奇观呢。
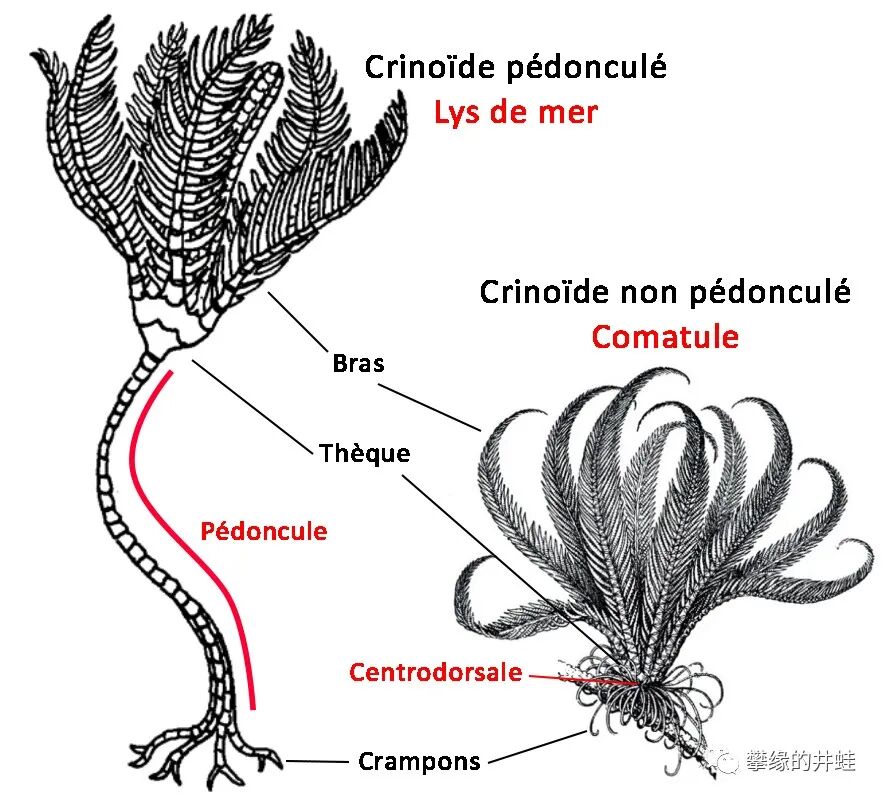
狭义的海百合(具柄)和海羊齿(无柄)身体结构对比。图片来源自网络。
地球名片
生物分类:动物界-棘皮动物门-海百合纲
存在时间:奥陶纪早期 至 现代
现存种类:约700种
化石种类:超过6000种
生活环境:海洋
代表特征:外形类似植物,由根、柄(茎)、萼(冠)三部分组成。海羊齿类成体无柄(茎)
代表类群:古生代的幼枝海百合亚纲,可曲海百合亚纲,圆顶海百合亚纲,不等海百合亚纲;后古生代的关节海百合亚纲
参考文献:
[1] Tomasz K. Baumiller, Crinoid EcologicalMorphology. Annual Review of Earth and Planetary Sciences, 2008, DOI:10.1146/annurev.earth.36.031207.124116
[2] Alexander Kasumyan, Olga Isaeva, PolinaDgebuadze, et al., Comatulids (Crinoidea, Comatulida) chemically defend againstcoral fish by themselves, without assistance from their symbionts. ScientificReports, 10: 6150, 2020, doi: 10.1038/s41598-020-63140-2
[3] S. Zamora, A. B. Smith, Cambrianstalked echinoderms show unexpected plasticity of arm construction. Proc. R.Soc. B, 279, 293–298, 2012, doi: 10.1098/rspb.2011.0777
[4] Thomas E. Guensburg, JamesSprinkle, Rich Mooi, et al., Athenacrinus n. gen. and other early echinodermtaxa inform crinoid origin and arm evolution. Journal of Paleontology:1–23,2019, doi: 10.1017/jpa.2019.87
[5] http://www.fossilcrinoids.com/index.html
[6] BERTRAND LEFEBVRE, COLIN D. SUMRALL,RENE A. SHROAT-LEWIS, et al., Palaeobiogeography of Ordovician echinoderms.Harper, D. A. T. & Servais, T. (eds) 2013, Early Palaeozoic Biogeographyand Palaeogeography, Geological Society, London, Memoirs, 38, 173–198, doi: 10.1144/M38.14
[7] HANS HESS, WILLIAM I. AUSICH, CARLTONE. BRETT, et al., Fossil Crinoids. Palaios, 2003, DOI:10.1017/CBO9780511626159.003
[8] Hans Hess, Paleoecology of pelagiccrinoids. Treatise Online, no. 16, Part T, Revised, Volume 1, 2011, DOI:10.17161/to.v0i0.4086
[9] Hans Hagdorn, Triassic: the crucialperiod of post-Palaeozoic crinoid diversification. Swiss J Palaeontol, 130: 91–112, 2011, DOI: 10.1007/s13358-010-0009-9
[10] Forest J. Gahn, Tomasz K. Baumiller,Evolutionary History of Regeneration in Crinoids (Echinodermata). Integrativeand Comparative Biology, volume 50, number 4, pp. 514a–514m,doi:10.1093/icb/icq155
[11] Przemys
ł
aw Gorzelak, Mariusz A. Salamon, Krzysztof Brom, et al.,Experimental neoichnology of post‑autotomy armmovements of sea lilies and possible evidence of thrashing behaviour inTriassic holocrinids. Scientific Reports, 10: 15147, 2020, doi:10.1038/s41598-020-72116-1
[12] Zamora, S., Aurell, M., Veitch,M., Saulsbury, et al., Environmental distribution of post-Palaeozoic crinoidsfrom the Iberian and south-Pyrenean basins, NE Spain. Acta PalaeontologicaPolonica, 63 (4): 779–794, 2018
[13] Tomasz K. Baumiller, Mariusz A.Salamon, Przemys
ł
aw Gorzelak, et al.,Post-Paleozoic crinoid radiation in response to benthic predation preceded theMesozoic marine revolution. PNAS, vol. 107, no. 13, 5893–5896, 2010, doi:10.1073/pnas.0914199107
[14] Hans Hess, Walter Etter, Hans Hagdorn, et al., Roveacrinida(Crinoidea) from Late Triassic (early Carnian) black shales of Southwest China.Swiss J Palaeontol, DOI: 10.1007/s13358-016-0116-3
[15] Hans Hess, Walter Etter, Life anddeath of Saccocoma tenella (GOLDFUSS). Swiss J Geosci, DOI: 10.1007/s00015-011-0059-z
[16] Bruno Ferré, Bruno Granier, Przemysław Gorzelak, et al., CretaceousRoveacrinids from Mexico revisited: Overcoming the taxonomic misidentificationsand subsequent biostratigraphic abuse. Boletín de la Sociedad Geológica Mexicana, VOL.70, NO. 2, 499 ‒ 530, 2018, doi: 10.18268/BSGM2018v70n2a12
[17] Ariane Comeau, Cory D. Bishop,Christopher B. Cameron, Ossicle development of the crinoid Florometra serratissima through larval stages. Can. J. Zool.,95: 183–192, 2017, doi: org/10.1139/cjz-2016-0195
[18] Tomoko F. Shibata, Atsuko Sato,Tatsuo Oji, et al., Development and Growth of the Feather Star Oxycomanthus japonicusto Sexual Maturity. ZOOLOGICAL SCIENCE, 25: 1075–1083, 2008, doi: 10.2108/zsj.25.1075
[19] Hans Hess, Origin and radiation of thecomatulids (Crinoidea) in the Jurassic. Swiss J Palaeontol, 133: 23–34, 2014, DOI:10.1007/s13358-013-0061-3
[20] Michel ROUX, Marc ELEAUME,Lenaïg G. HEMERY, et al., When morphology meets molecular data in crinoidphylogeny: a challenge. Cah. Biol. Mar., 54: 541-548, 2013
 攀缘的井蛙约 17 分钟