题句出自 元·许有壬,《南乡子·醉书月香亭佳几》
九龙颂系列的压轴大戏,理所当然地要献给蜥形纲中的真正王者——主龙类(Archosauria)。关于主龙类(Archosauria)、主龙形类(Archosauriformes)和主龙形态类(Archosauromorpha)的关系,可以参见第二百五十八回 九龙颂1:鼋鼍出没蛟鳄横。
主龙类延续到现代的两个分支:鳄目(Crocodilia)和鸟纲(Aves)都相当特化。从这两支后裔的巨大差异也足以说明主龙类曾经超高的物种多样性(Speciesdiversity)和形态分异度(Morphological Disparity)。
鳄类所在的演化支,一度被称为镶嵌踝类主龙(Crurotarsi),现在则改名为假鳄类主龙(Pseudosuchia)。所以:假鳄类和真鳄类是什么关系?——真鳄类(Eusuchia)属于假鳄类。
鸟类所在的,和镶嵌踝类并列的演化支,曾经被称为鸟颈类主龙(Ornithodira),后来逐渐扩充为现在的鸟跖类主龙(Avemetatarsalia)。
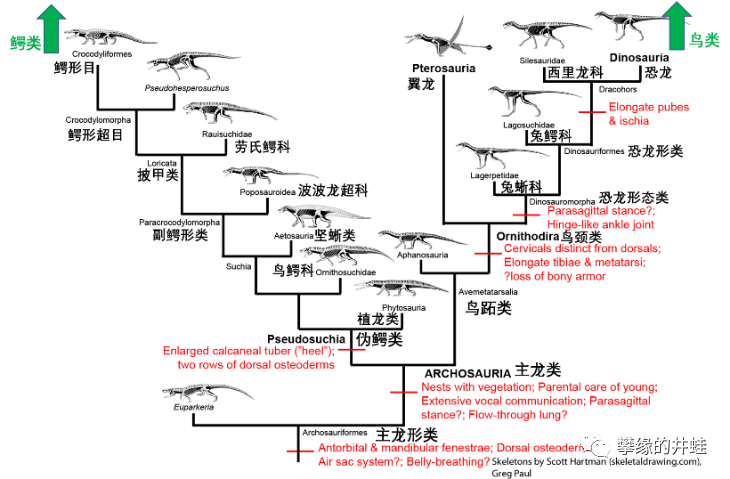
假鳄类和鸟跖类的主要演化支示意简图。鳄类和鸟类分别位于主龙类两大分支的末端。图片来源见水印。
假鳄类和鸟跖类主龙类在早三叠世出现。遗憾的是,现在仍然没有它们的共同祖先——最早的主龙类的化石。只能推测这个主龙类始祖的形态可能接近一类名叫“派克鳄
Euparkeria capensis
”的动物。
在上面的主龙类演化支示意图中,可以看靠近主龙类基干处有一个小小的分支,那就是派克鳄。普遍认为派克鳄是主龙形类中最接近主龙类的。
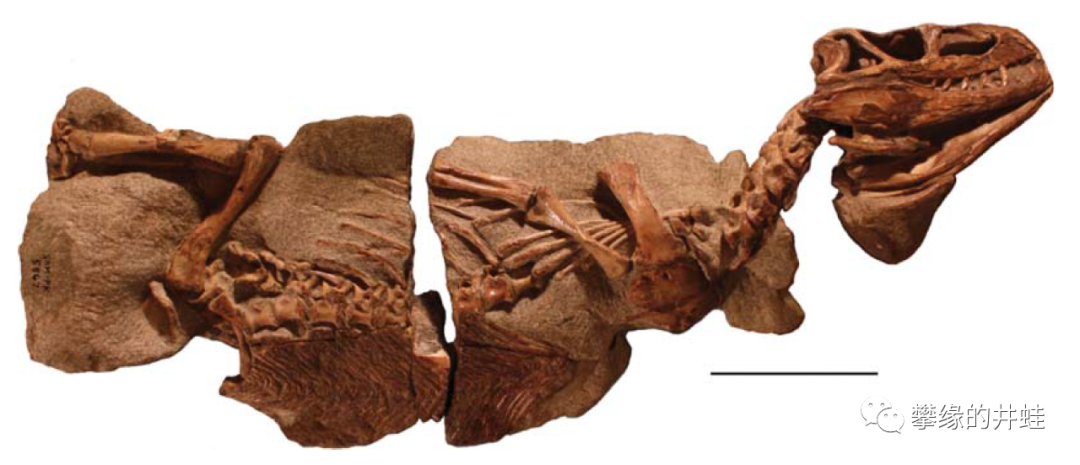
派克鳄的模式标本SAM-PK-5867。图片来源自[1],标尺长度5厘米。
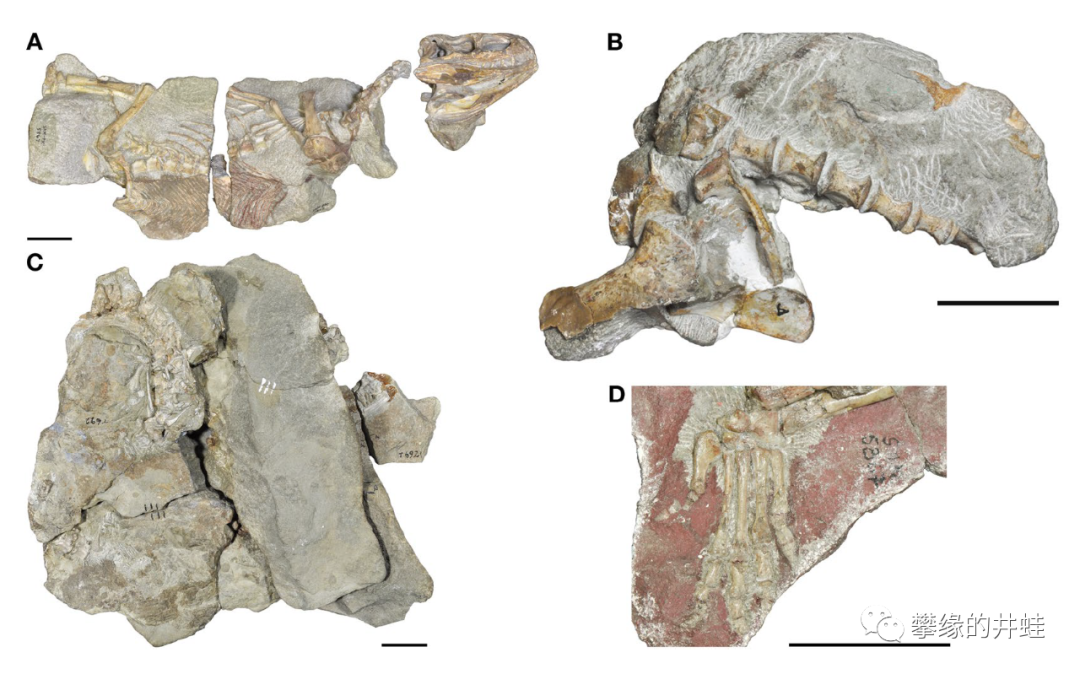
一些派克鳄的化石标本。A:模式标本SAMPK 5867;B:骨盆部位SAM PK 6047A;C:一段脊椎UMZC T.692;D:脚掌SAM PK K8309。对它的研究还是比较深入的。图片来源自[2],标尺长度3厘米。
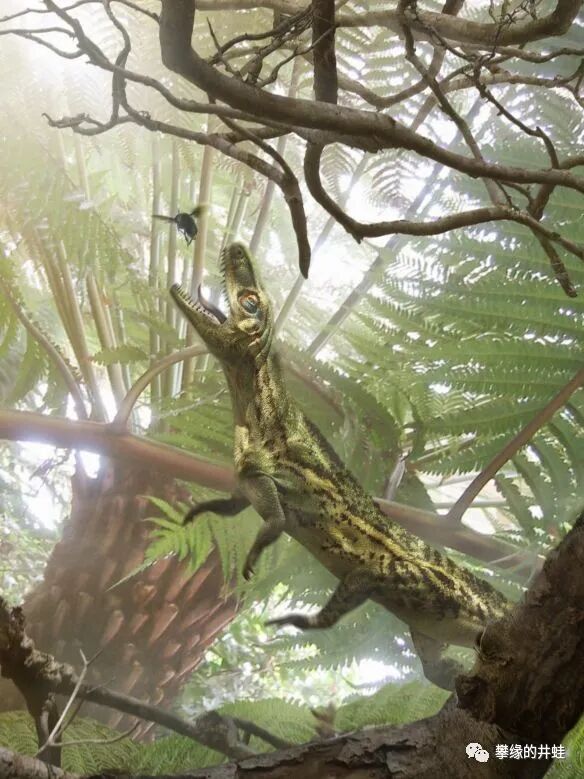
派克鳄在BBC的《Walking with Monsters》里也有出场。不过最后让它直接变身异特龙就有点离谱了。图片来源自网络。
研究者把派克鳄和一些被认为与派克鳄亲缘关系很近的主龙形类归入派克鳄科Euparkeriidae。根据[1],比较确定的派克鳄科成员还有:
欧斯莫斯卡鳄
Osmolskina czatkowicensis
,生活在早三叠世奥伦尼克期,化石产自波兰。
Dorosuchus neoetus
,中三叠世安尼期,化石产自俄罗斯。
择义王氏鳄
Wangisuchus tzeyii
,中三叠世安尼期,化石产自山西二马营组。
侨家梁哈拉寨鳄
Halazhaisuchus qiaoensis
,中三叠世安尼期,化石产自山西
二马营组。
一个曾经被命名为“沙圪堵吐鲁番鳄
Turfan
osuchus shageduensis
”的标本,中三叠世安尼期,化石产自内蒙古二马营组。
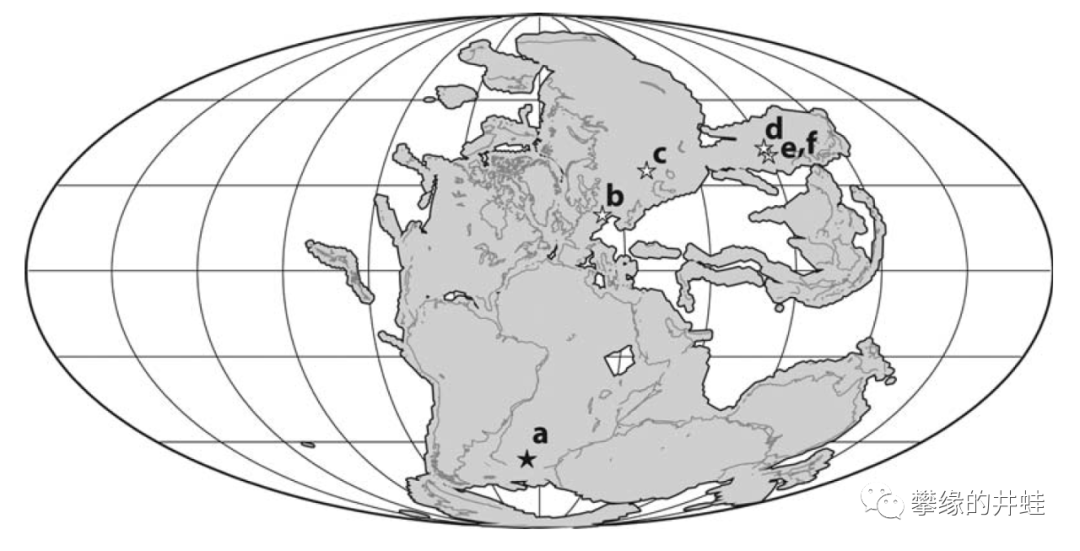
上述派克鳄科动物在三叠纪的地图上的分布。a:派克鳄;b:欧斯莫斯卡鳄;c:
Dorosochus neoetus
;d:“沙圪堵吐鲁番鳄”;e:择义王氏鳄;f:侨家梁哈拉寨鳄。图片来源自[1]。
当然这个分类仍有争议(在古生物领域,没有争议才不正常),“派克鳄科”也未必就是一个单系群,多少有点“分类垃圾筐”的感觉。比如
Dorosuchus neoetus
就可能比派克鳄更接近主龙类[3]。
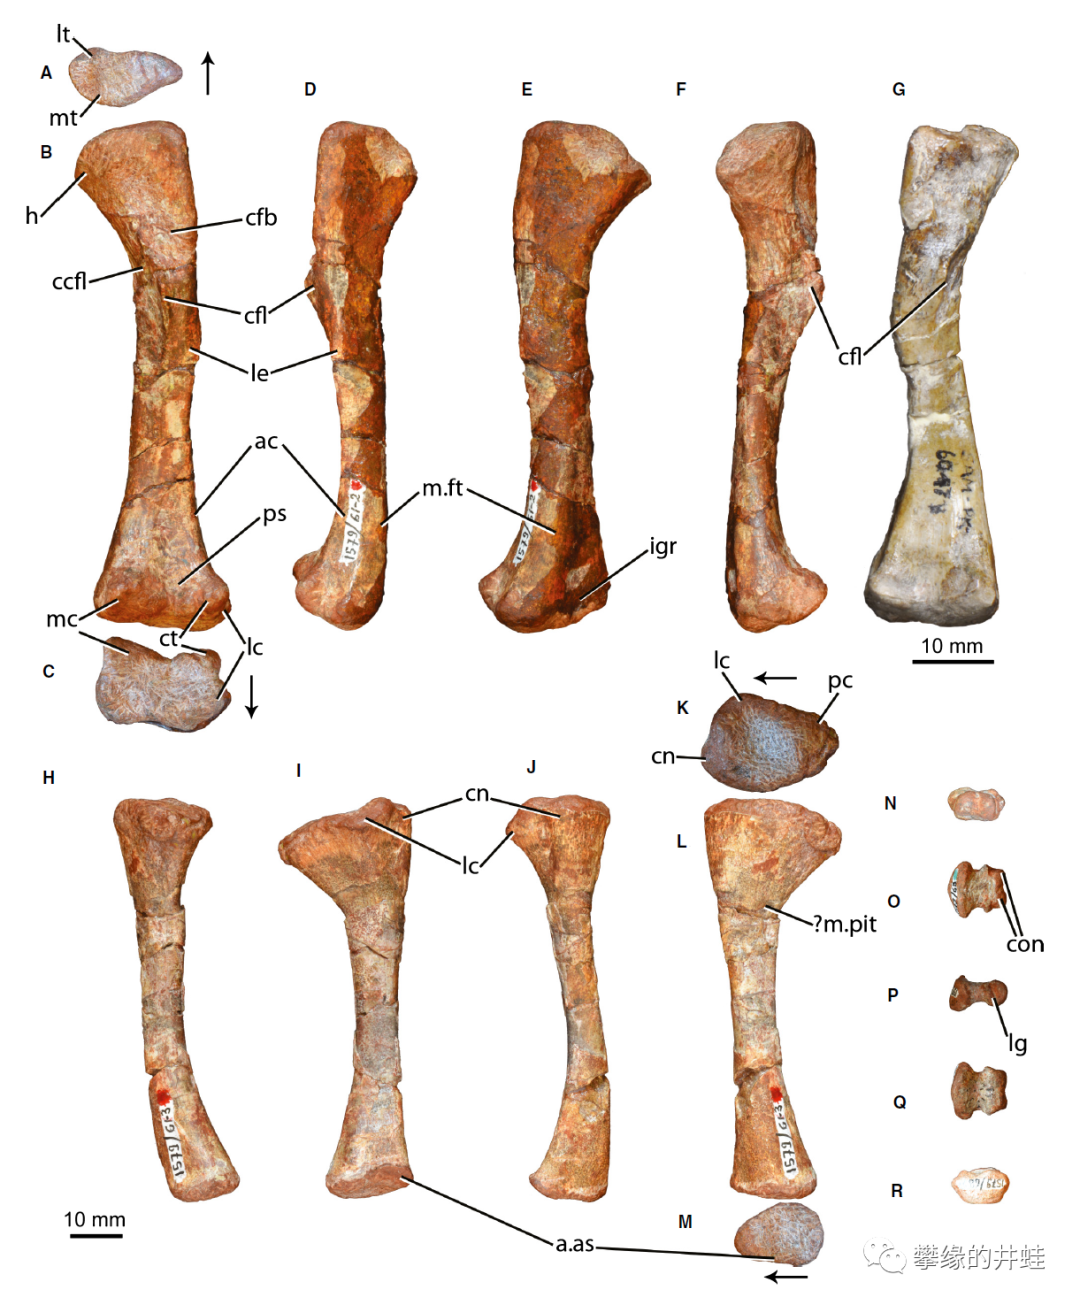
Dorosuchus neoetus
(A-F右股骨,H-M胫骨,N-R趾骨)和派克鳄(G左股骨)的部分后肢化石对比。图片来源自[3]。
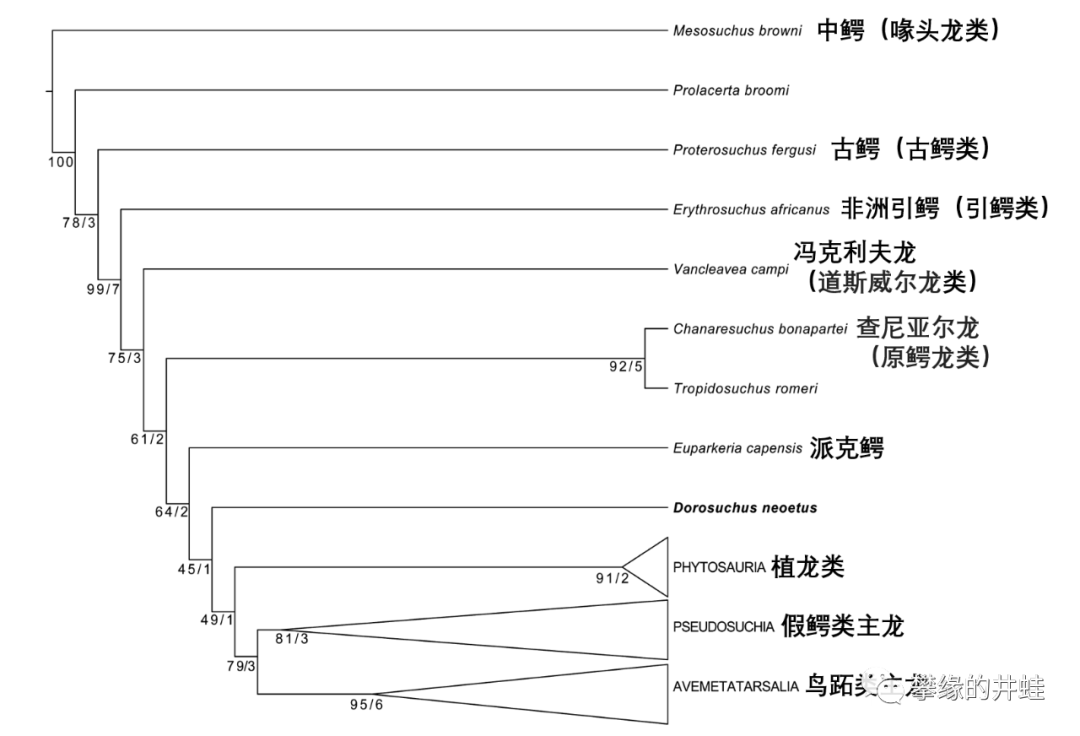
一种主龙形态类演化关系理论的示意图。里面出现的古鳄、引鳄、冯克利夫龙、原鳄龙类和植龙类可以参见之前【九龙颂】系列的介绍。图片来源自[3]。
总的来说,派克鳄科种类很少,除了派克鳄外,其他成员都不太出名,在网上简单搜索了一下它们的化石:
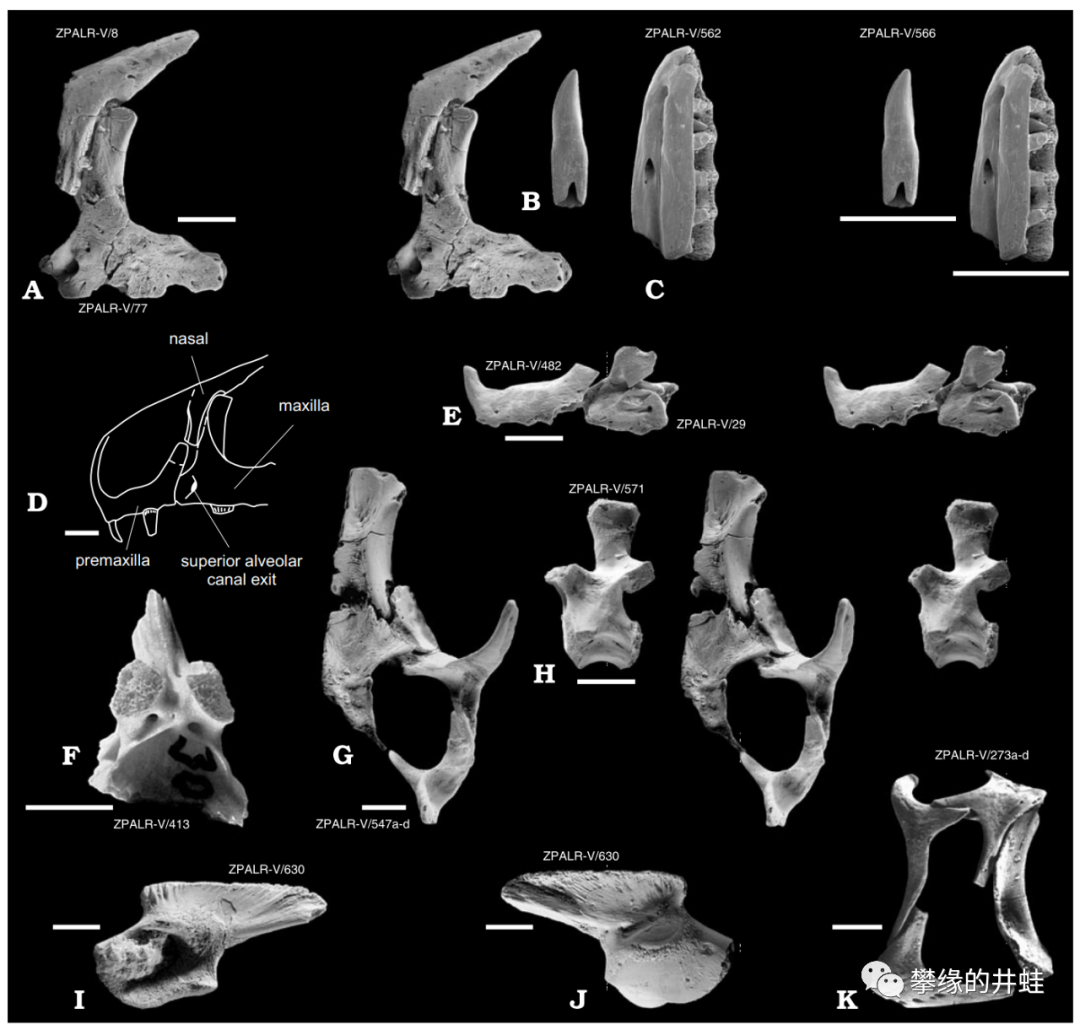
欧斯莫斯卡鳄模式标本。只有一些零碎的牙齿、头骨和一块颈椎,勉强拼凑出鼻子和半张嘴(D)。图片来源自[4],标尺长度5毫米。
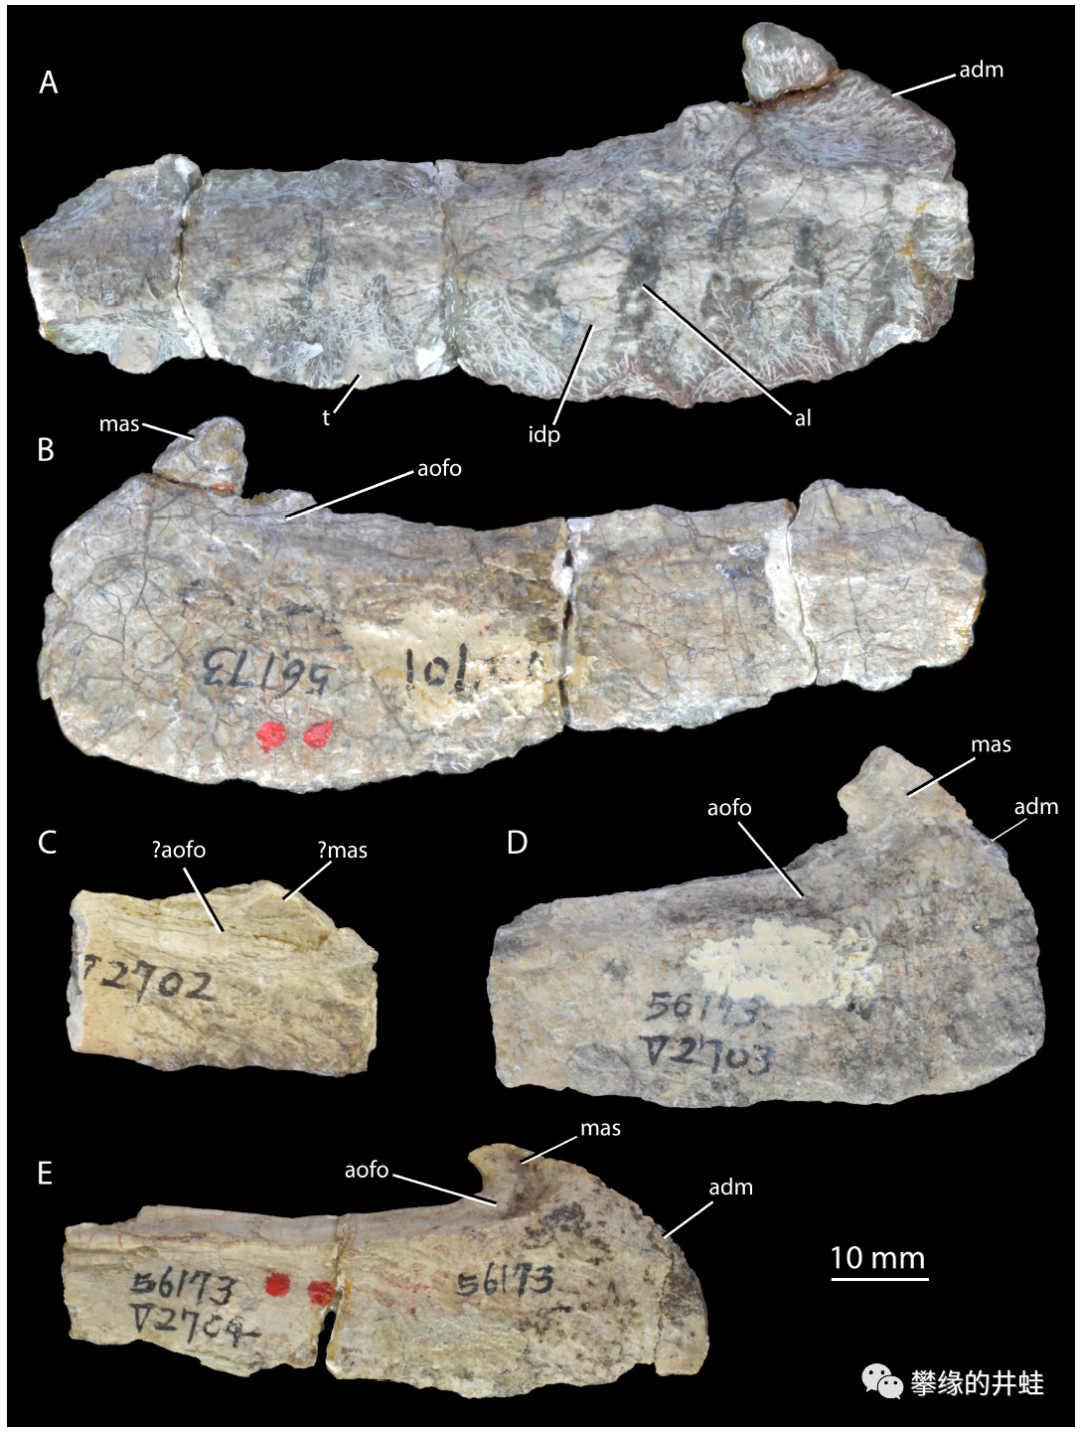
择义王氏鳄的正模和副模化石,只有残破的颌骨。图片来源自[5]。
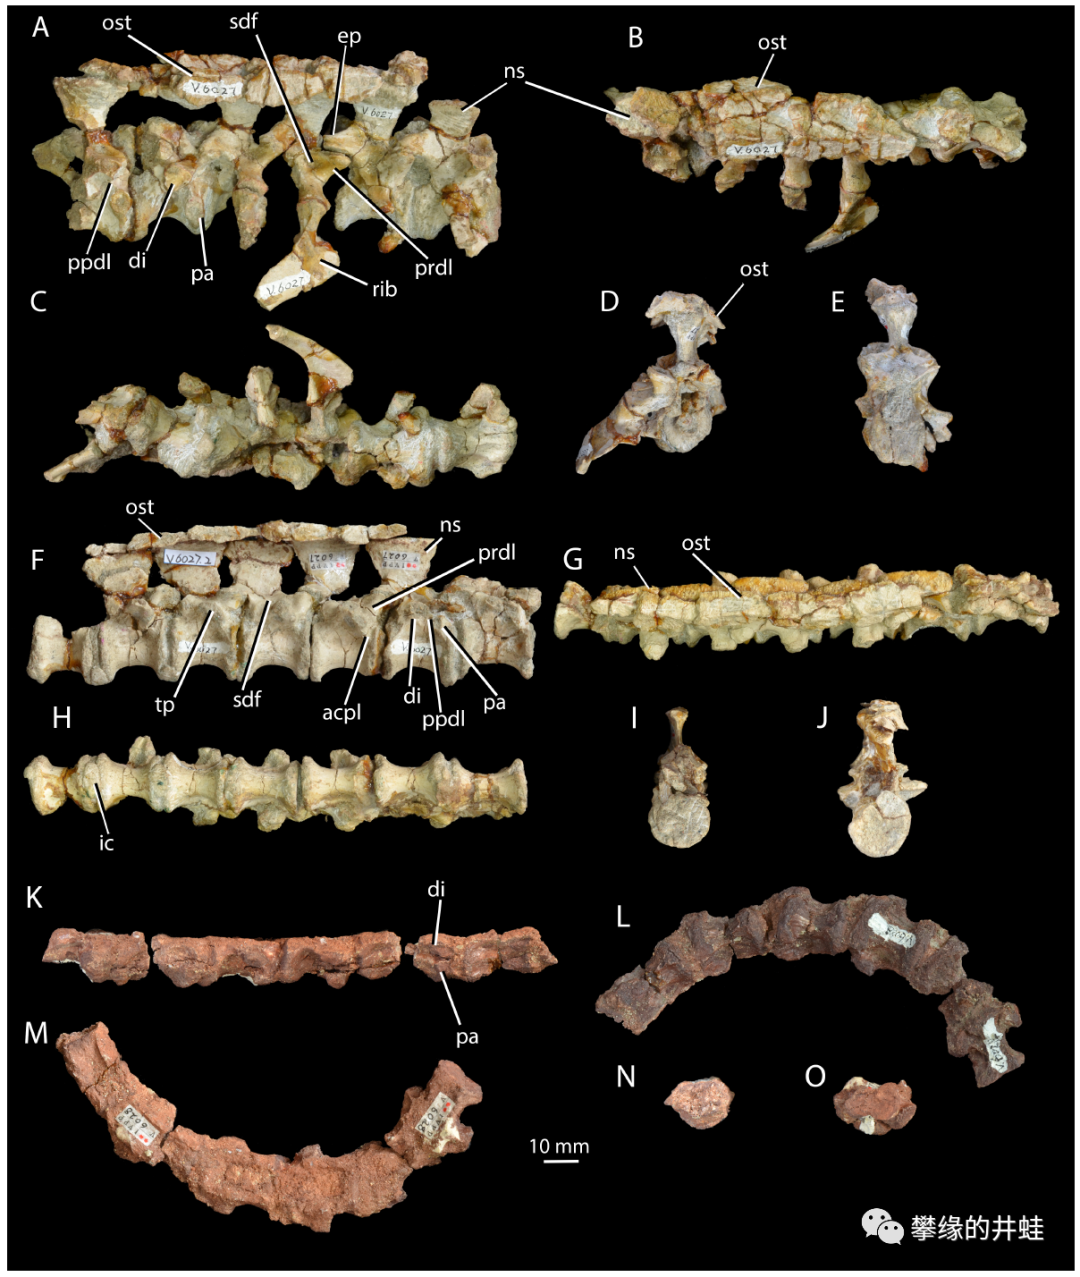
侨家梁哈拉寨鳄(A-J)和“沙圪堵吐鲁番鳄”(K-O)的部分脊柱化石。图片来源自[5]。
派克鳄成体的体长大约1米左右,其他派克鳄科成员也都差不多。它们是一些身体轻捷的掠食者,主要捕食昆虫和小型脊椎动物,也可能会去捡些尸体。这样的战斗力在同时代的主龙形态类中实在有些弱鸡。
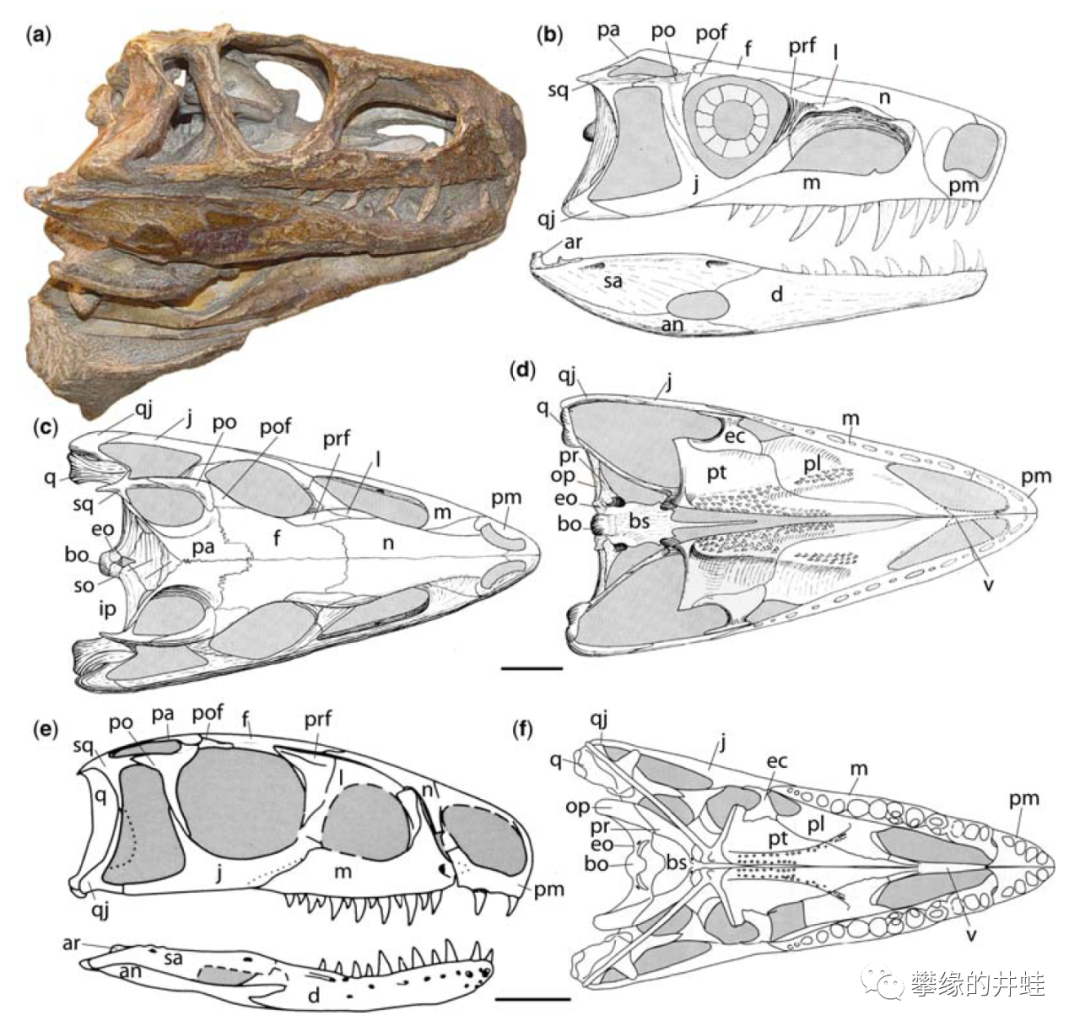
派克鳄(a-d)和欧斯莫斯卡鳄(e,f)的颅骨结构。它们的牙齿较少特化,食谱应该很广。图片来源自[1],标尺长度1厘米。
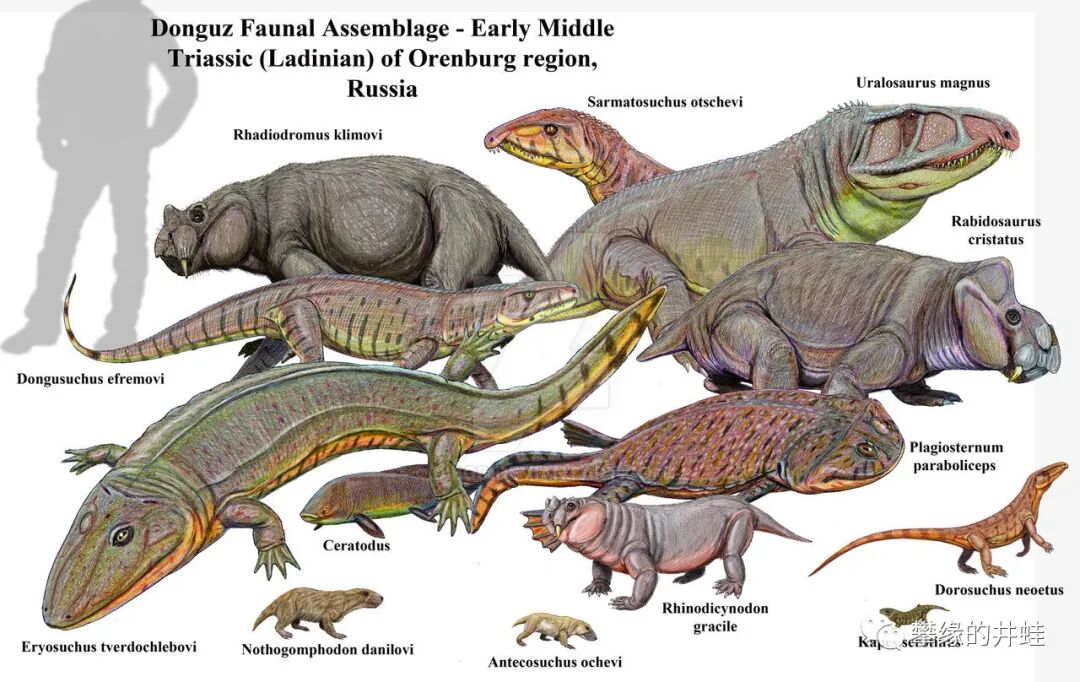
Dorosuchus neoetus
出身于Donguz动物群,该动物群的一些代表动物复原图如上。肥猪一样的二齿兽类(
Rhadiodromus
,
Rabidosaurus
,
Rhinodicynodon
)是古鳄类(
Sarmatosuchus
)和引鳄类(
Uralosaurus
)的口中美食;巨大的离片椎类(
Eryosuchus
,
Plagiosternum
)是水域的统治者。
Dorosuchus neoetus
(右下),派克鳄,以及目前仍然未知的主龙类始祖,只是不起眼的小角色,也就能对着耗子一样的包氏兽类(
Nothogomphodon
,
Antecosuchus
)逞逞威风。图片来源自网络。
人们自然而然地希望在派克鳄身上找到一些线索,来解释主龙类为什么可以在早中三叠世的怪物大战中脱颖而出。目前这方面的研究集中在四肢结构和支撑方式上。派克鳄的后肢比前肢发达,平时可以四足爬行,必要时也可以抬起上身和尾巴,用后足快速奔跑。
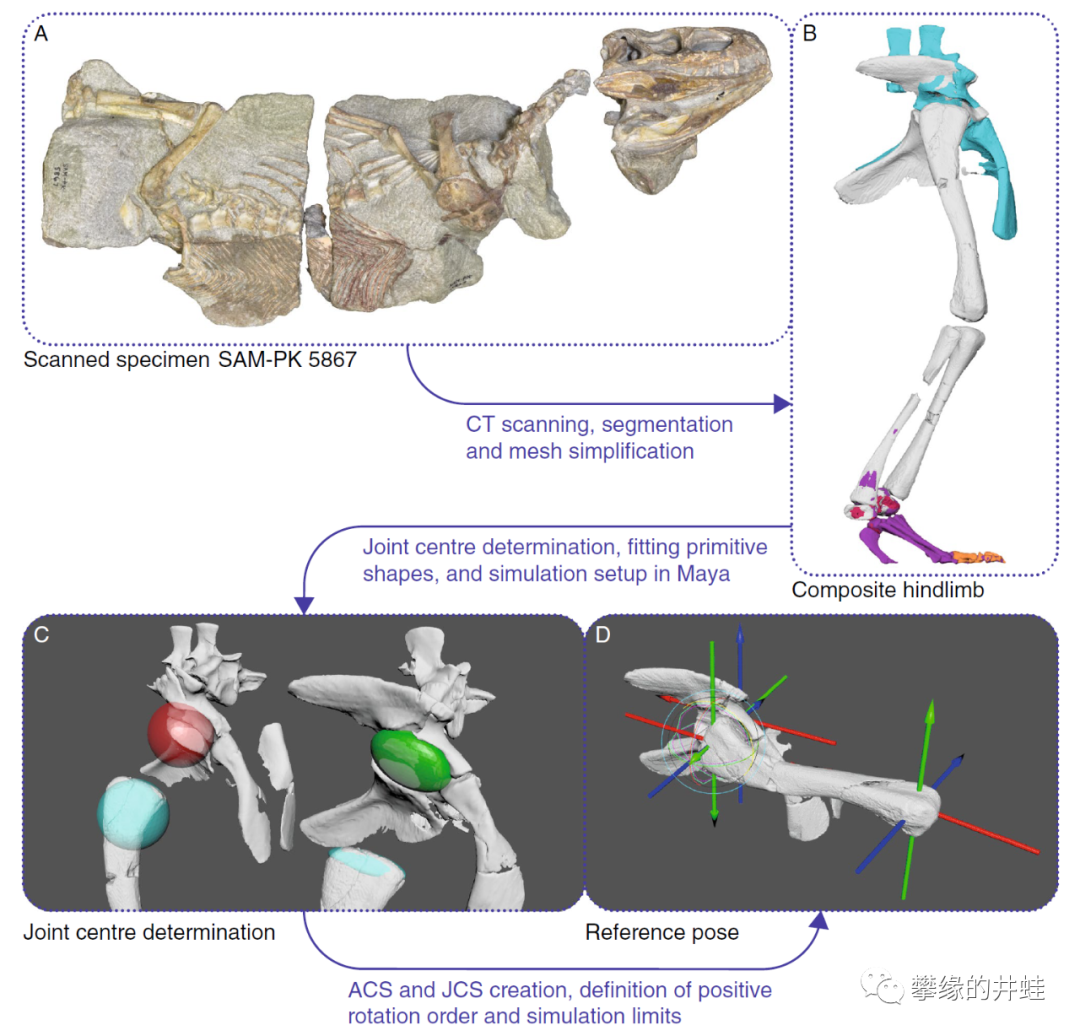
重建派克鳄后肢骨骼和关节3D结构的过程。图片来源自[2]。
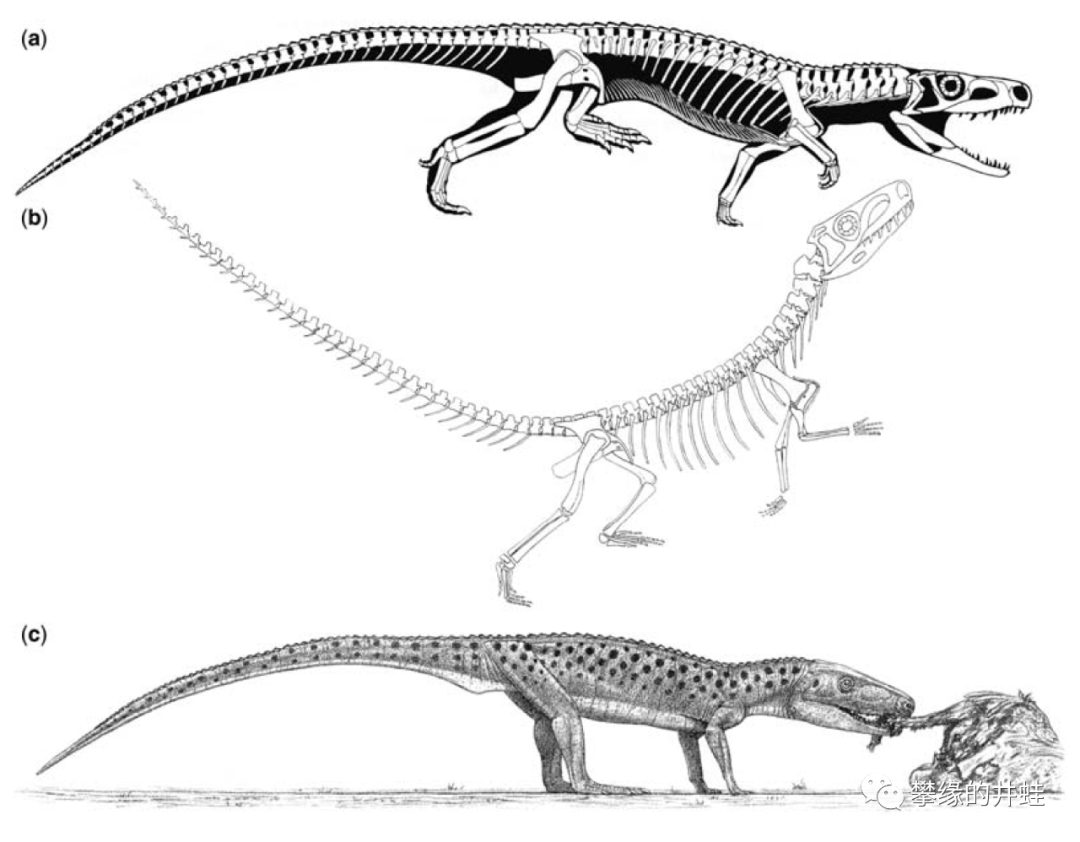
派克鳄的复原图(下图),以及四足爬行(上图)和双足奔行(中图)的姿态。图片来源自[1]。
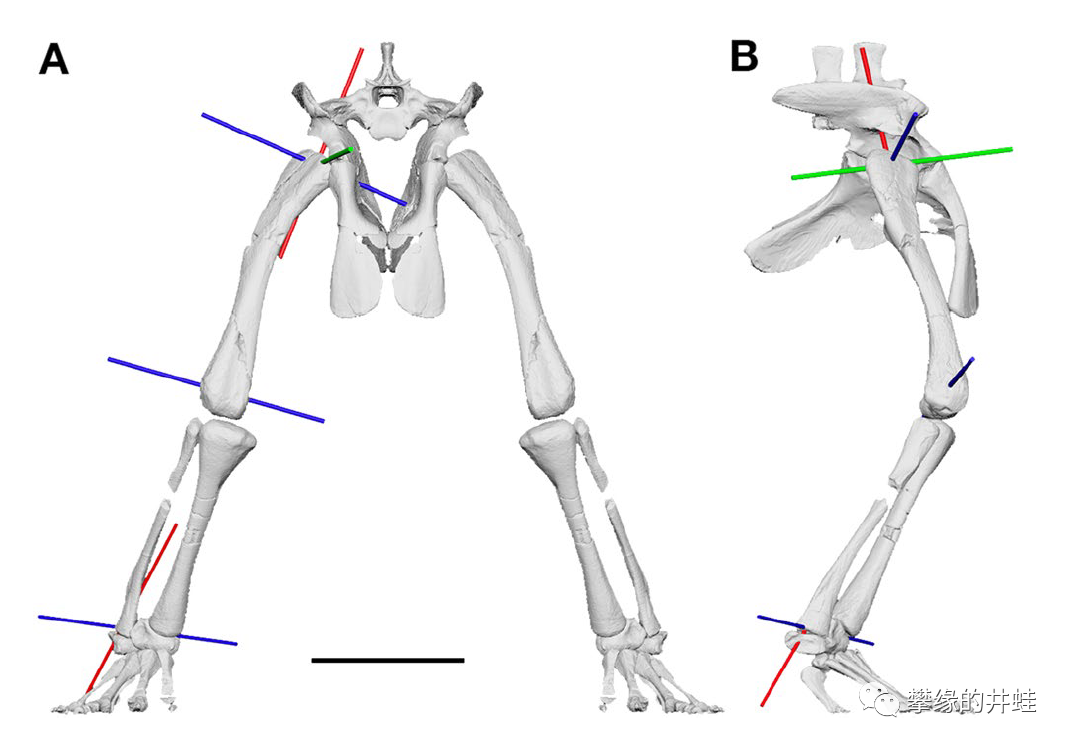
派克鳄后肢站立姿势复原。它可以直立支撑身体,让腹部抬高脱离地面,同时髋关节更加灵活适合大幅度摆动,这是双足奔行的前提。图片来源自[2],标尺长度3厘米。
无论四肢直立还是双足奔跑,都不算特别稀罕的创新。在二叠纪到三叠纪,合弓类、副爬行动物和主龙形态类的其他族群中都不乏这样的尝试。主龙类成功的关键,其实不在“腿”,而在“脚”。
为了帮助理解,我们可以脱下鞋袜,观察一下自己脚的结构:
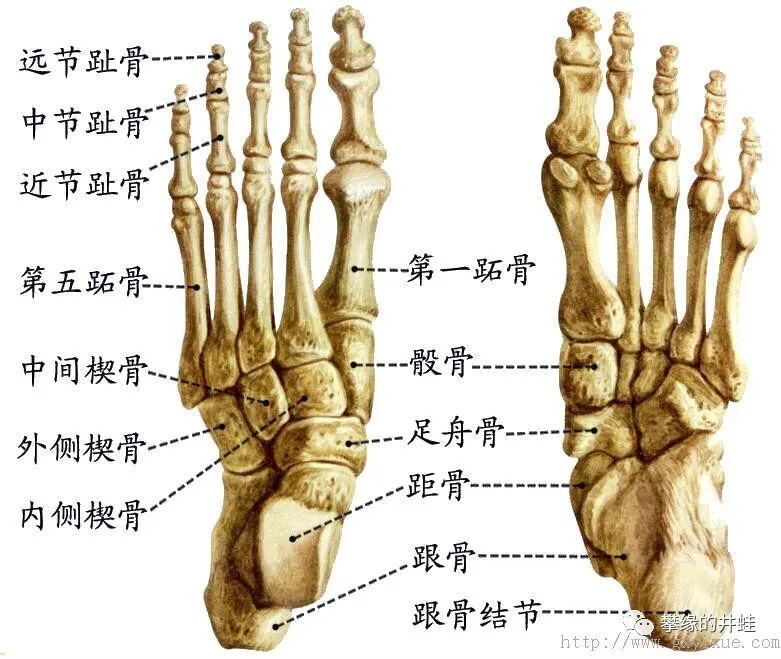
我们的脚骨可以分为:趾骨(脚趾头的骨头),跖骨(前脚掌的骨头)和附骨(脚踝部位的一系列骨头);最后是跟骨(脚后跟的骨头)和距骨(叠在跟骨上面的一块骨头)。它们的位置和组合如上图所示。左:脚背视图;右:脚心试图。图片来源见水印。
像人类这样把整个脚掌(包括趾骨、跖骨和跟骨)都按在地上站立和行进的方式被称为跖行式(Plantigrade)。除了跖行式之外,还有趾行式(Digitigrade),就是只有脚趾着地,以及蹄行式(Onguligrade),就是只有脚趾尖着地。
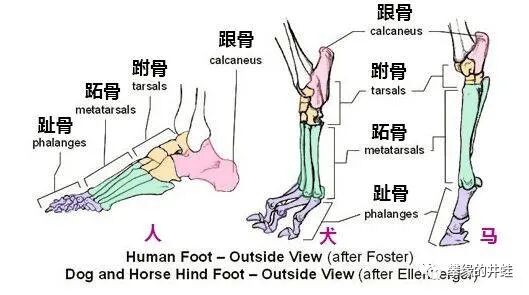
跖行式(人脚)、趾行式(狗腿)和蹄行式(马腿)的骨骼对比。可能很多朋友都疑惑过为什么狗和马的“膝盖”是向前弯的。现在清楚了:那个关节其实不是“膝盖”,而是“脚后跟”。图片来源自网络。
“蹄行”出现得很晚,等到新生代的章回再详细介绍。仅就“跖行”和“趾行”来说,二者各有优劣。跖行站得稳当,趾行跑得轻快,配合适当的腿部动作,都可以极大提高陆生动物的运动能力。
因为身体结构的同源性,这些骨头在派克鳄,假鳄类和鸟跖类主龙的脚上也能对应起来。
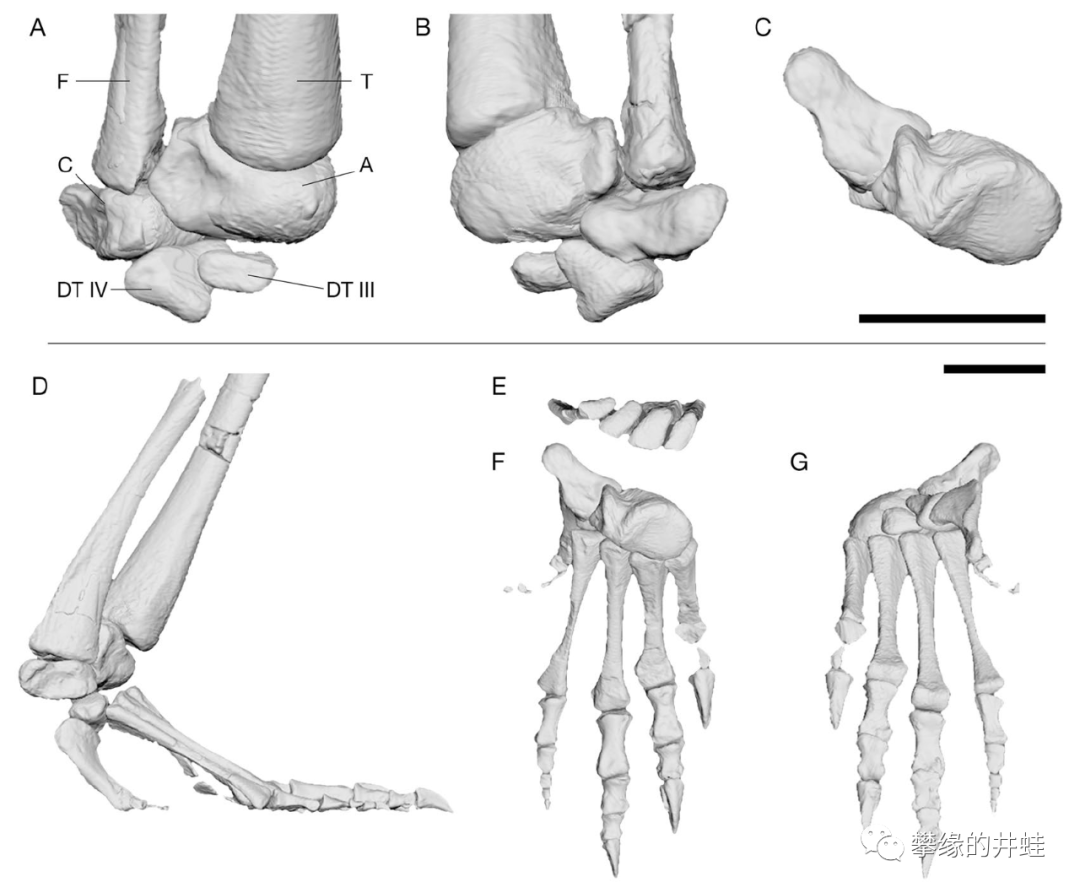
派克鳄右后足骨的3D复原,很像我们的脚丫子,但是脚踝部分的骨头较小,连结得不紧密。说是“跖行”吧,它也没有一个着地的脚后跟;说是“趾行”吧,它的跖骨也没脱离地面。属于半吊子的中间状态吧。图片来源自[2],标尺长度2厘米。
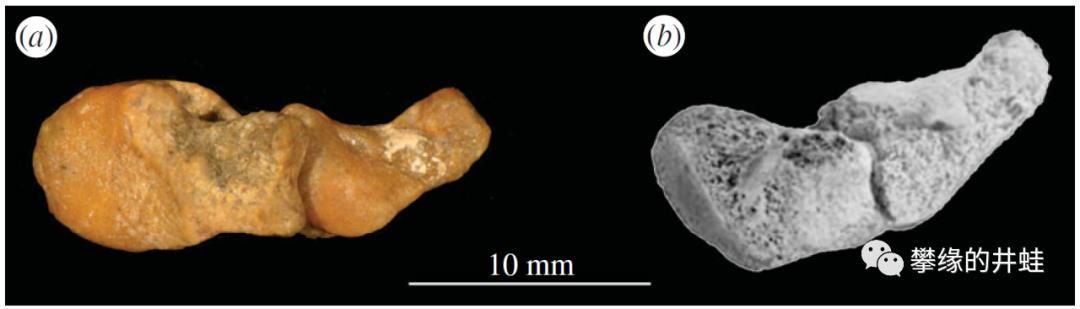
派克鳄(a)和欧斯莫斯卡鳄(b)的跟骨和距骨。跟骨就是我们脚后跟那块骨头,它们的跟骨并不着地,也就是没有脚后跟。图片来源自[6]。
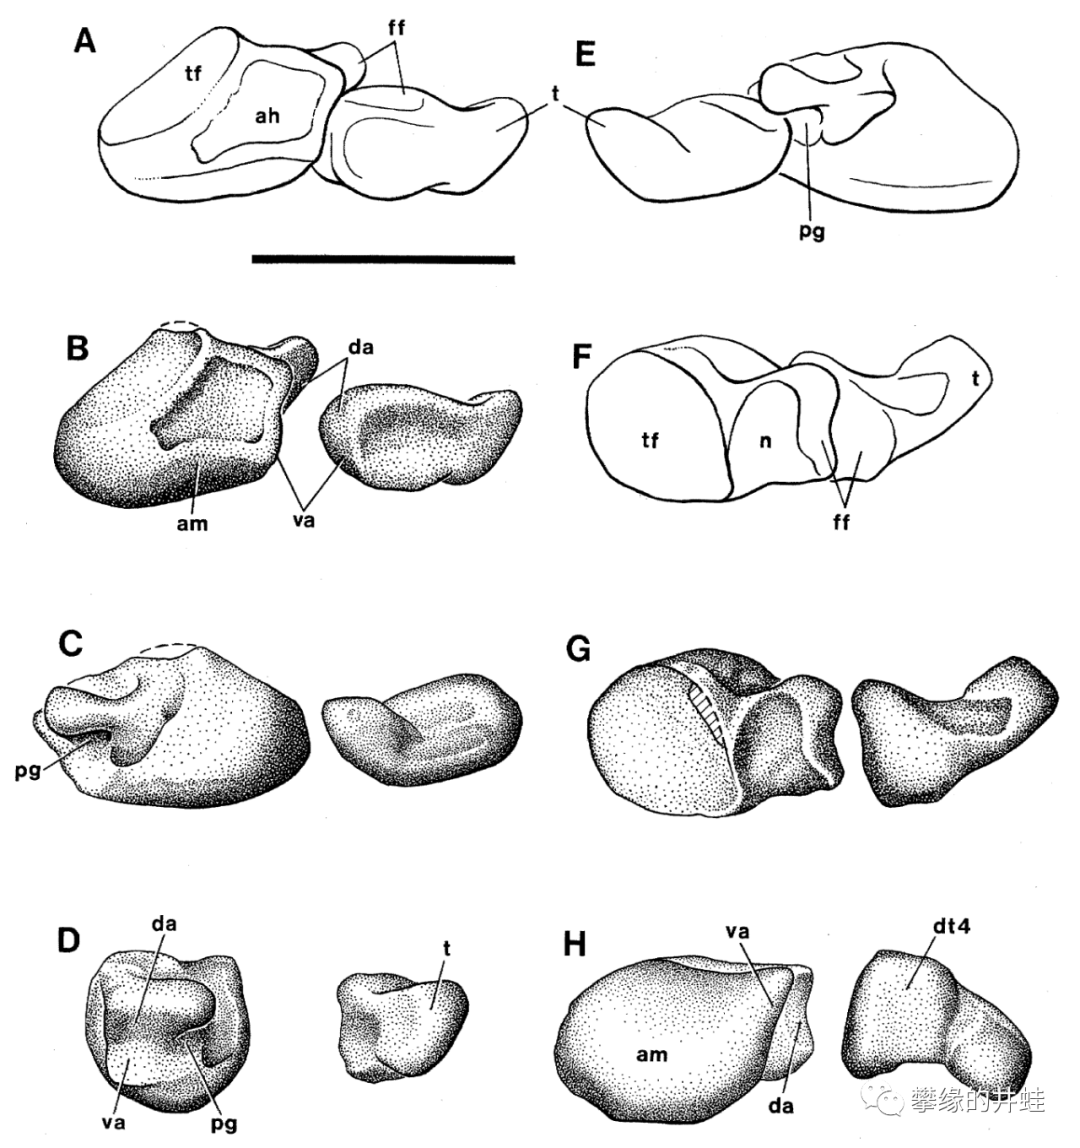
派克鳄跟骨和距骨的嵌合方式。图片来源自[7],标尺长度1厘米。
大体上,假鳄类主龙和鸟跖类主龙朝着两个方向调整了脚部骨骼,并实现了常态化的双足奔行,大大提高了运动能力。
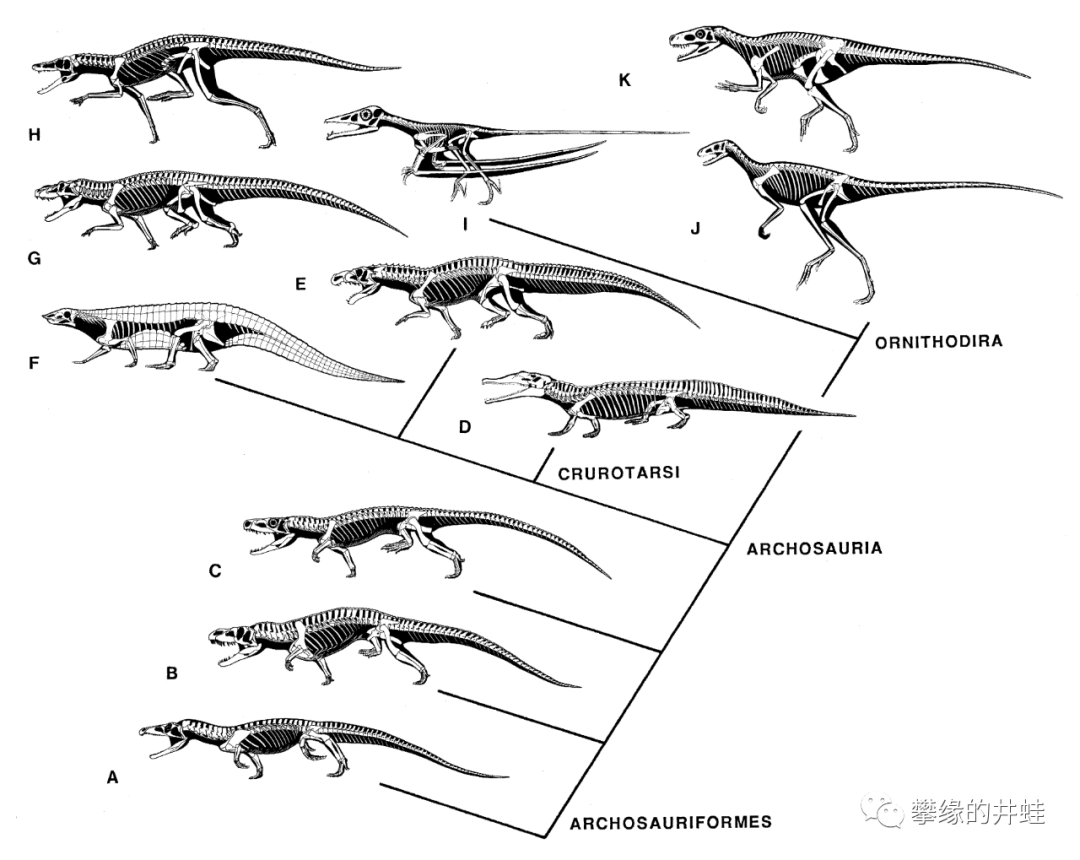
一些主龙形类主要类群的骨骼简图。主龙形类包括A:古鳄类;B:引鳄类;C:派克鳄。假鳄类主龙包括D:植龙类;E:鸟鳄类;F:坚蜥类;G:迅猛鳄类;H:鳄形超目。鸟跖类主龙包括I:翼龙类;J:兔鳄类;K:恐龙总目。大家可以看看哪些是跖行式,哪些是趾行式,估计一下它们的运动能力。图片来源自[7]。
先说假鳄类主龙,它们强化了跟骨和距骨,并演化出复杂的嵌合结构(所以曾经被称为“镶嵌踝类”)。简单说,就是它们有了“脚后跟”,站得更稳了。
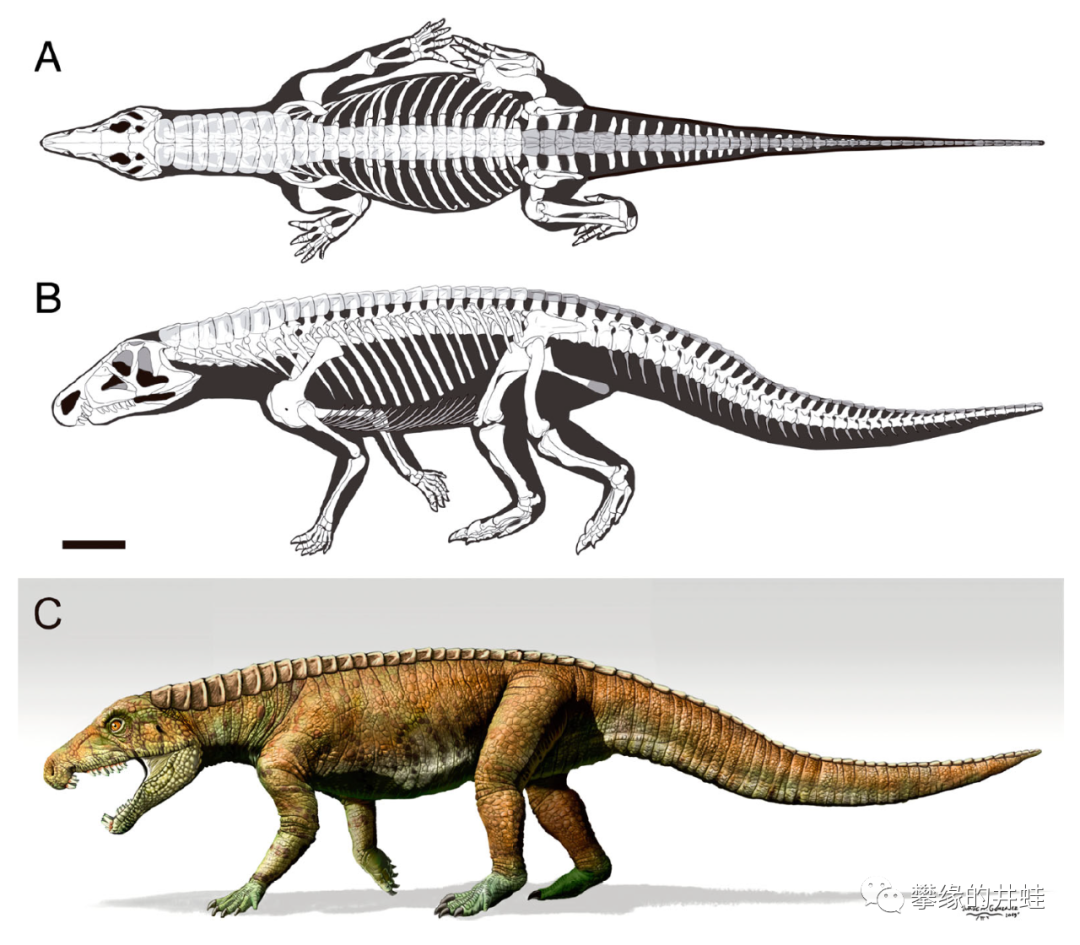
这是里约鳄
Riojasuchus tenuisceps
的骨骼结构和复原图。里约鳄属于鸟鳄科(Ornithosuchidae)这是一个靠近基干的假鳄类分支。注意它的后足明显是跖行式,有个突出的脚后跟。图片来源自[8] ,标尺长度10厘米。
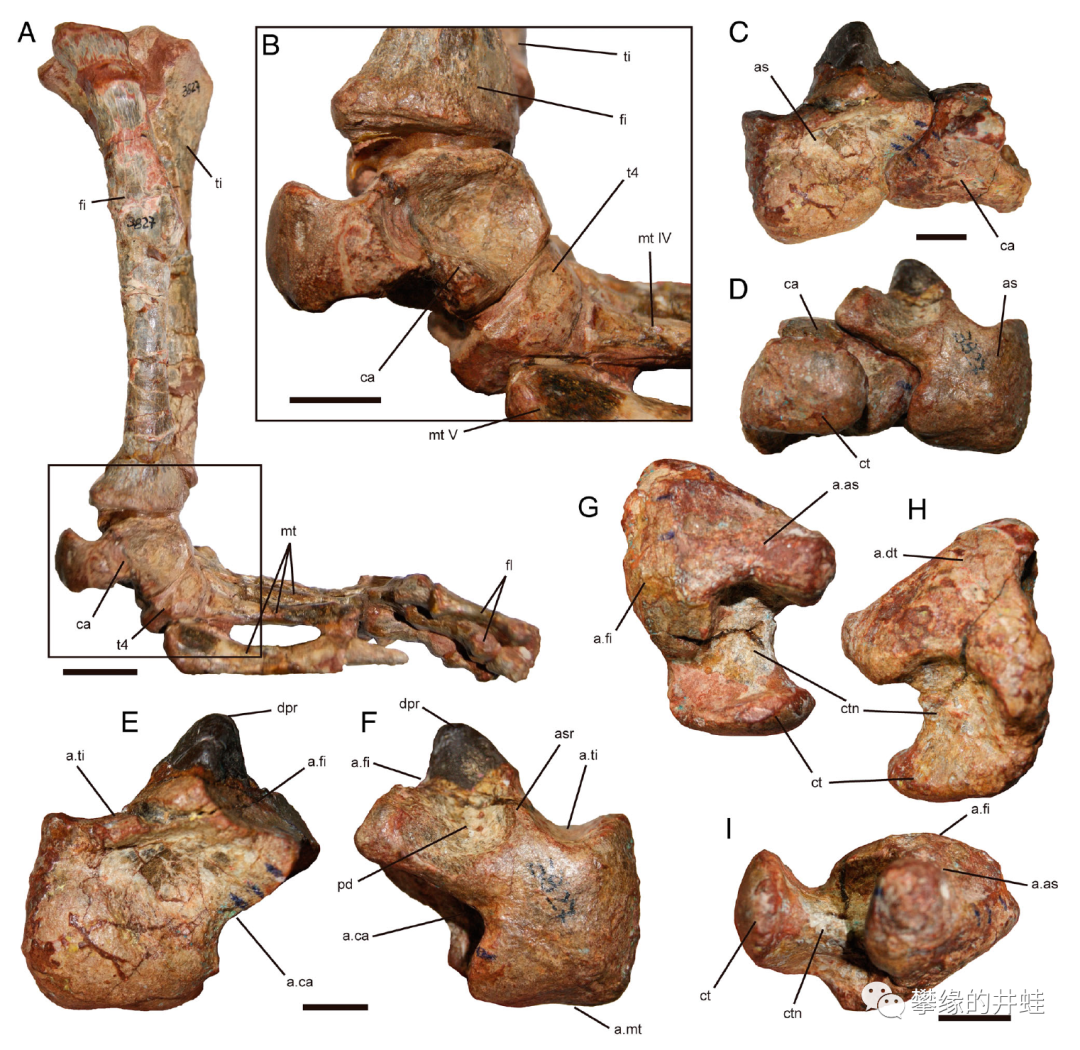
里约鳄的脚踝结构。那个大脚后跟非常明显,C图和D图则展示了跟骨(ca)和距骨(as)的嵌合。图片来源自[8] ,A标尺长度2厘米,B标尺长度1厘米。
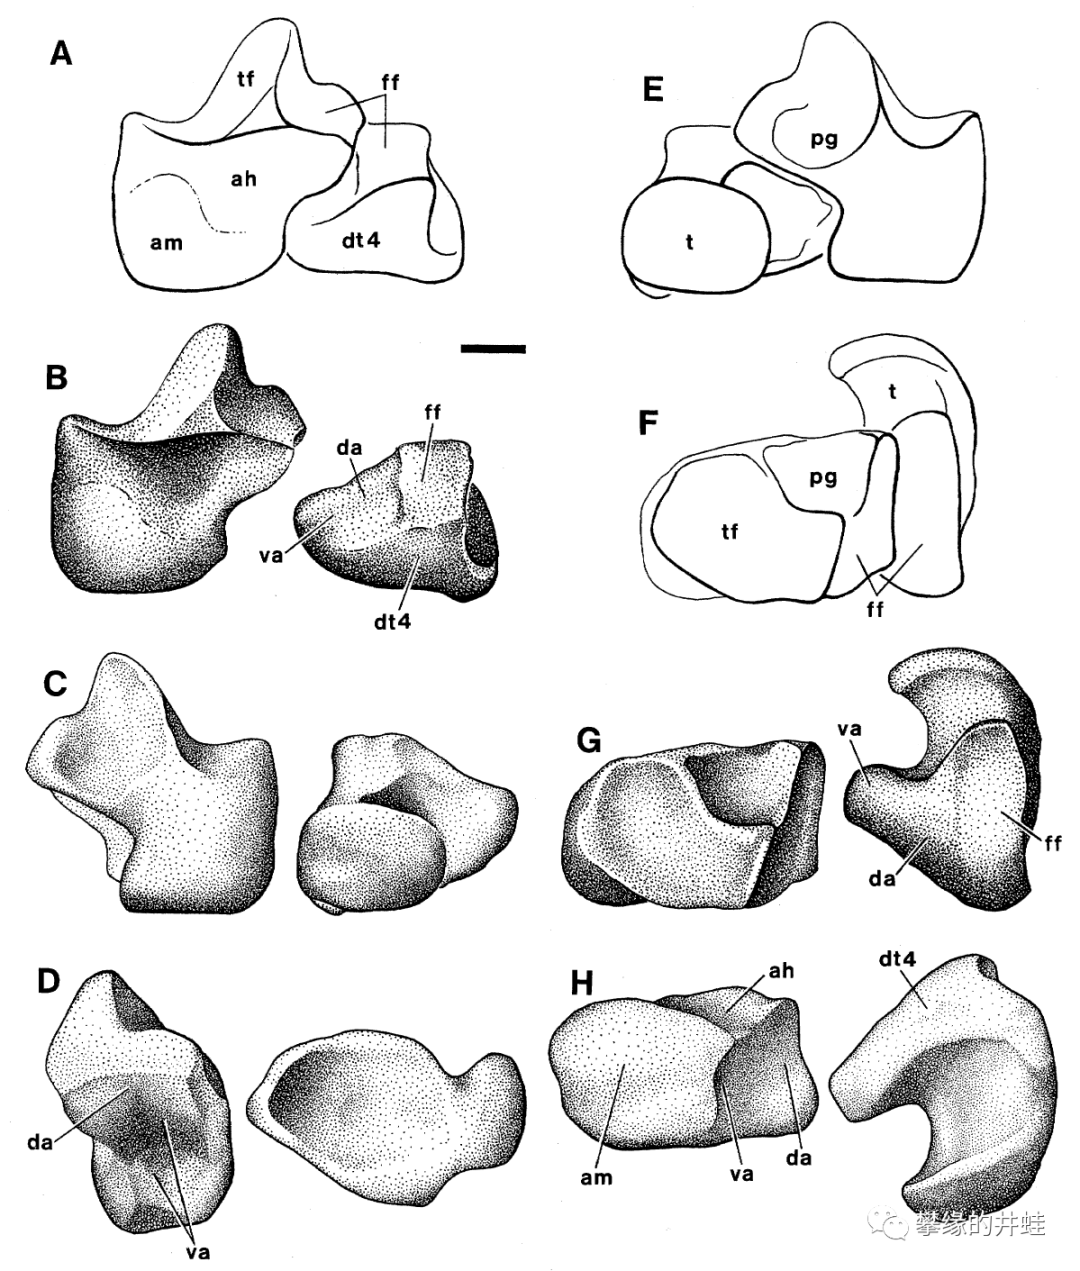
里约鳄的跟骨和距骨镶嵌结构示意图,各个角度,掰开了让你看清楚。图片来源自[7],标尺长度1厘米。
假鳄类的镶嵌式踝骨和大脚后跟代代相传,直到现代,鳄类依然保留着这些特征。
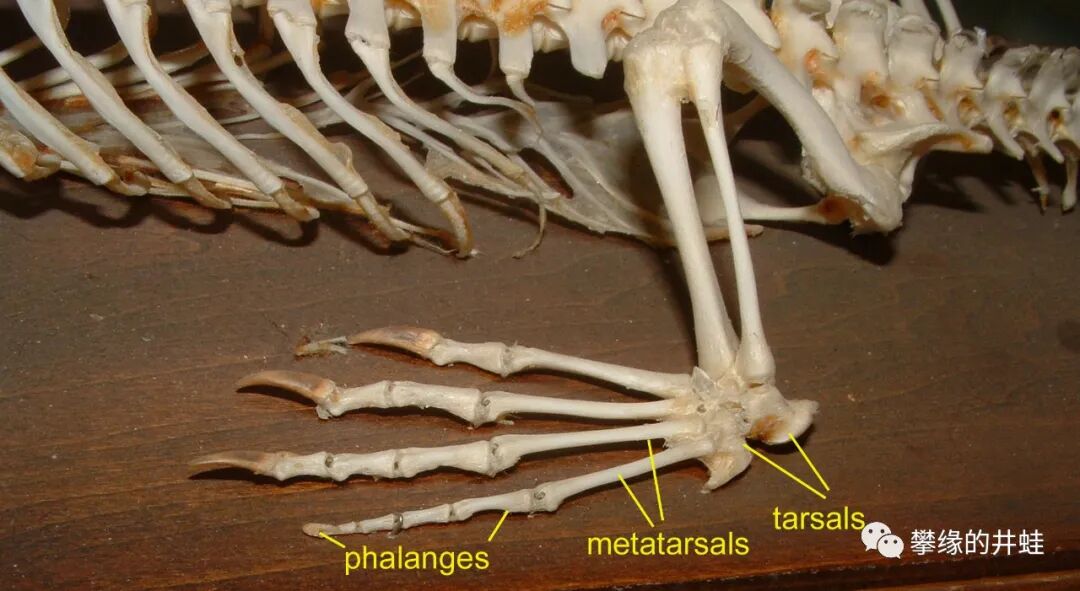
现代某种鳄类的后肢骨骼标本,那个大脚后跟还在。图片来源自网络。
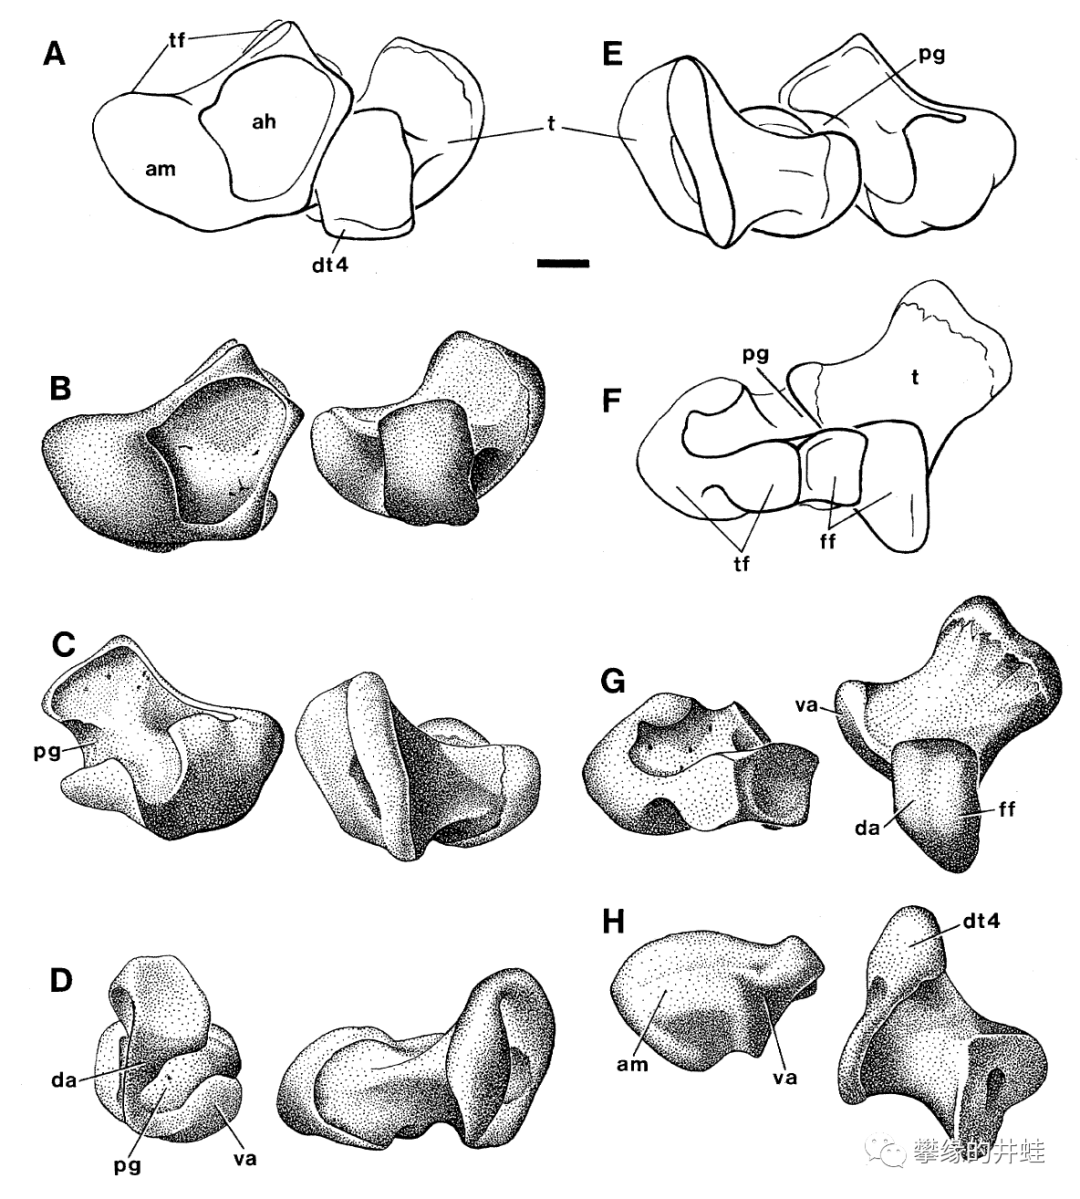
现代美洲鳄
Crocodylus acutus
的跟骨和距骨“镶嵌踝”结构示意图。图片来源自[7],标尺长度1厘米。
双足行走(bipedal)的假鳄类,比如晚三叠世的波波龙
Poposaurus gracilis
。它们也一样有镶嵌在一起的跟骨和距骨,和大脚后跟。
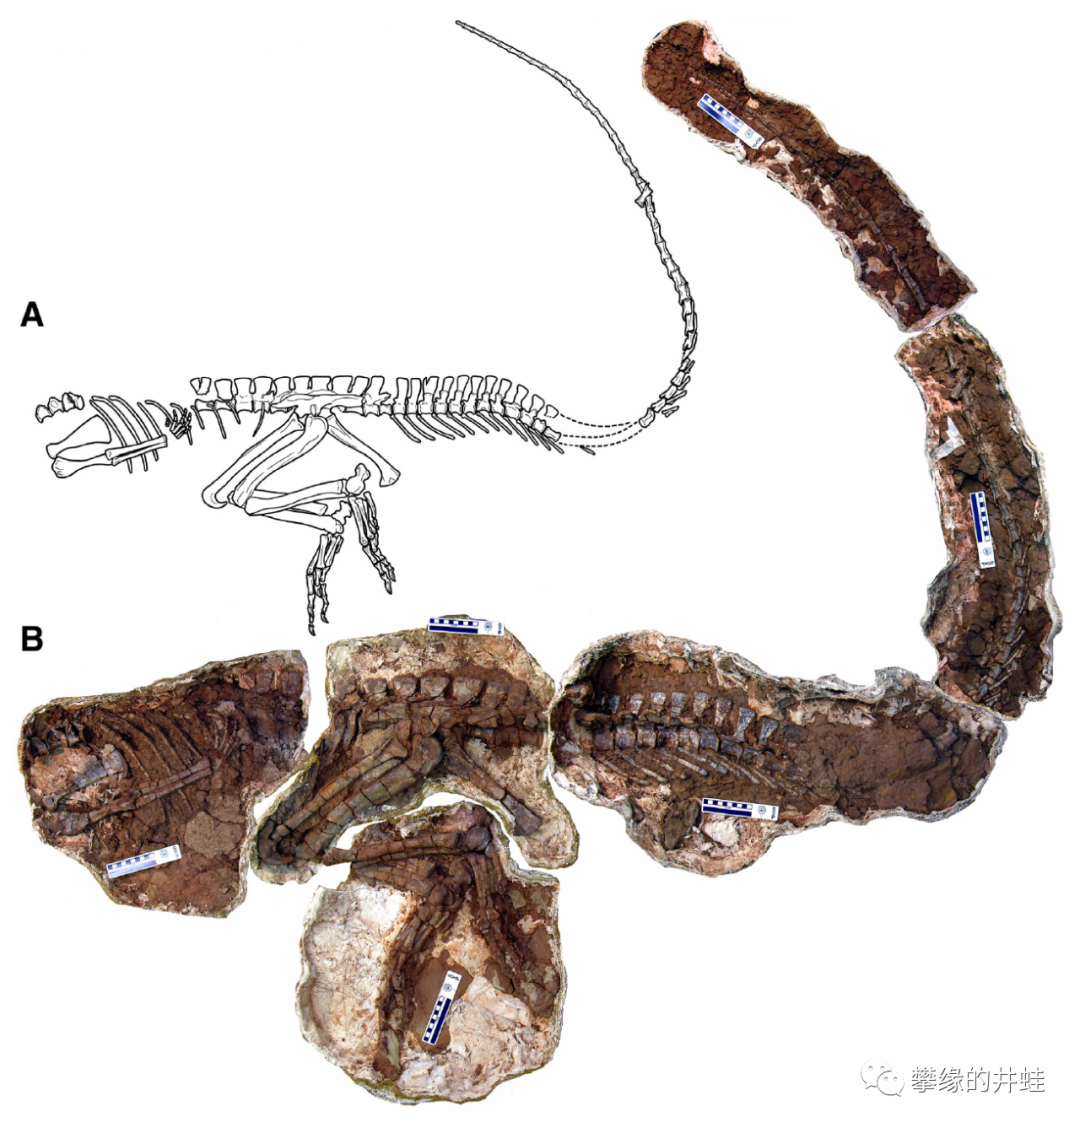
犹他州发现的波波龙下半身化石YPM 57100。注意它的大脚后跟。图片来源自[9],标尺长度10厘米。
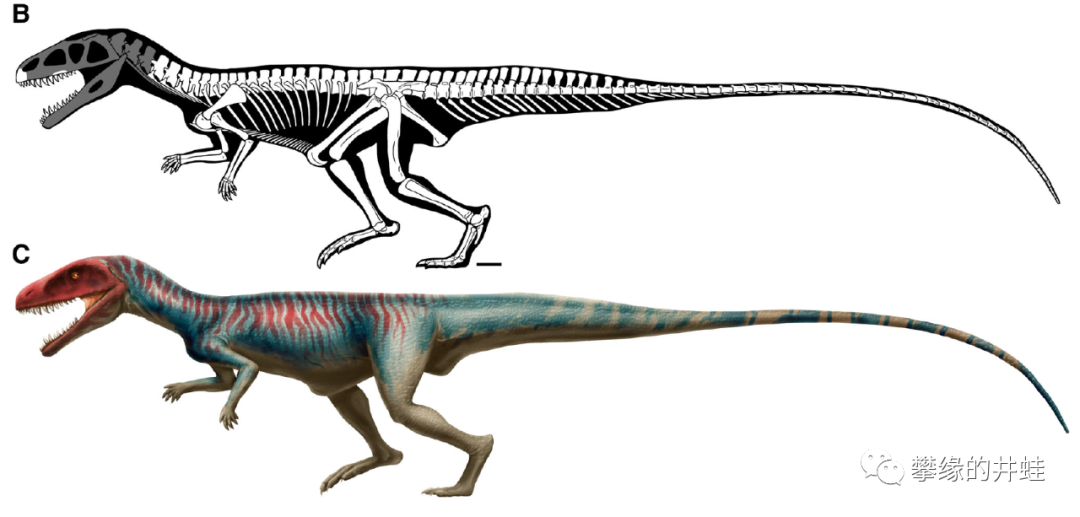
波波龙骨骼结构和复原图。它的体型很像后来一些长着小短手的鸟跖类主龙。但是跖行式的大脚后跟暴露了它的假鳄类身份。波波龙应该可以长时间稳定站立,但速度和灵活性比不上和它体型相近的双足鸟跖类。图片来源自[9],标尺长度10厘米。
讲完了假鳄类的“镶嵌踝”,再来看看鸟跖类主龙的脚丫子。
目前已知最原始的鸟跖类主龙组成了一个类群:Aphanosauria。我看到【作者:酸色黑樱桃,隐匿的蜥蜴——匿龙目,https://www.bilibili.com/read/cv7671533/,出处:bilibili】译为“匿龙目”,在此借花献佛一下。
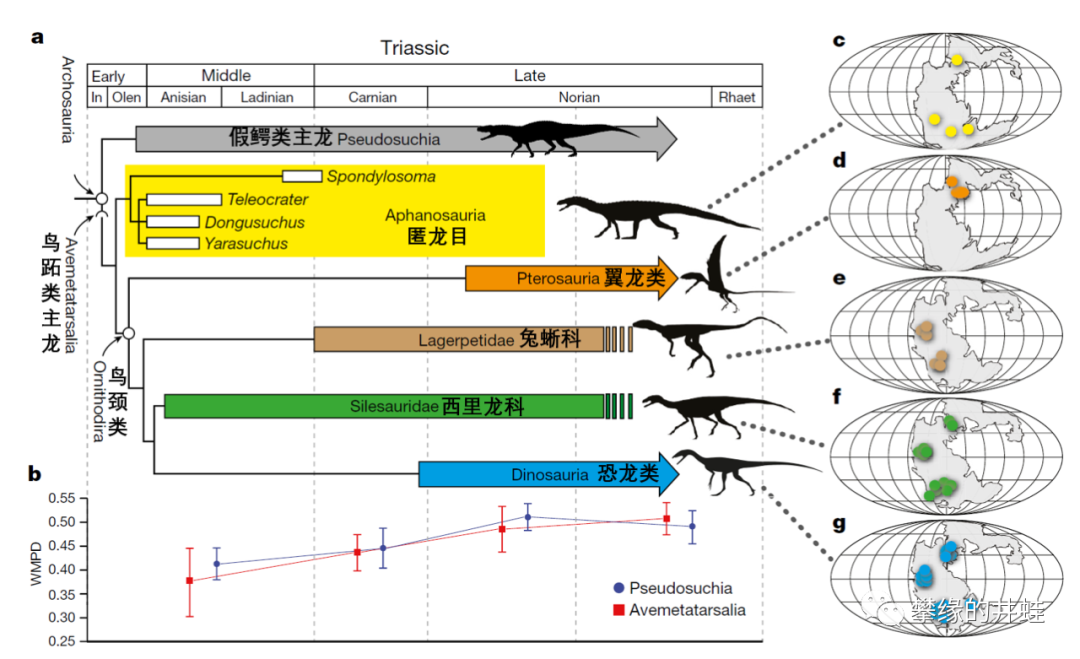
匿龙目在鸟跖类主龙中处于最靠近基干的位置。它们的出现时间早于翼龙类和恐龙形态类的分化,形态结构应该最接近鸟跖类主龙的共同祖先。图片来源自[10]。
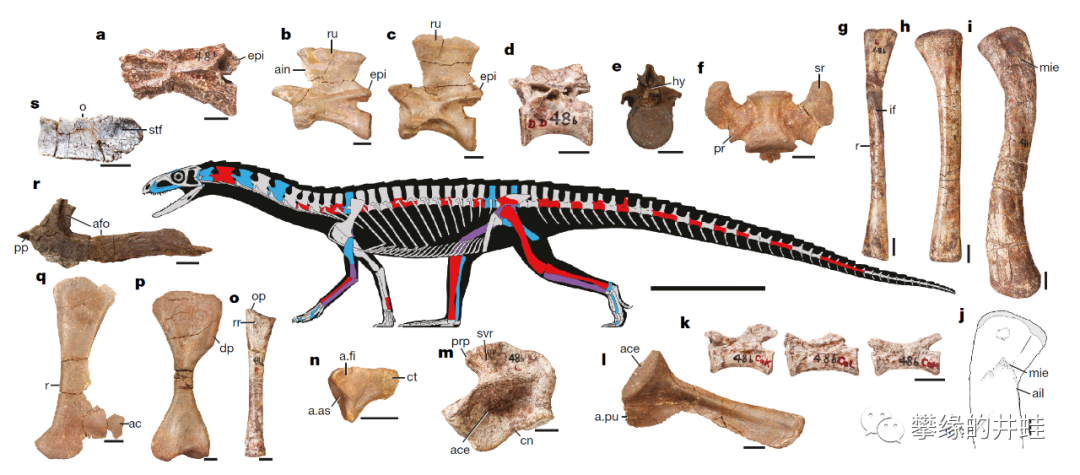
匿龙目的外形有点像放大了的派克鳄。上图是坦桑尼亚发现的中三叠世安尼期匿龙类:
Teleocraterrhadinus
,酸色黑樱桃译为“完臼龙”。它的运动方式应该也类似派克鳄,平时四脚着地,也能短时双足奔跑。图片来源自[10],骨骼复原图标尺长度25厘米。
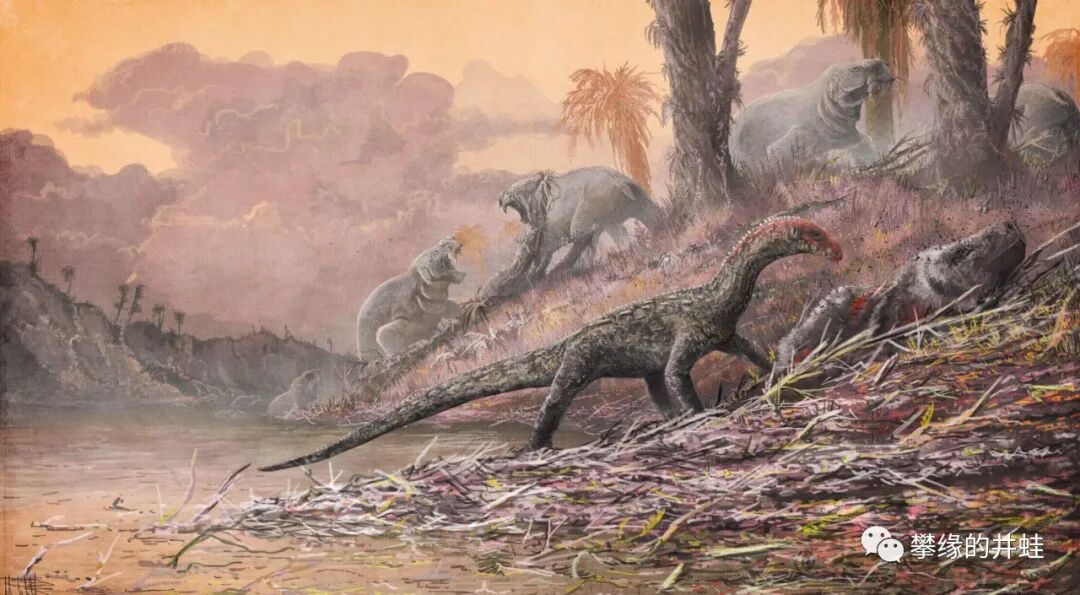
复原图中的完臼龙似乎正在撕扯某种兽头兽或者犬齿兽的尸体。鸟跖类的始祖应该和它类似,也是一副四足爬虫的形象,看不出日后直立挺拔的身姿。Image credit:Mark Witton/Natural HistoryMuseum,London
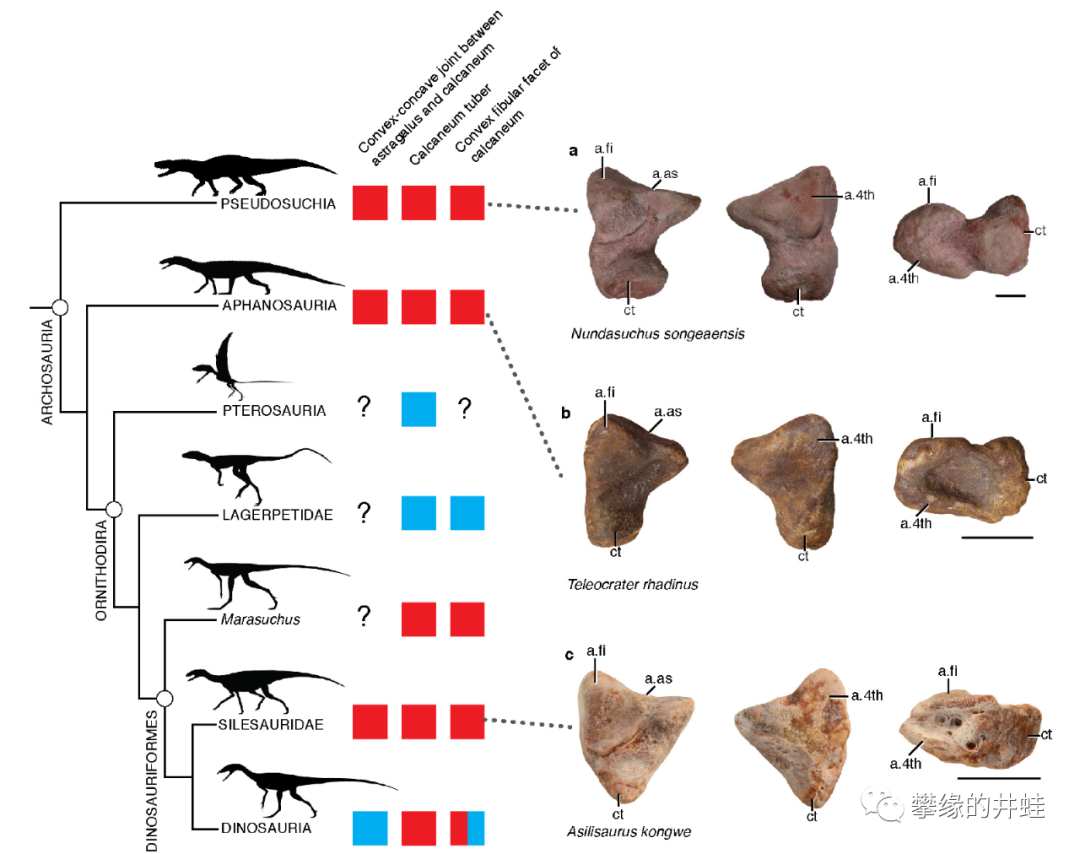
完臼龙的脚踝结构(跟骨和距骨,右图b)和假鳄类(右图a)非常相似,这应该也是主龙类的初始设置。图片来源自[10]。
接下来,鸟跖类走上了一条和假鳄类截然相反的脚掌改造之路。
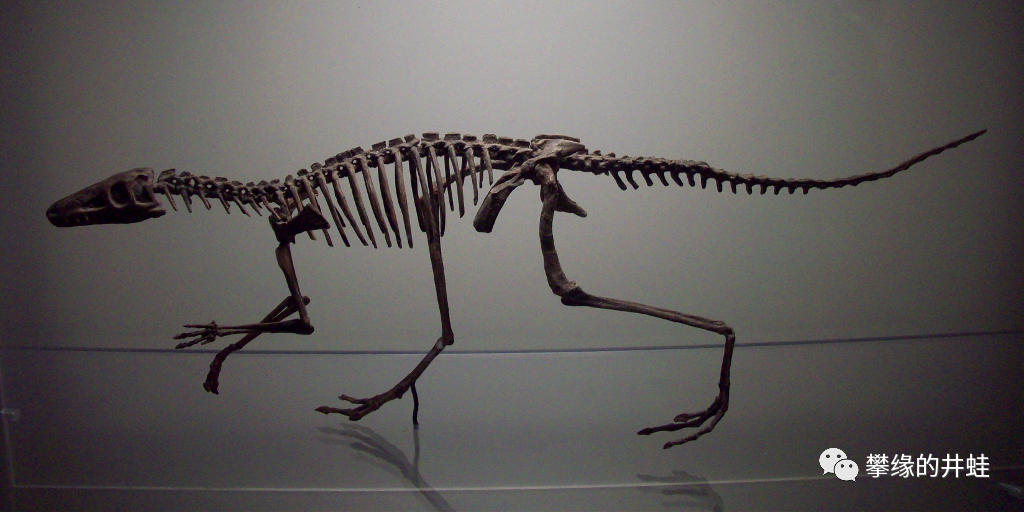
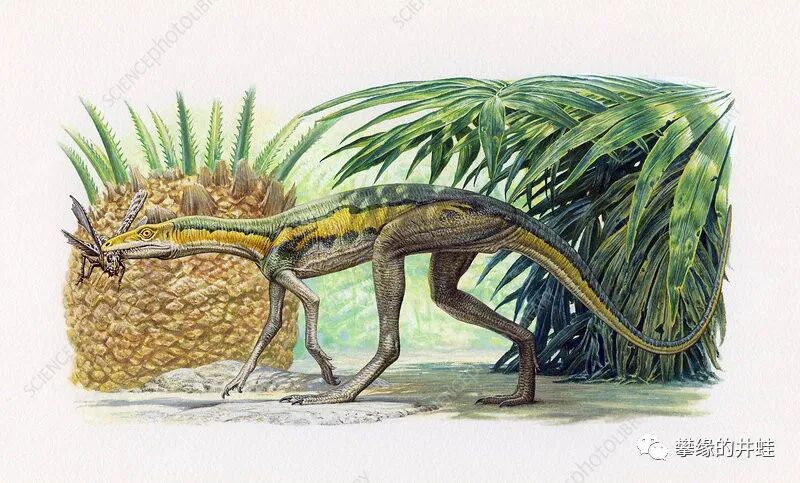
这是兔鳄
Lagosuchus talampayensis
的骨骼模型(图片来源自网络)和外形复原(图片来源见水印)。兔鳄生活在晚三叠世的阿根廷,属于基干恐龙形类(Dinosauriformes),也就是说它不是真正的恐龙,但算是恐龙最近的近亲之一。
和波波龙一样,兔鳄也是双足行走的动物。但是仔细对比二者的腿部,可以发现兔鳄好像没有“脚后跟”。这正是鸟跖类区别于假鳄类的一个重要特征:它们并没有去开发复杂的骨骼镶嵌,而是把很多骨头一股脑简化掉了。
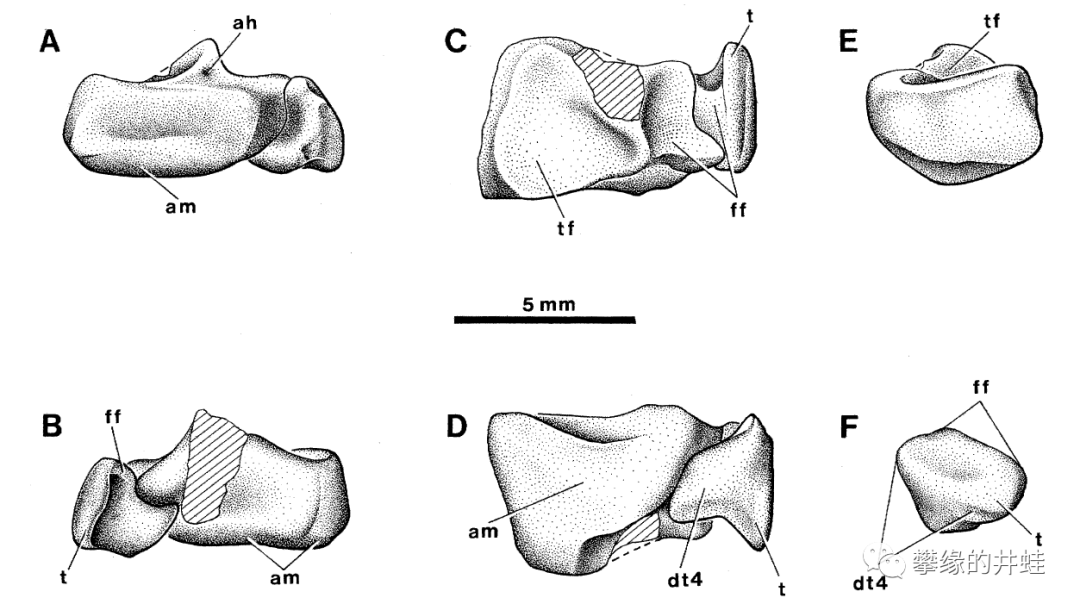
兔鳄的脚踝结构。它的跟骨(对应假鳄类的脚后跟)退化,变成了贴在距骨上的薄薄一小片(F)。图片来源自[7]。
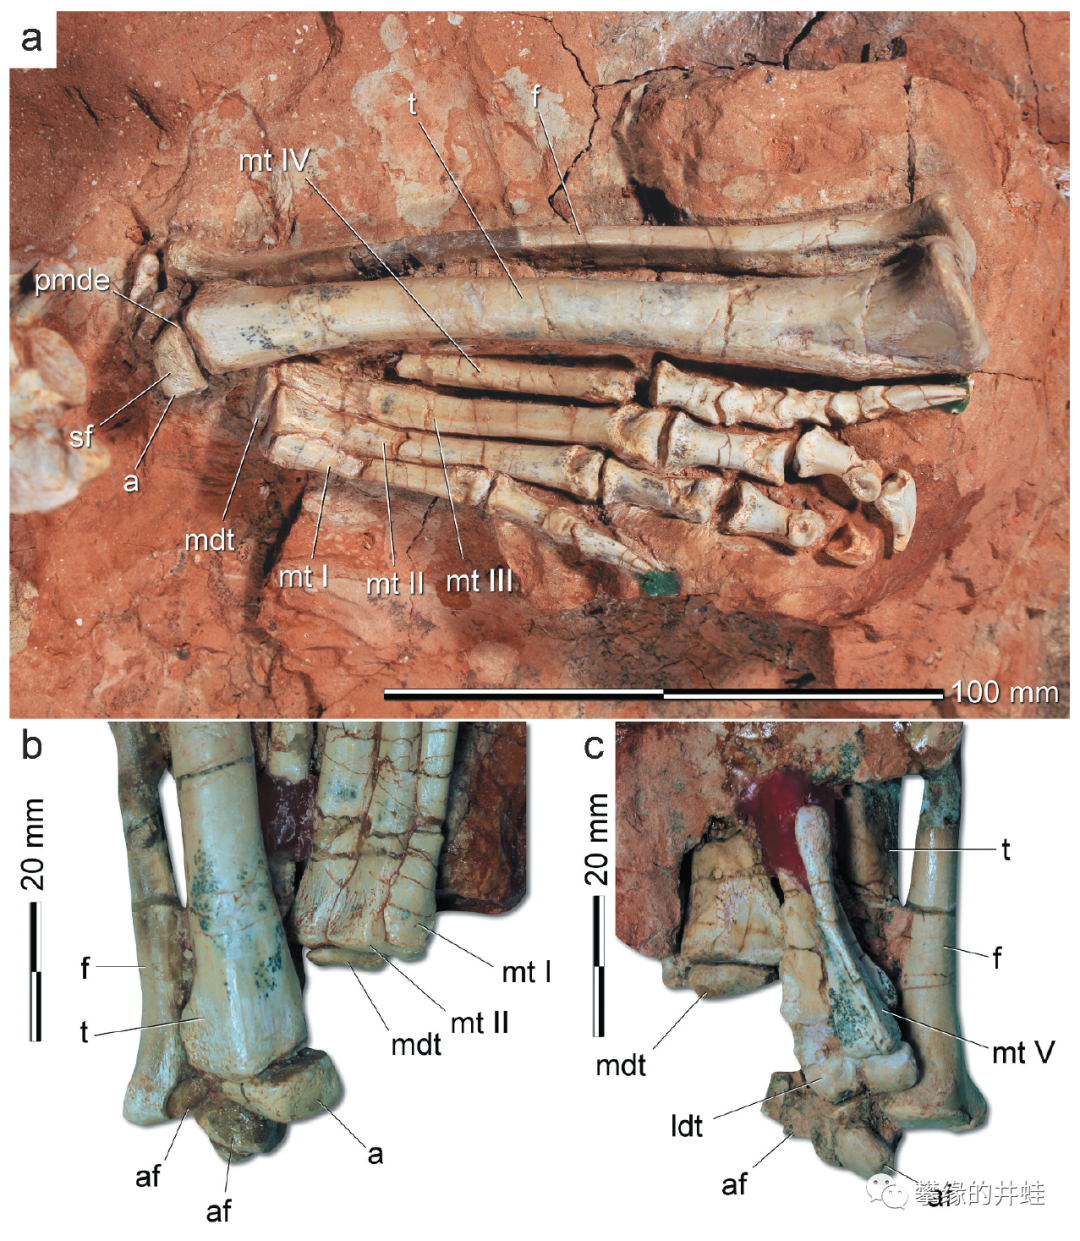
更高等的鸟跖类脚后跟进一步退化。这是巴西发现的晚三叠世卡尼期恐龙
Buriolestes schultzi
的后肢踝关节,可以找到距骨(a),而跟骨已经完全消失了。图片来源自[11]。
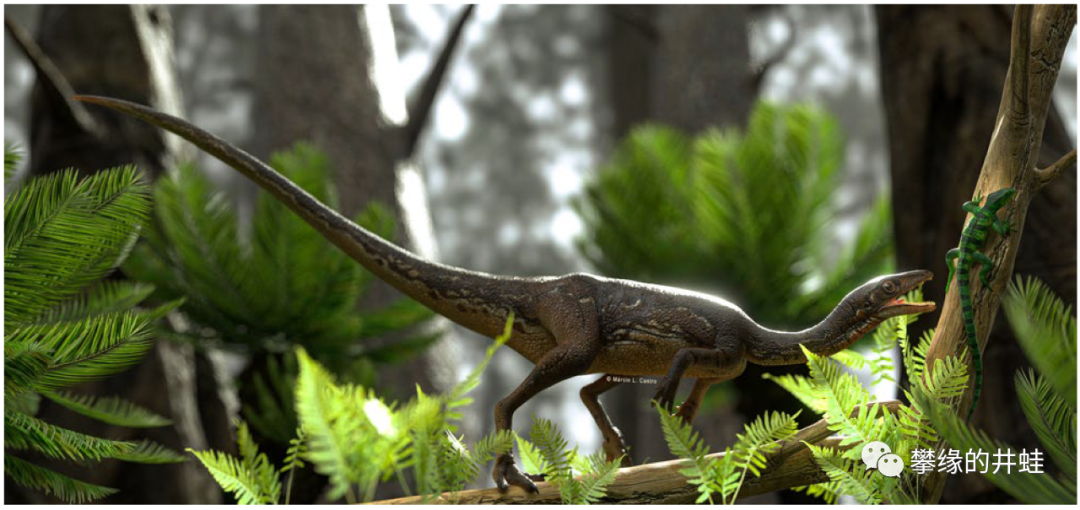
Buriolestes schultzi
复原图。它体长1米左右,但脑子只有豌豆那么大。图片来源自[12]。
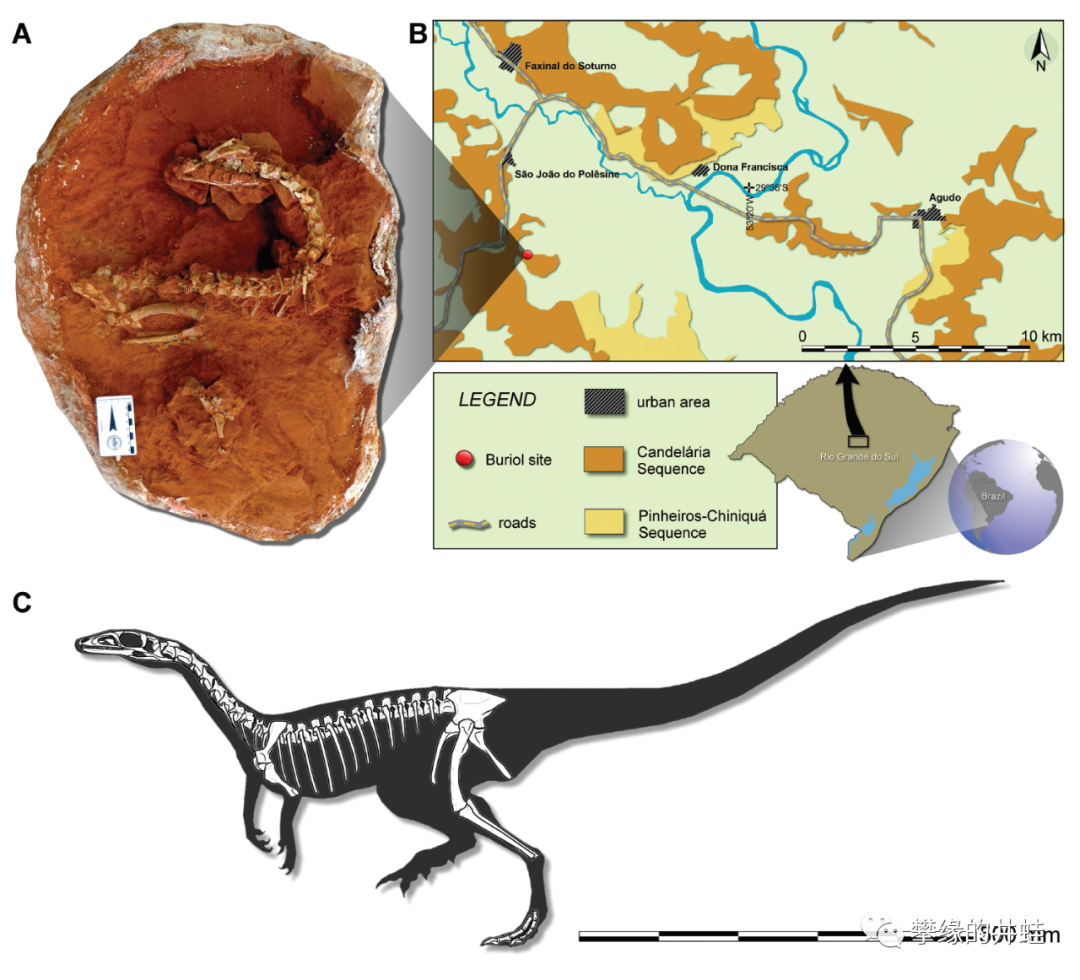
Buriolestes schultzi
被研究得非常充分。A是较为完整的标本CAPPA/UFSM 0035,C为依此复原的
Buriolestes schultzi
躯体结构(C)。图片来源自[13]。
“脚后跟”的消失确定了鸟跖类的“趾行式”步态。它们的后肢更加笔直顺畅,便于支持体重,提踵蹬地也更方便发力。这些优势与气囊系统(Air sac system)相结合,让鸟跖类的运动能力远远超过假鳄类,为之后的崛起奠定了基础。
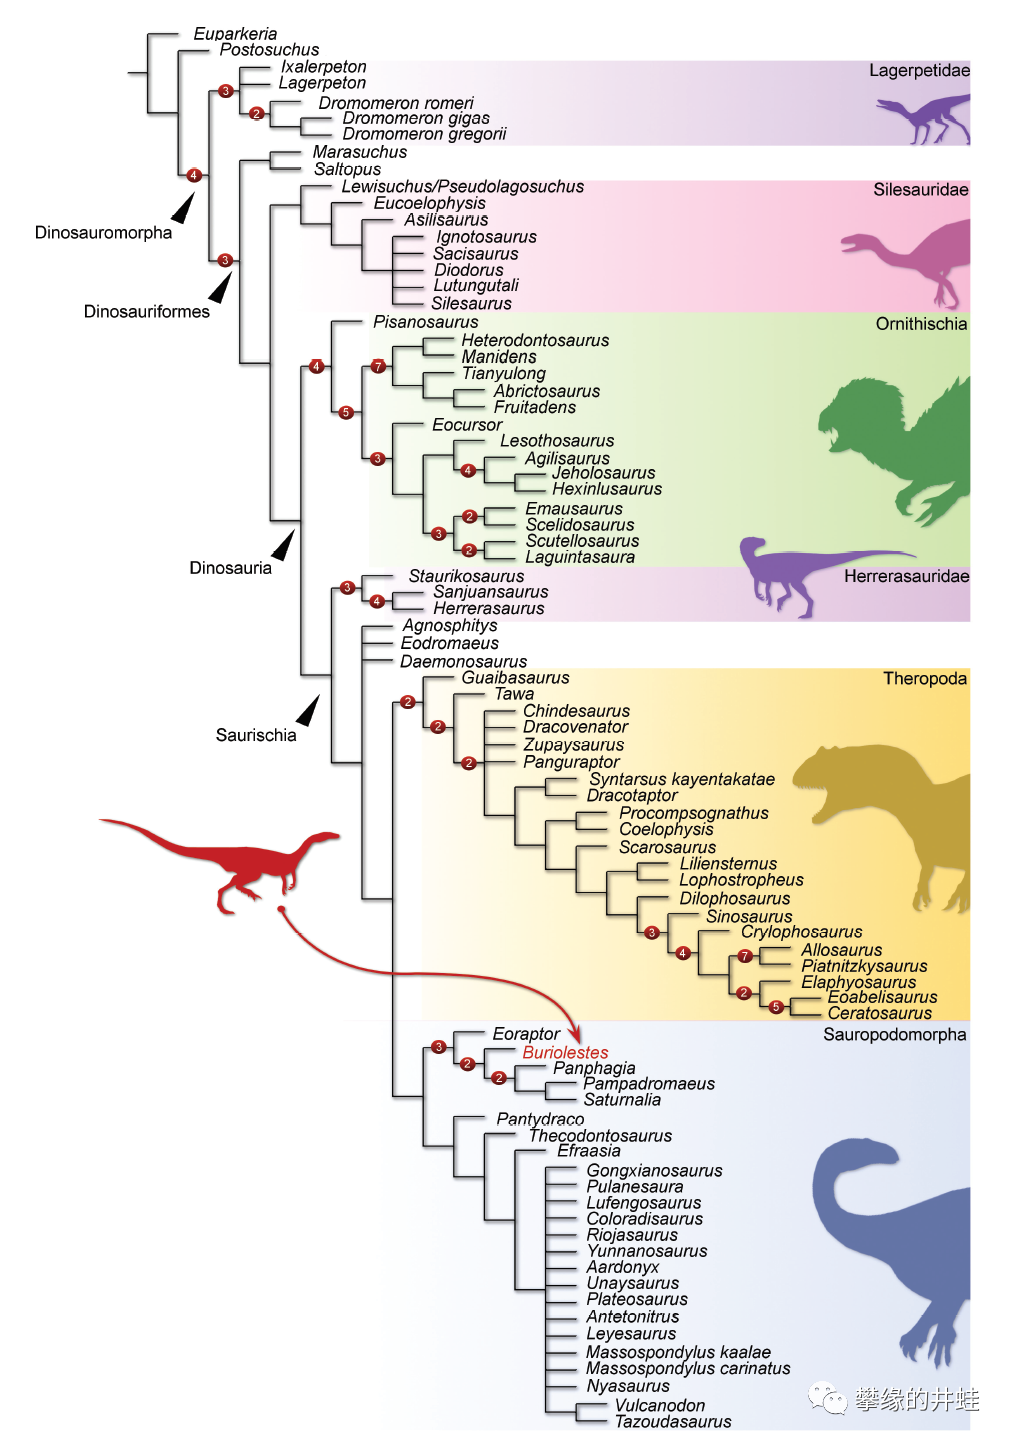
因为同时具备了轻量化的身体、强大的呼吸方式和先进的支撑结构,恐龙最终成长为超级巨兽,达到了陆生动物体型的巅峰。无论是之前的假鳄类,还是后来的哺乳动物,全都望尘莫及。图片来源自[13]。
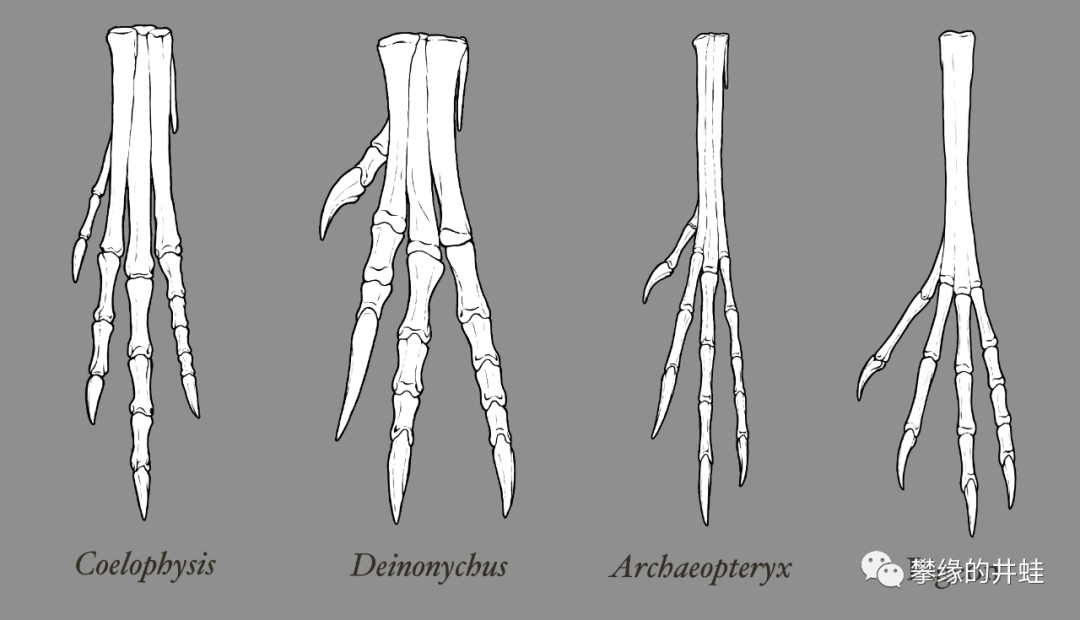
现存的恐龙——鸟类继承和发展了鸟跖类极简的足骨结构。它们的跖骨愈合一根棍子,足趾揸开。我们知道鸟类经常做出“金鸡独立”的动作,证明了这种“筷子腿”的支撑能力。奔跑能力嘛,去抓只走地鸡试试就知道了。上图从左到右:虚型龙
Coelophysis
,恐爪龙
Deinonychus
,始祖鸟
Archaeopteryx
,鸽子(额,好吧我反省一下)。图片来源自网络。
假鳄类和鸟跖类用不同的方式优化了足部结构,实现了双足行走。它们战胜了泛古大陆上的所有竞争者,把整个世界收入囊中。这些陆地、淡水和天空霸主们的故事,井蛙会分别开辟独立的系列来介绍。
最后,有请特别嘉宾:
Smok wawelski
,一般翻译成“龙鳄”,其实叫它“史矛革”也未为不可。龙鳄生活在晚三叠世诺利期到瑞替期,化石发现于波兰利索维斯(Lisowice)地区。
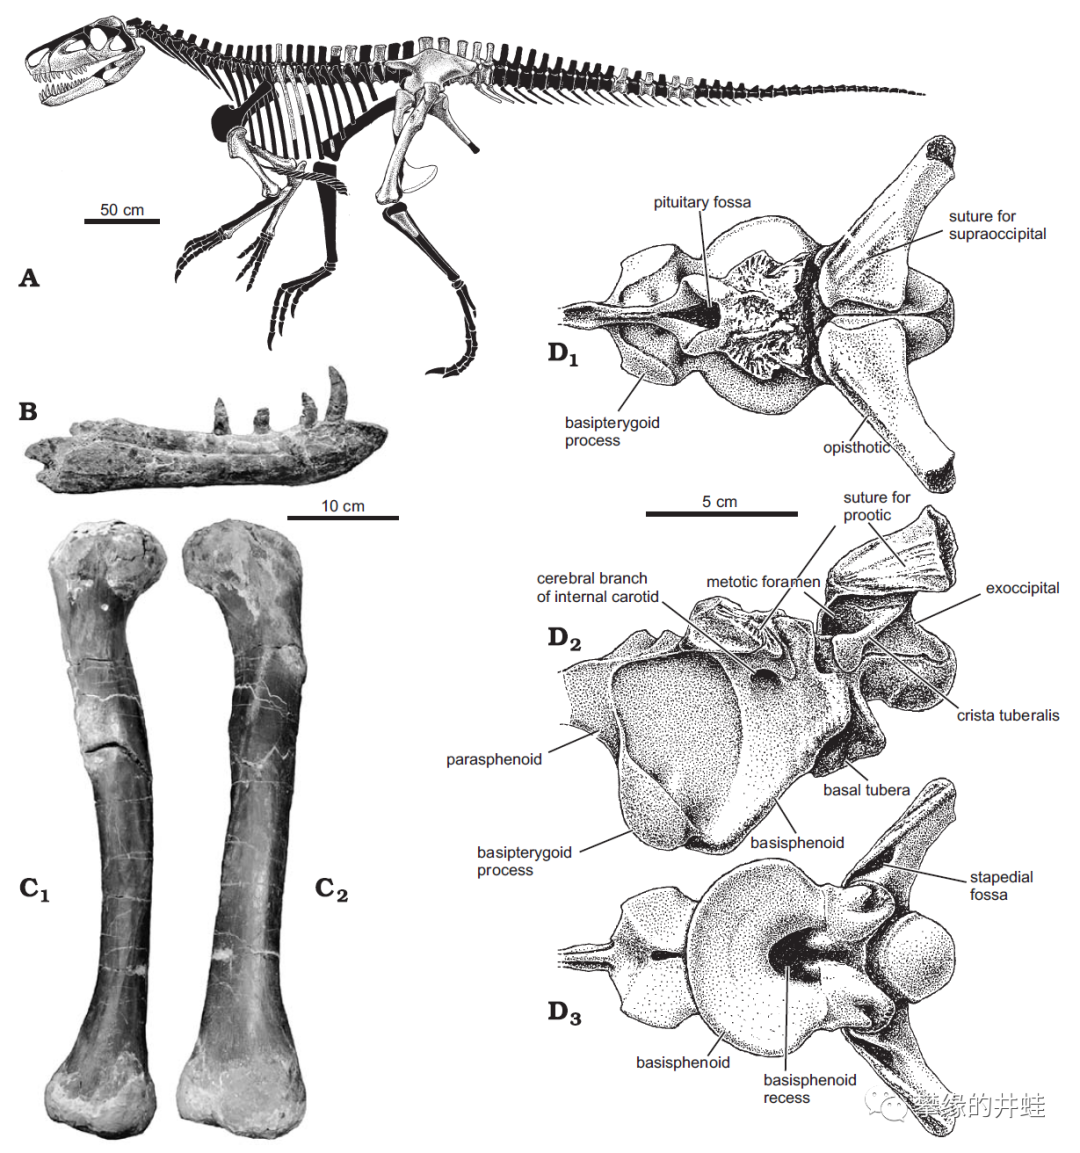
根据目前化石资料,龙鳄是一种5~6米的大型掠食动物。它是双足行走的,但没有找到足部化石,于是我们不知道龙鳄究竟是长着大脚后跟的假鳄类(劳氏鳄类Rauisuchia),还是没有脚后跟的鸟跖类(兽脚类恐龙Theropoda)。但它属于主龙类是确定无疑的——非常适合来为本回,也为【九龙颂】系列收尾。图片来源自[14]。
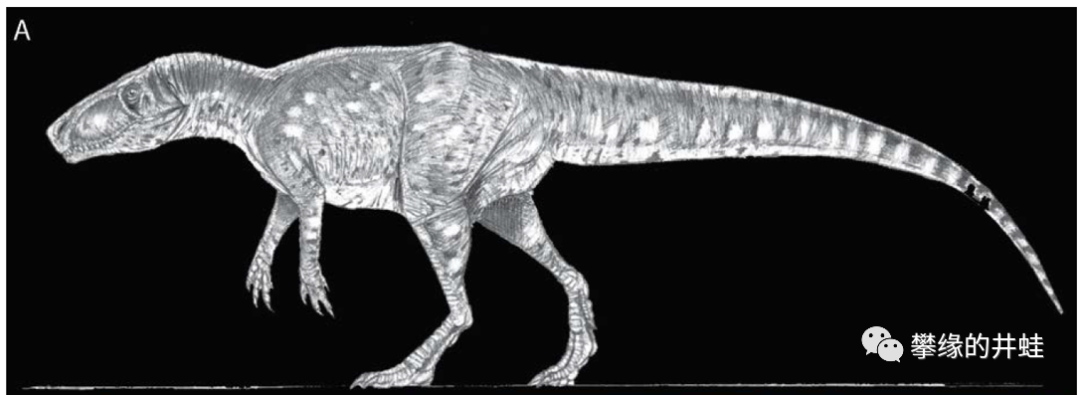
龙鳄的头骨长50~60厘米,有粗壮的颌骨和巨大锋利的牙齿,前肢细小,后肢粗壮,外形很容易让人联想到微缩版的霸王龙。上面的复原图也把龙鳄画成了兽脚类恐龙的样子(没有脚后跟),但其实它也可能是像波波龙那样踩着脚后跟走路的。图片来源自[15]。
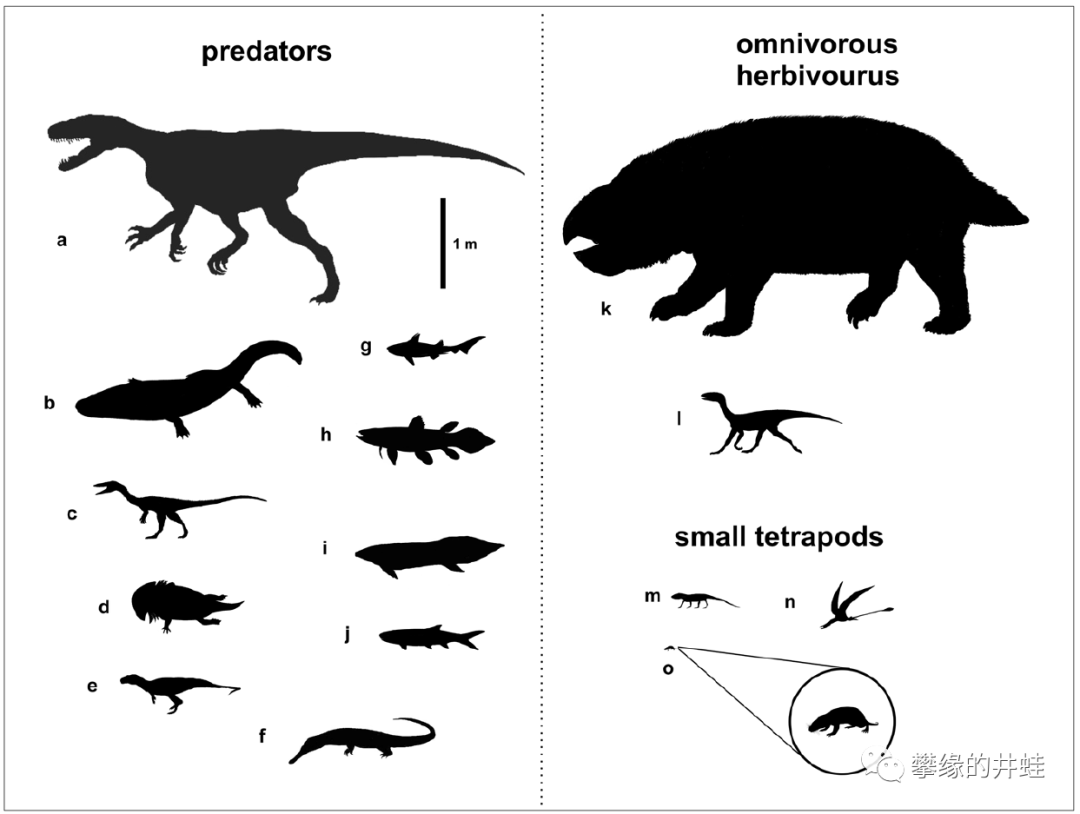
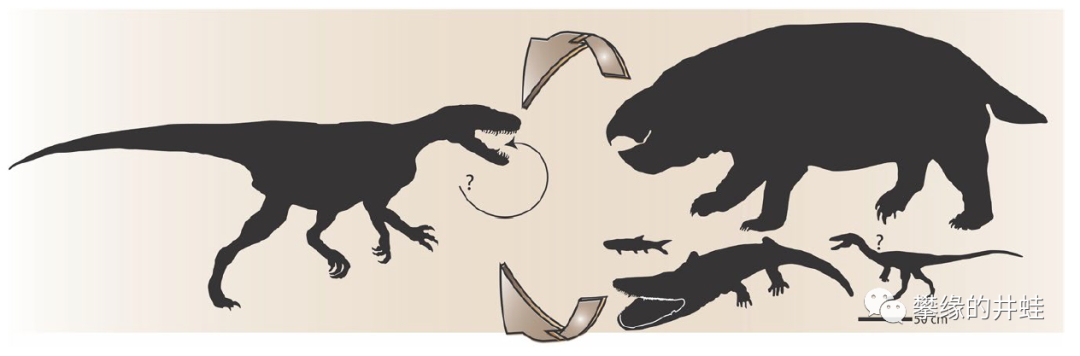
在龙鳄生存的年代,它毫无争议地统治着那片领域。鲨鱼、肺鱼、离片椎类两栖动物、其他主龙类,甚至连巨大的利索维斯兽(参见第二百五十四回百兽图8:鼎肉烝豚)都难逃沦为龙鳄猎物的命运。唯一可能击败龙鳄的,只有另一头龙鳄。图片来源自[16]。
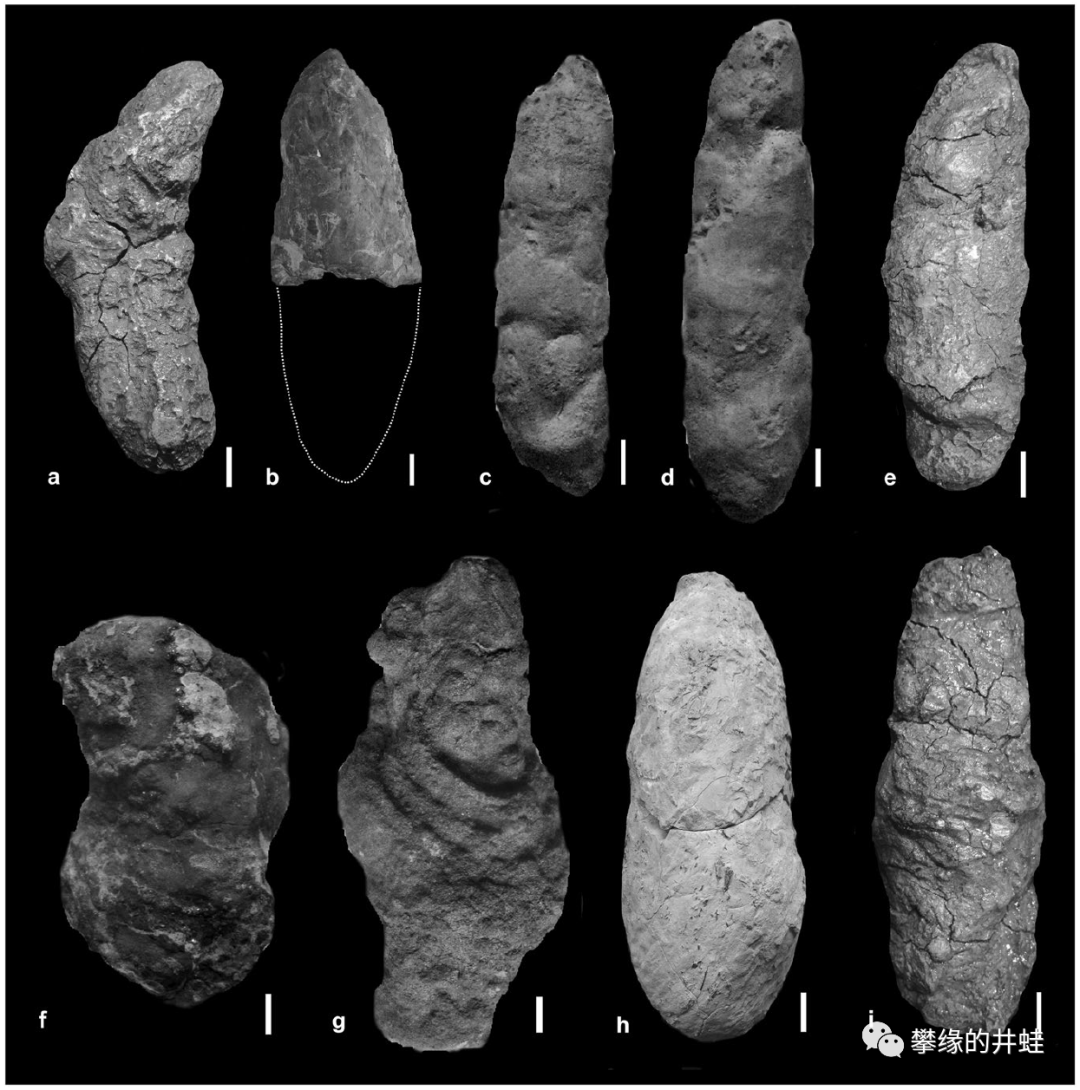
在利索维斯发现了许多龙鳄粪便化石,有些长度达到16厘米。我们虽然不知道龙鳄的分类地位,但对它会吃什么了解得很清楚。图片来源自[16],标尺长度1厘米。
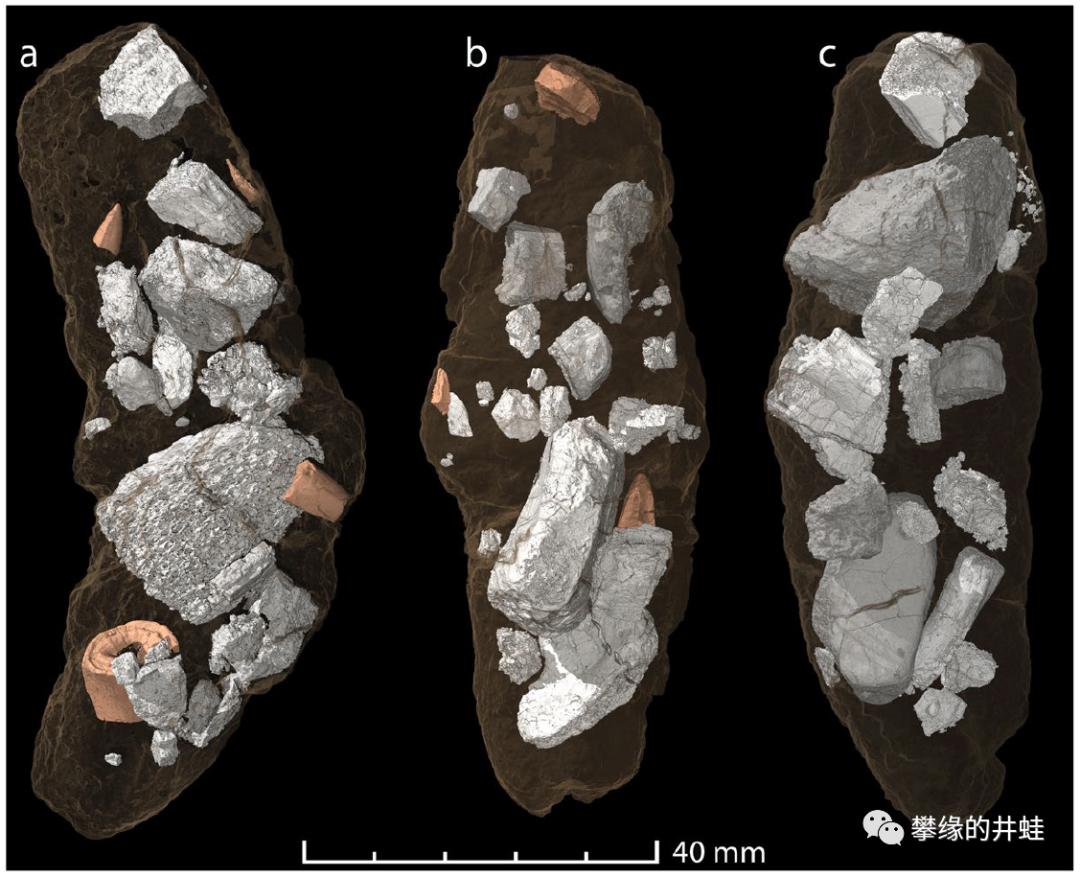
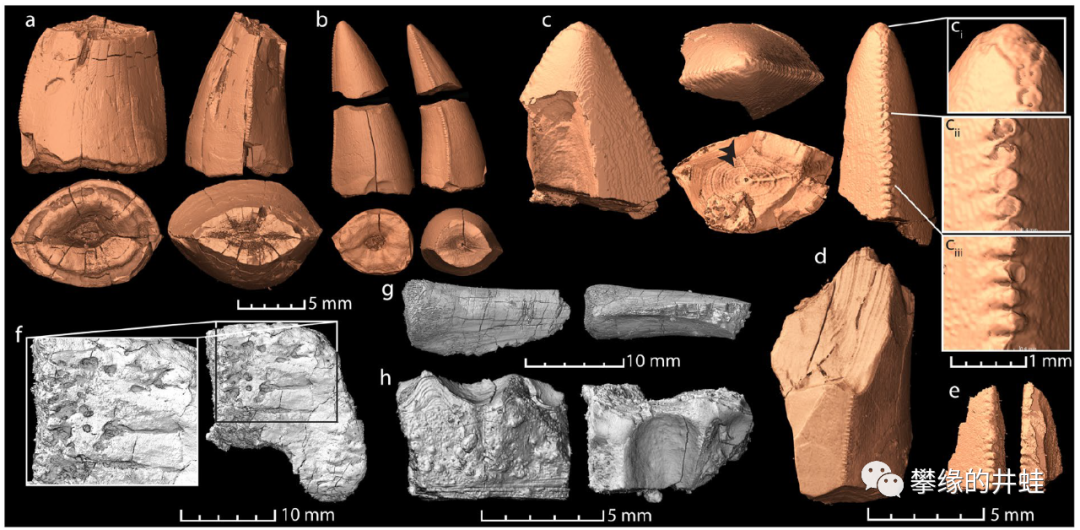
通过扫描,研究者在龙鳄的粪便中找到了破碎的猎物骨骼和牙齿。
这证明了龙鳄惊人的咬合力,贪婪的秉性,以及丝毫不挑食的好胃口。
被龙鳄清理过的尸体,应该什么都不会剩下。
图片来源自[16]。
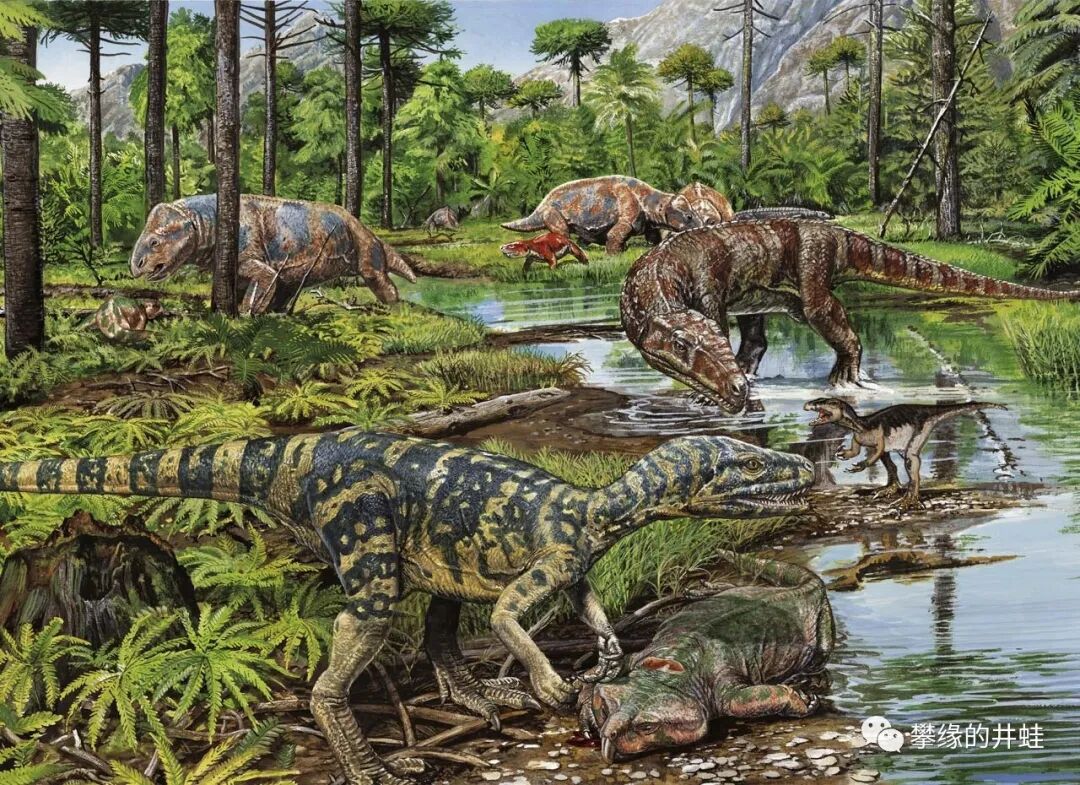
至此,一个波澜壮阔的新时代已经成形。被命运选中的龙族们将谱写生命演化史上最绚烂的篇章。图片来源自网络。
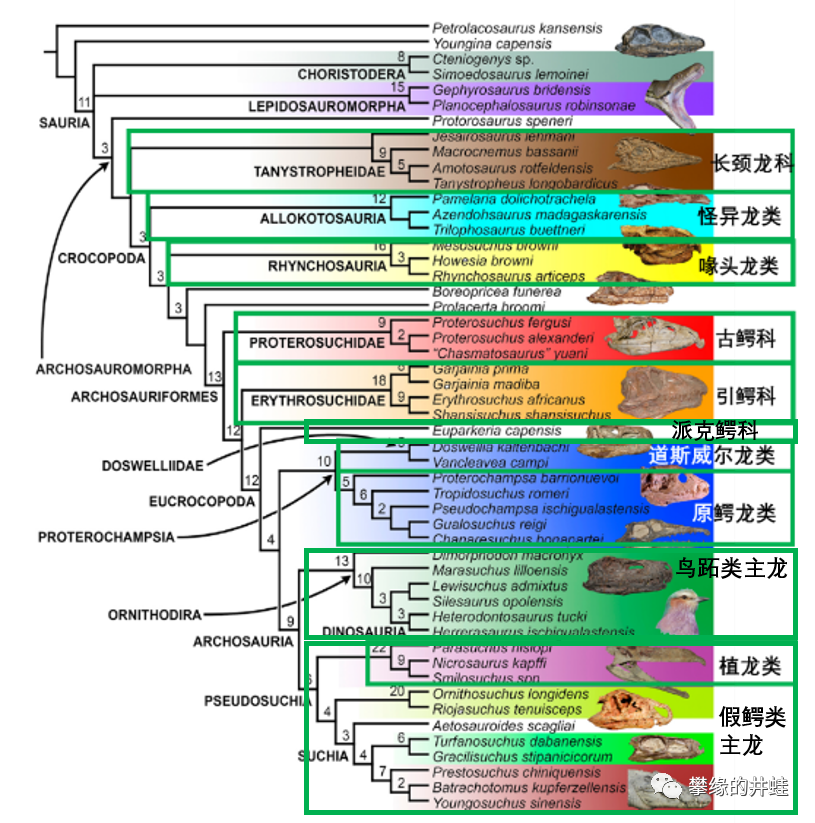
拖了这么久,这张图里所有主龙形态类的主要类群基本介绍完了。
图片来源自[
17]。
关于假鳄类、翼龙、恐龙、鸟类的演化历程,只能留待后文分解了。
地球名片
生物分类:动物界-脊索动物门-脊椎动物亚门-羊膜类-蜥形纲-双孔类-龙形类-主龙形态类-主龙形类-派克鳄科
存在时间:早三叠世 至 中三叠世
现存种类:无
化石种类:6种
生活环境:陆地
代表特征:中小型肉食动物,结构接近主龙类,可短时双足站立和奔跑
主要属种:派克鳄,欧斯莫斯卡鳄,
Dorosuchus neoetus
,择义王氏鳄,侨家梁哈拉寨鳄, “沙圪堵吐鲁番鳄”
参考文献:
[1] ROLAND B. SOOKIAS, RICHARD J. BUTLER, Euparkeriidae.Geological Society, London, Special Publications published online, 2013, doi:10.1144/SP379.6
[2] Oliver E. Demuth, Emily J.Rayfield, John R. Hutchinson, 3D hindlimb joint mobility of the stem‑archosaur Euparkeria capensis with implications for posturalevolution within Archosauria. Scientific Reports, 10: 15357, 2020, doi: 10.1038/s41598-020-70175-y
[3] ROLAND B. SOOKIAS, ANDREY G.SENNIKOV, DAVID J. GOWER, et al., THE MONOPHYLY OF EUPARKERIIDAE (REPTILIA: ARCHOSAURIFORMES)AND THE ORIGINS OF ARCHOSAURIA: A REVISION OF DOROSUCHUS NEOETUS FROM THEMID-TRIASSIC OF RUSSIA. Palaeontology, Vol. 57, Part 6, pp. 1177–1202, 2015, doi:10.1111/pala.12110
[4] MAGDALENA BORSUK
−
BIA
Ł
YNICKA, SUSAN E. EVANS, Abasal archosauriform from the Early Triassic of Poland. Acta PalaeontologicaPolonica, 48(4): 649-652, 2003
[5] Sookias et al., Systematics ofputative euparkeriids (Diapsida: Archosauriformes) from the Triassic of China. PeerJ2: e658, 2014, DOI: 10.7717/peerj.658
[6] Sookias RB., The relationships of theEuparkeriidae and the rise of Archosauria. R. Soc. open sci., 3: 150674, 2016, Doi:10.1098/rsos.150674
[7] Paul C. Sereno, Basal Archosaurs: PhylogeneticRelationships and Functional Implications. Memoir (Society of VertebratePaleontology), Vol. 2, Basal Archosaurs:Phylogenetic Relationships andFunctional Implications, pp. 1-53, 1991
[8] Baczko, M. B. von, J. B. Desojo,D. Ponce., Postcranial anatomy and osteoderm histology of Riojasuchustenuisceps and a phylogenetic update on Ornithosuchidae (Archosauria,Pseudosuchia). Journal of Vertebrate Paleontology. 2020, DOI:10.1080/02724634.2019.1693396.
[9] EMMA R. SCHACHNER, RANDALL B.IRMIS, ADAM K. HUTTENLOCKER, et al., Osteology of the Late Triassic Bipedal ArchosaurPoposaurus gracilis (Archosauria: Pseudosuchia) from Western North America. THEANATOMICAL RECORD, 2019, DOI: 10.1002/ar.24298
[10] Sterling J. Nesbitt, Richard J.Butler, Martín D. Ezcurra, et al., The earliest bird-line archosaurs and theassembly of the dinosaur body plan. NATURE, VOL. 544, 2017, doi: 10.1038/nature22037
[11] Rodrigo Temp Müller, Astragalar anatomy of an early dinosaur from the UpperTriassic of southern Brazil. Article in Historical Biology, 2020, DOI:10.1080/08912963.2020.1814276
[12] Rodrigo T. Müller, José D. Ferreira, Flávio A. Pretto, et al., The endocranial anatomy of Buriolestesschultzi (Dinosauria: Saurischia) and the early evolution of brain tissues in sauropodomorphdinosaurs. Journal of Anatomy, 2020, DOI: 10.1111/joa.13350
[13] RODRIGO T. MULLER, MAX C.LANGER, MARIO BRONZATI, et al., Early evolution of sauropodomorphs: anatomy andphylogenetic relationships of a remarkably wellpreserved dinosaur from theUpper Triassic of southern Brazil. Zoological Journal of the Linnean Society, XX,1–62, 2018
[14] Nied
ź
wiedzki, G., Sulej, T., Dzik, J., A large predatory archosaur fromthe Late Triassic of Poland. Acta Palaeontologica Polonica, 57 (2): 267–276, 2012,doi: 10.4202/app.2010.0045
[15] M. Qvarnström, G.N. Nied
ź
wiedzki, P.E. Ahlberg, Contents of coprolites reveal feeding habitsof the Late Triassic archosaur Smok wawelski (Lisowice, Poland). Conference:2nd International Conference of Continental Ichnology, 2017
[16] Martin Qvarnström, Per E. Ahlberg,Grzegorz Nied
ź
wiedzki, Tyrannosaurid-likeosteophagy by a Triassic archosaur. Scientific Reports, 9: 925, 2019, doi: 10.1038/s41598-018-37540-4
[17] Martín D. Ezcurra, The phylogeneticrelationships of basal archosauromorphs, with an emphasis on the systematics ofproterosuchian archosauriforms. PeerJ 4: e1778, 2016, DOI 10.7717/peerj.1778
 攀缘的井蛙约 14 分钟