假如能向所有的动物提问:“登陆”和“下海”,到底哪个更困难?那收到的答复一定两极分化特别严重。
一众无脊椎动物肯定回答:当然是下海困难。屈指算来,从志留纪到泥盆纪,动物曾经掀起过一波登陆高潮。就算是在石炭纪之后,也有诸如潮虫(节肢动物门,参见第二百八回 姗姗来迟)、钩虾(参见第二百七十二回 嘁,虫子),一些蜗牛(软体动物门),少数陆生纽虫(纽形动物门)和陆生涡虫(扁形动物门)之类不断登陆。只不过陆地开拓者的“红利期”已过,生态位紧张。这些后来者,基本上也就是偷偷摸摸润过来吃土捡垃圾的货色。
至于“下海”,井蛙这里缩窄一下“下海”的范围:即像绝大多数鱼类和海洋无脊椎动物一样,营浮游、游泳或者底栖生活,完全融入水下的生态系统。诸如海蝽、海黾(参见第二百七十回
六足传奇12:漱石枕流)这些所谓的“海洋昆虫”,井蛙并不认为它们是真正意义上的“下海”。如果按这个标准的话,在井蛙的印象中,自从陆生动物诞生直到现在,无脊椎动物似乎就没有下海成功的例子。如果有错误欢迎大家指正。
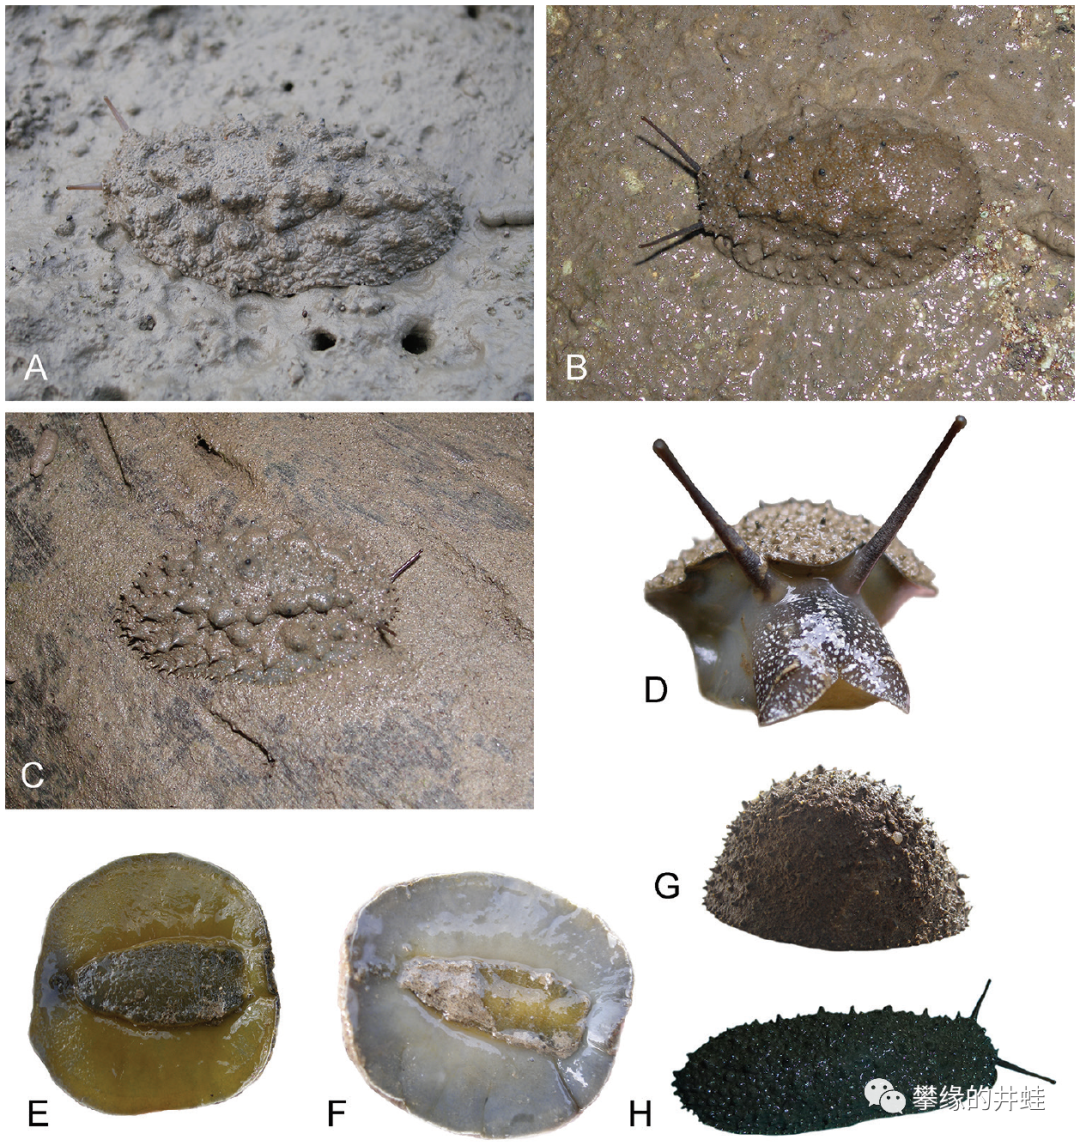
我总觉得石磺(一类缩眼目蛞蝓,上图为东南亚热带沿海广布的香蒲石磺
Onchidium
typhae
)是目前已知最接近“下海成功”的无脊椎动物。它们已经非常努力地朝着海鲜发展了。嗯,不错,加油!祝早日成功。图片来源自[1] 。
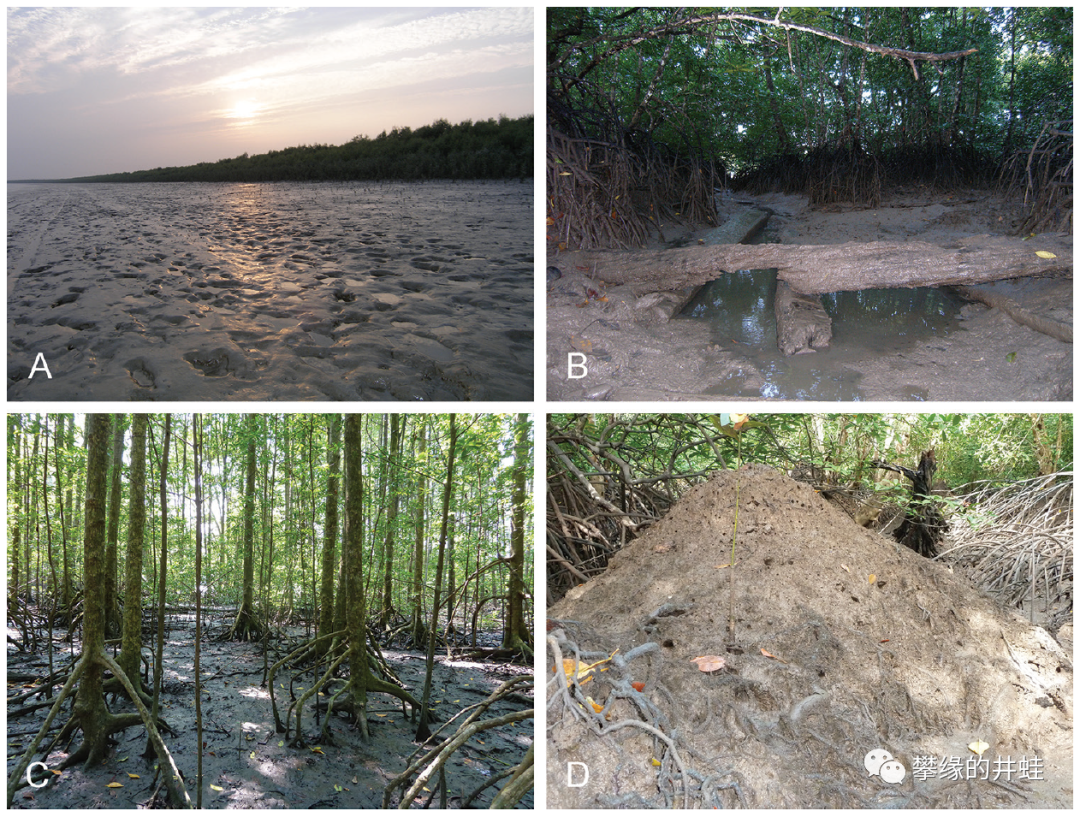
石磺的栖息环境,包括沿海的滩涂和红树林。这种地方还能找到很多半陆栖的海螺和半下海的陆贝(比如耳螺科Ellobiidae的种类)。腹足类真的特别擅长在水陆两界反复横跳。图片来源自[1]。
但是对羊膜动物(龙兽两族)来说,“下海”似乎又成了一件轻而易举的事。随便想想,都能说出一串海爬、海兽的名字,而且还全都占据食物链的高位,属于一言不合就“杀进去夺了鸟位”的狠角色。
也许无脊椎动物下海失利,主要吃亏在体型太小。体型小意味着更容易被水下的天敌捕食。体型小意味着更容易被水的表面张力排斥在外(想象一下在水面爬行的昆虫和蜘蛛)——沉都沉不下去你还下个毛的海。就算成功潜入水下,体型小还意味着难以在粘稠的液体中自由活动(想象一下在水里挣扎的苍蝇)。
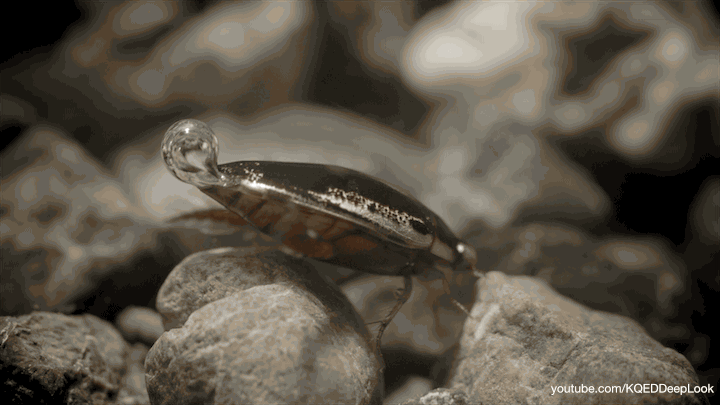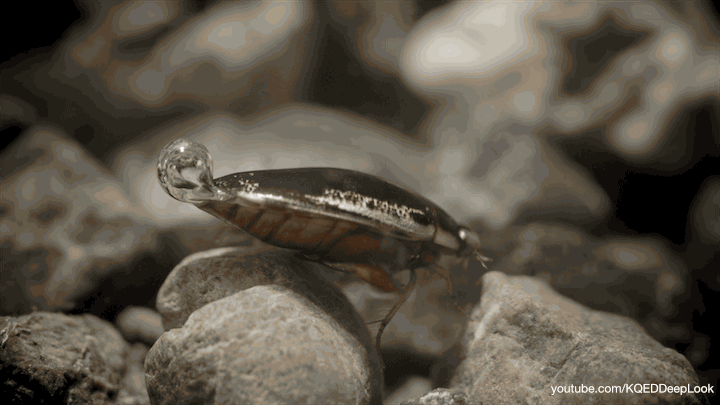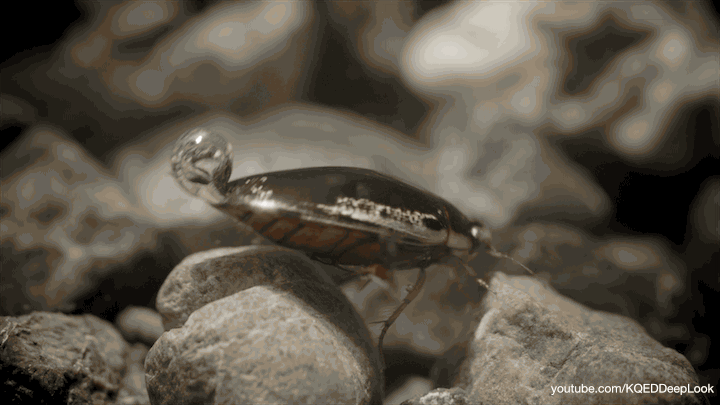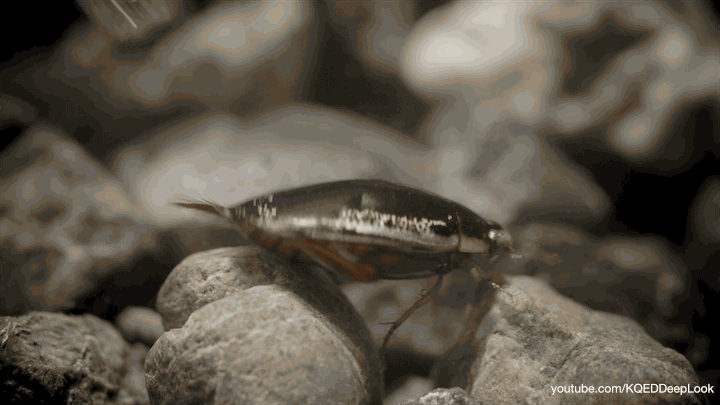
就算是水性比较好的昆虫,游泳起来也很吃力,一个小小的气泡就能让它们东倒西歪。很难想象它们在波涛汹涌的海洋活动。图片来源自网络。
那先增大体型再下海呢?——一众脊椎动物:“还有这种好事?”——好吧算我没说。
相比之下,羊膜动物就方便多了:体型大力量强,普通的小型水族也威胁不到它们。
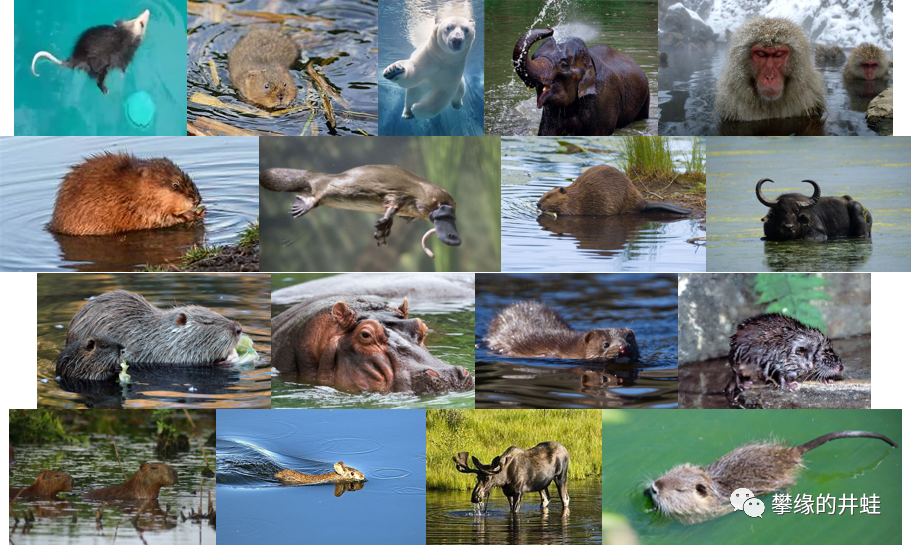
就算是耗子那么大的羊膜动物,横渡个小河什么的也根本不是问题。就这,能让和表面张力搏斗的昆虫和蠕形动物嫉妒死。图片来源自网络。
初中化学的知识:氧气难溶于水。20摄氏度标准大气压(含21%氧气)下,每升水可以溶解大约9毫克氧气。自然水体受水温、深度、海拔、流速、溶解成分以及生物活动的影响,溶解氧基本上也在这个数值上下波动。而每升空气中(当然是低海拔地区)含有差不多280毫克氧气,是水中的30倍以上。更重要的是,氧气在空气中的扩散速度是在水中的3百万倍以上[2]。
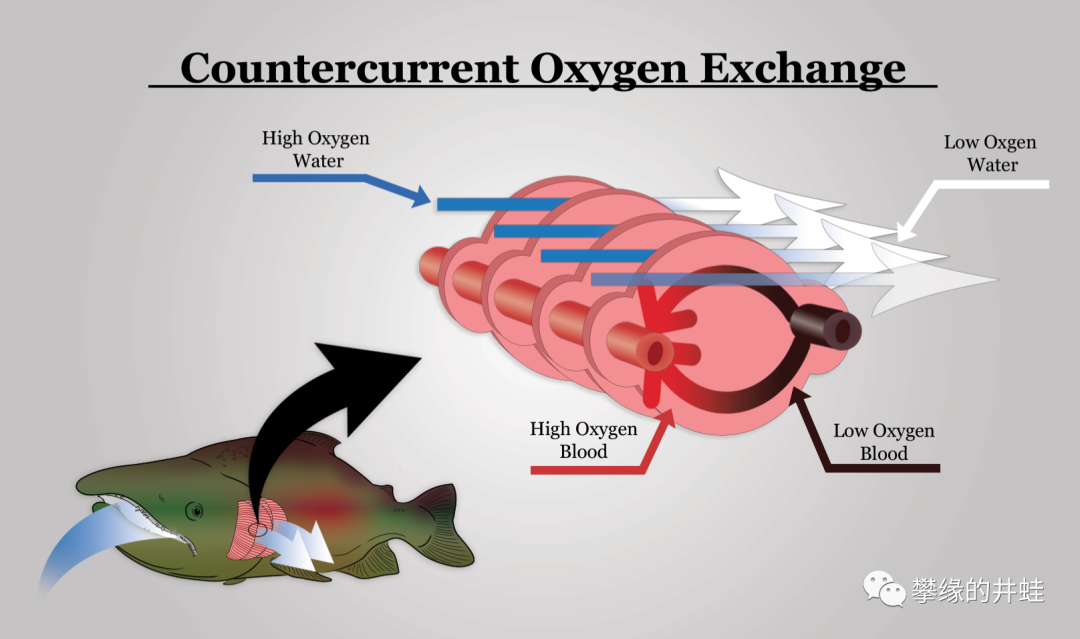
由于氧气只能通过自由扩散的方式进入细胞,因此在水中呼吸溶解氧的动物,它们血液(或体液)含氧量的理论上限就是水中的溶解氧含量。鱼类演化出逆流氧交换(Countercurrent Oxygen Exchange),拼命把血氧含量逼近这个极限。图片来源自网络。
羊膜动物可以轻易地在血液中灌注更多的氧。以人类为例,正常情况下每升动脉血携带氧气280毫克左右,每升静脉血约120毫克。如此充沛的血氧供应,可以驱动更大规模、更高效率的生化反应,供养能耗超高的肌肉和大脑,在体温、速度、耐力、智力全面超越用鳃呼吸的海洋原住民。
当然,仅凭代谢效率的优势还不足以让羊膜动物的入海征途一帆风顺,它们还必须改造身体结构使其更适合水中生活。套用武侠小说设定的话,就是再浑厚的“内力”,也要配合“招式”才能发挥威力。龙兽两族在石炭纪出现,但直到三叠纪才下海成功,恐怕正是身体的水栖化改造进程遭遇了挫折。
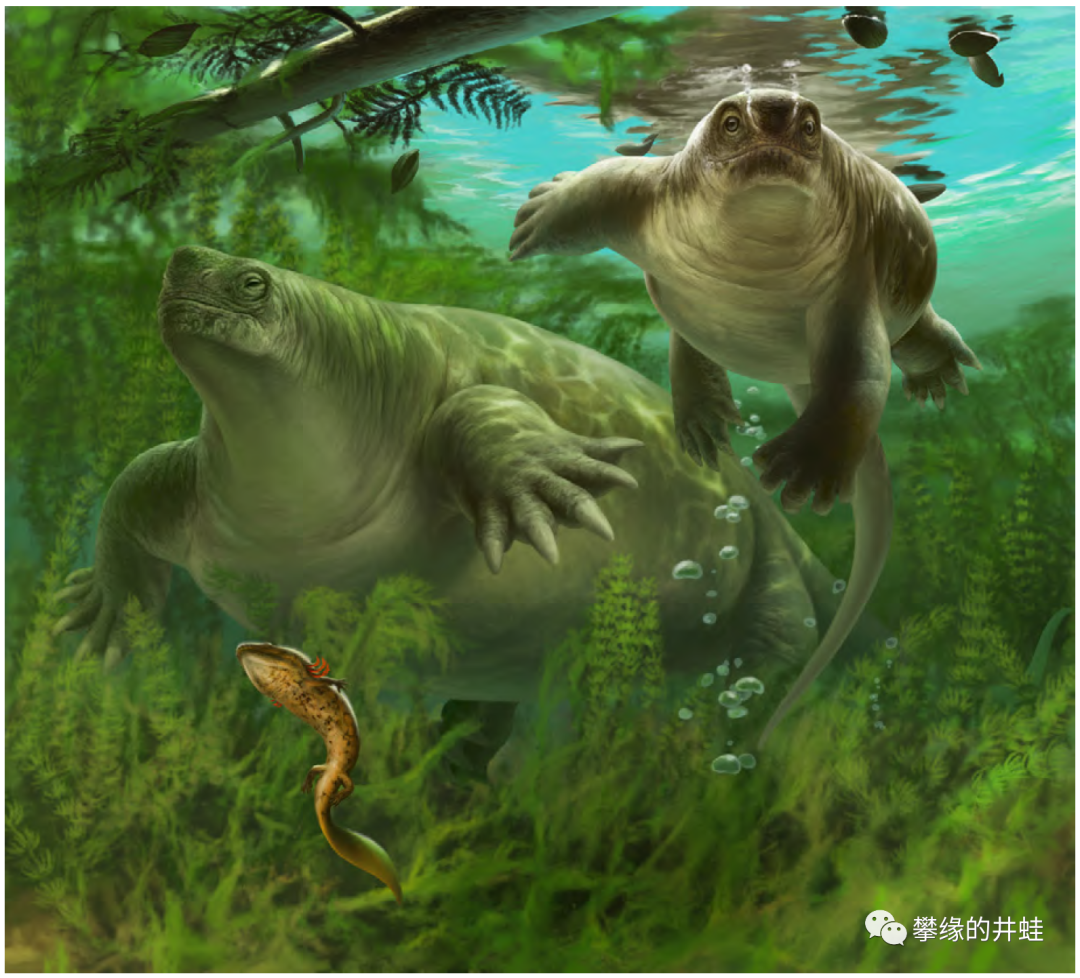
早期合弓纲也有不少物种进入半水栖生活,比如许多卡色龙亚目的成员(参见第二百一回 百兽图2:大脚)。法国洛代夫盆地(Lodève Basin)新发现的中二叠世卡色龙类
Lalieudorhynchus
gandi
很可能整天泡在水里。这些4米长的大家伙基本上就是那个时代的河马,并且似乎在朝着另一个版本的斯特拉巨儒艮发展。图片来源自[3]。
合弓纲在中生代的遭遇大家都是知道的,兽族的下海自然也被延迟了2亿2000万年。本回我们来复盘一下蜥形纲的下海历程。
一般来说,羊膜动物愿意靠近海洋,最大的可能是被食物吸引。那些被海水冲到岸边的“大自然的馈赠”,就是最好的诱饵。今天,在一些爬行动物身上,还能依稀看到下海先驱们的影子。
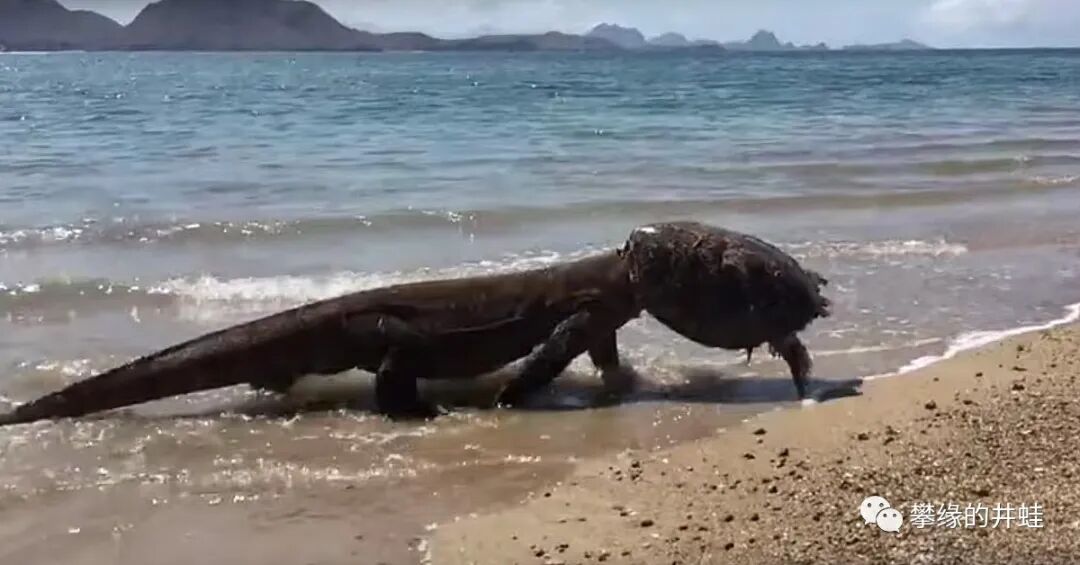
一头科摩多巨蜥
Varanus komodoensis
正在啃食被海水冲上岸的海龟尸体。一亿年前,它的一支近亲很可能就是受到同样的诱惑而涉足海洋,最终成为不朽的传奇。图片来源自网络。
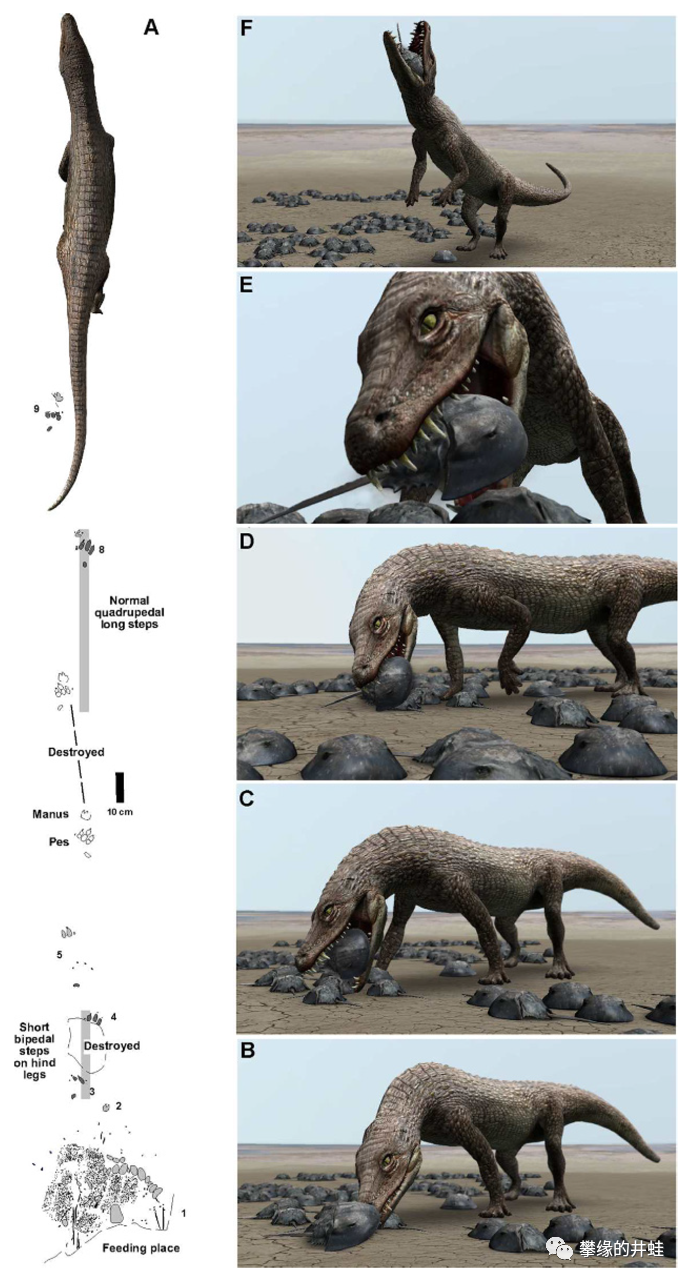
日耳曼盆地(Germanic Basin)发现的中三叠世足迹化石可以帮助我们想象远古动物是怎样赶海的:一头大型主龙类在海边漫步,顺便吃掉了几只聚集在此地产卵的鲎。图片来源自[4]。
常在海边走,哪有不湿身。远古的赶海者们为了追捕猎物,或者逃避掠食者的攻击,大约本来有时也未免要涉水游泳,从而和海洋有了越来越多的接触。
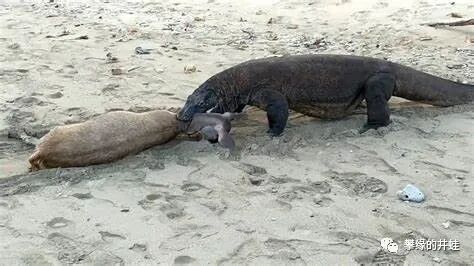
这是个很好的例子:一头小鹿跳进海里想要从科摩多巨蜥的口中逃生,但科摩多巨蜥紧跟着追到海中,在水中成功击杀猎物,拖到岸边。图片来源自网络。
如果羊膜动物在水下找到了稳定的食物来源,那它们自然愿意花上更多的时间呆在水里。考虑到此时羊膜动物的水下感官和运动能力都比较弱,最容易获得的食物大概率是大型藻类,以及行动迟缓的底栖小动物,比如腹足类、甲壳类和棘皮动物等等。
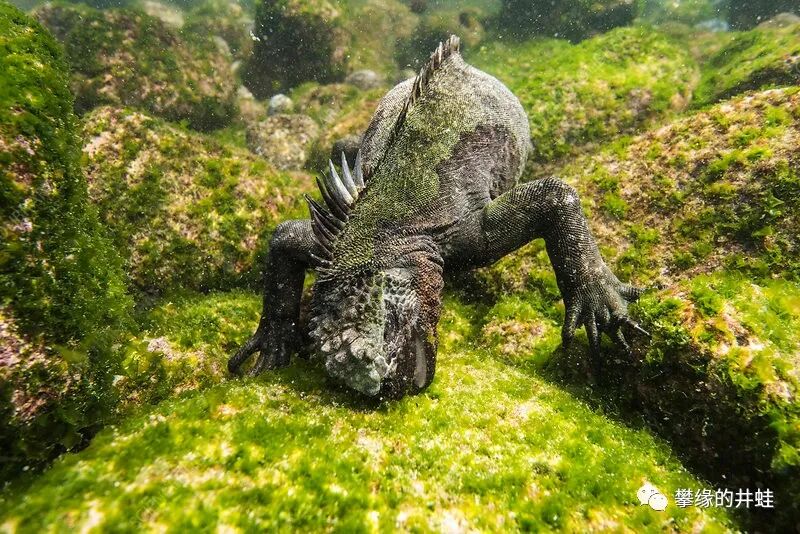
正在啃食海藻的加拉帕戈斯海鬣蜥
Amblyrhynchus cristatus
。可能比较接近初试下水的早期海爬的生态。图片来源自网络。
这个阶段的“准海爬”身体结构水栖化程度不高,仍然保留着在陆地上运动和取食的能力。但是从它们偏离陆地生态位的那一刻起,就基本可以肯定没有回头路可走了。
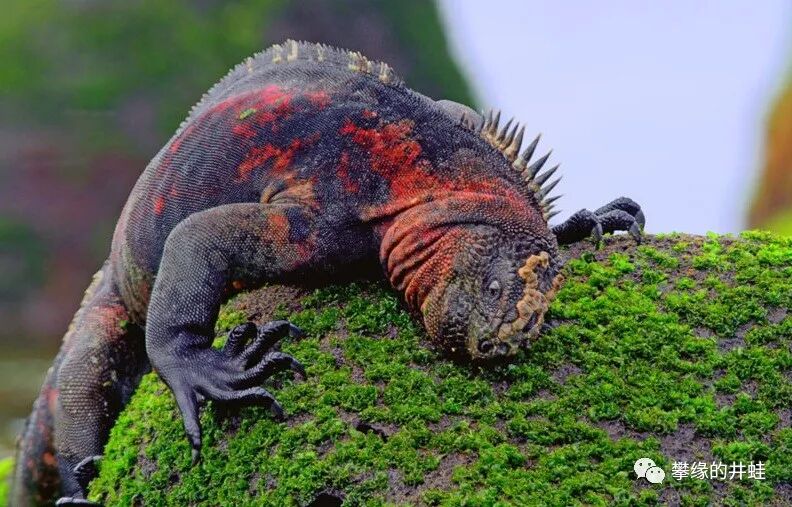
海鬣蜥也不是非要到海里才能进食,它们完全可以取食露出海面的礁石上附着的藻类。只是因为蜥口众多,把近处的海藻啃秃了,才不得不深潜水下。图片来源自网络。
以海鬣蜥为例:它们的祖先是某种被困在岛上的原始陆生鬣蜥。大约450万年前[5],也许是因为食物短缺竞争激烈,一部分原始鬣蜥迁移到海岸线附近取食海藻,逐渐演化成今天的海鬣蜥。始终在陆地生活的原始鬣蜥后代则演化成今天的加拉帕戈斯陆鬣蜥(
Conolophus
属的三个种)。
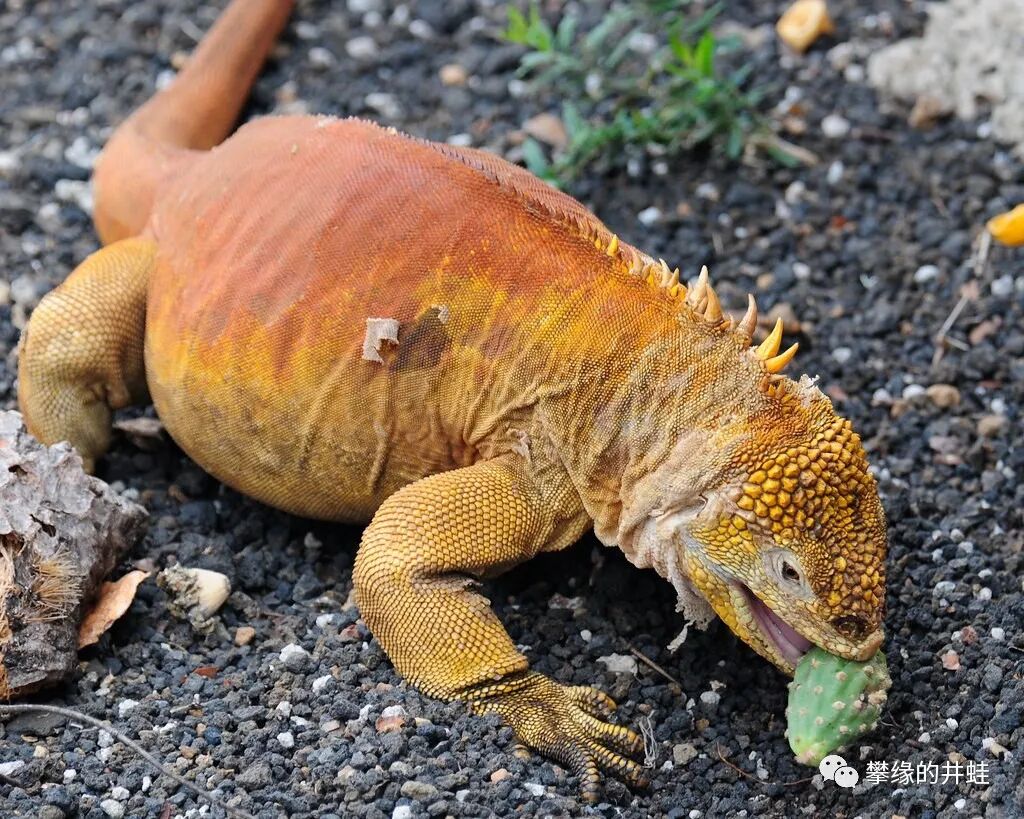
一种加拉帕戈斯陆鬣蜥
Conolophus subcristatus
正在啃食仙人掌。它的外形和习性应该比较接近450万年前海鬣蜥和陆鬣蜥的共同祖先,并直接继承了祖先的生态位。图片来源自网络。
假如(只是假设啊)陆鬣蜥消失,海鬣蜥种群倒是可能会重新分化出取食陆地植物,不再下海的“新陆鬣蜥”。但只要陆鬣蜥存在,就会牢牢把持着这个生态位。海鬣蜥就只能挤在岸边啃海藻,要走回头路几乎是不可能的。
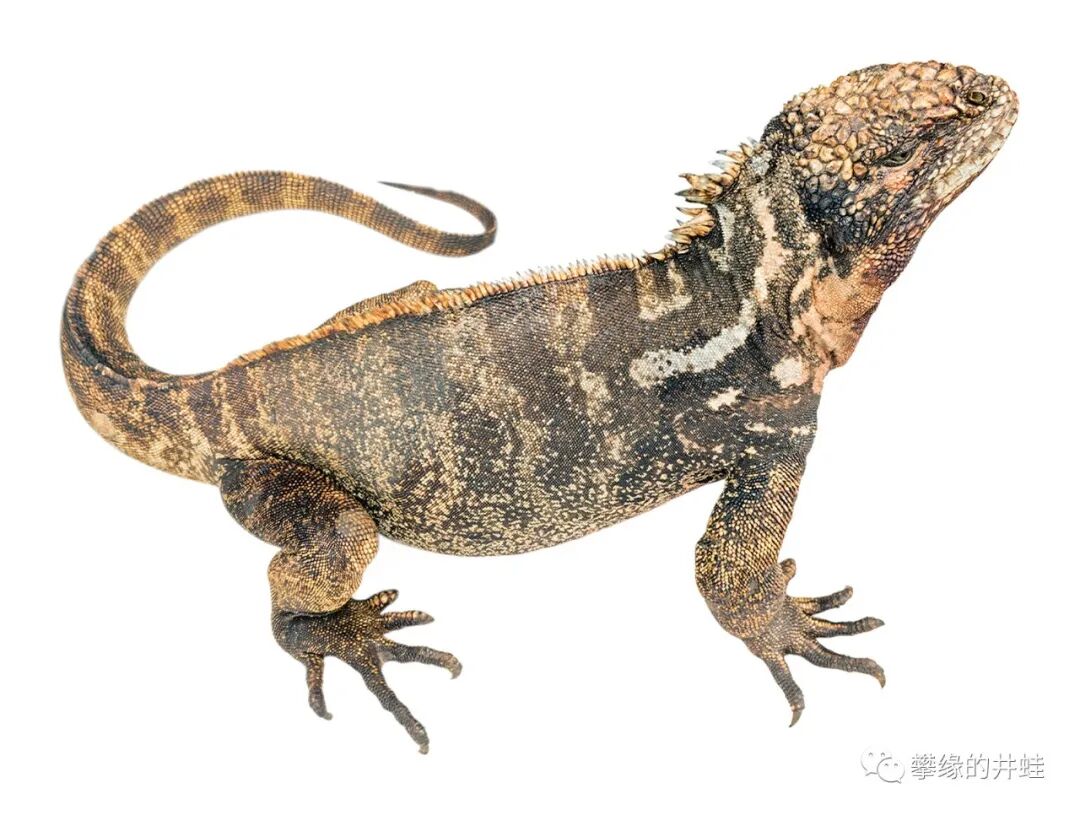
有趣的是,在自然条件下,有时海鬣蜥和陆鬣蜥会杂交并生下后代(上图为雄性杂交鬣蜥)。杂交鬣蜥既可以吃陆生植物,也会吃岩石上的海藻。一般认为这些杂交鬣蜥是不能繁殖后代的。图片来源自[6]。
那么,继续向海洋发展,如何呢?这当然不容易。否则海爬早在二叠纪就应该大量出现了。
“准海爬”们要进一步改造身体,提高水栖化的程度,至少还需要符合流体力学的身体、尾鳍和桨状肢作为推进器、鼻孔移到头顶、进一步提高血氧含量、侦测和追踪猎物的水下感觉、猎捕光滑猎物或者磨碎硬壳的特殊牙齿,等等。要一代代地积累有益变异,就必须有足够的食物和栖息地来支持种群稳定繁衍和持续发展。这个过程是很容易被打断的。
久居海洋的软骨鱼类和硬骨鱼类可以半渡而击,凭借数亿年雕琢出的感官、速度、灵活性和繁殖效率,抢占资源,甚至直接捕食游动笨拙的“准海爬”,阻止来自陆地的竞争者进一步涉足海洋。
于是“准海爬”就被困入了很尴尬的境地:原本的陆地生态位被没有下海的近亲瓜分,又得不到足够的资源,无法开拓更多的海洋生态位。从化石结构上看,二叠纪的齐椎蜥
Spinoaequalis schultzei
、霍瓦蜥
Hovasaurus
boulei
和克劳迪欧蜥
Claudiosaurus germaini
(参见第二百五回
水陆空V1.0)大体上处在“水栖化,但没有完全水栖化”的阶段,被卡在水陆之间的“势阱”中,直至灭绝。
二叠纪唯一突破了“准海爬”阶段的是中龙(参见第二百三十七回 偏师劲旅(中):死海魅影)。因为栖身盐湖,避开了和鱼类的竞争,中龙得以从容地演化出高度水栖的身体、专门捞取臀头虾的尖细牙齿,甚至还有水下分娩的能力,彻底告别陆地生活。
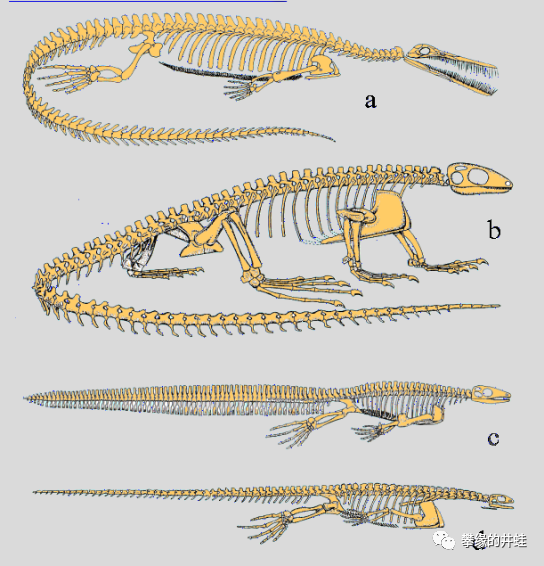
一些二叠纪蜥形纲的骨骼复原图。b为陆栖的沙地欧龙(
Thadeosaurus
)。c为霍瓦蜥(
Hovasaurus
);d为克劳迪欧蜥(
Claudiosaurus
),它们都是半水栖动物,骨骼结构和沙地欧龙接近。a为完全水栖的中龙(
Mesosaurus
),骨骼结构已经完全不同。图片来源自网络。
但狭小的盐湖又何尝不是另一个势阱。我曾经想象,如果有一场地质运动让中龙栖身的盐湖与海洋连通,已经完成水栖化改造的中龙能不能踏出盐湖,与鱼类正面争锋?当然这终究只是个假想。终二叠纪一世,无论蜥形纲还是合弓纲,都没能在碧波万顷之中找到自己的位置。
二叠纪末大灭绝让超过90%的海洋物种灰飞烟灭。位于食物链中高层的软骨鱼类几乎被扫荡一空,少数幸存者只能逃到深海苟且渡日。它们再也无法到近海巡游,阻击试图下海的羊膜动物了。4000万年间“半海爬”们难以逾越的“壁垒”,突然消失得无影无踪。更重要的是,在灾变期间和生态复苏过程中,生命力强繁殖迅速的藻类和无脊椎动物在浅海大量生长,不但成了“准海爬”们的救命粮;还吸引了更多饥肠辘辘的陆生蜥形类来到海边,加入“准海爬”的行列。如水银泻地般,大批海爬完成了躯体的水栖改造。前文说过,羊膜动物的呼吸效率远超鱼类。自此,雄厚的“内力”配上了凌厉的“招式”。羊膜动物下海的进程再也不可遏止。
对所有海爬和准海爬来说,首先要解决的问题就是怎样在水中运动。对此,配备“蜥蜴形”身体的海爬先驱开发出两种泳姿:
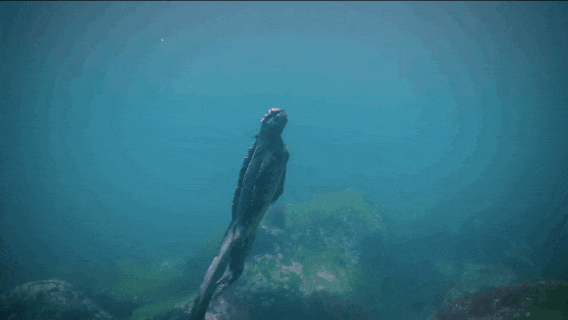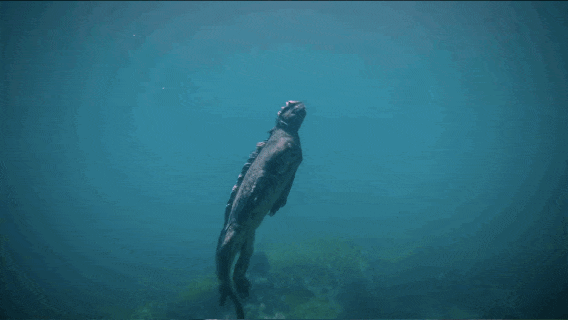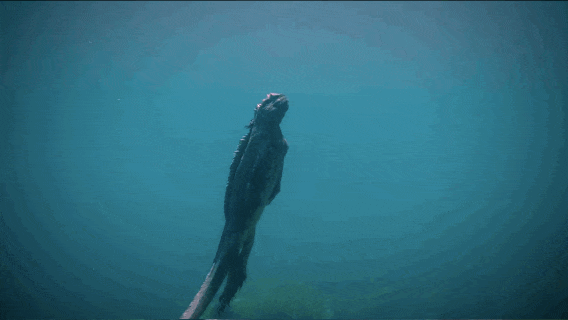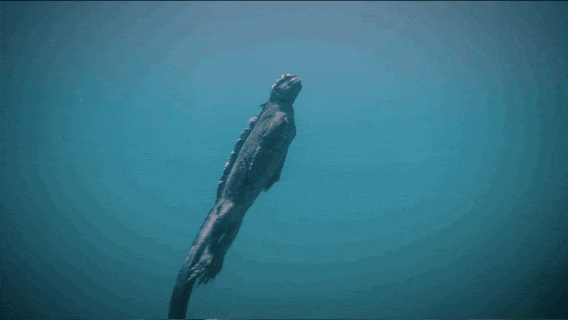
就像海鬣蜥这样。井蛙称其为“摆尾派”。图片来源自网络。
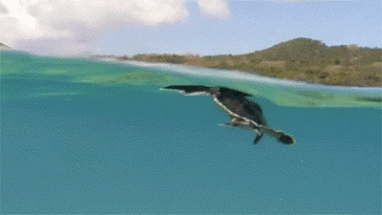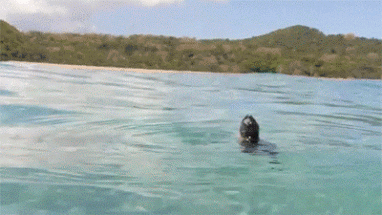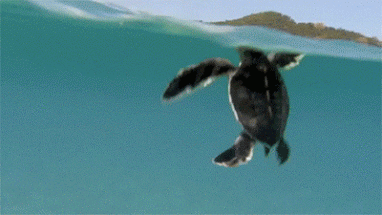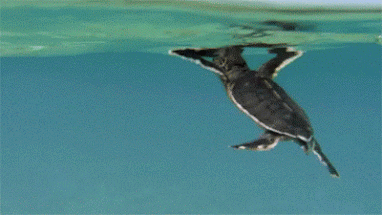
有点像海龟这样。井蛙称其为“蹬腿派”。图片来源自网络
。
不同的游泳姿势决定了未来的演化路线。大多数海爬类群可以归入“摆尾派”,沿着这条路线继续发展,它们的身体会越来越趋近“鱼形”:以发达的尾作为主推进器官,甚至演化出类似“尾鳍”的结构;四肢退化成类似“胸鳍”和“腹鳍”的结构,起调整方向、保持平衡或者辅助交配之类的作用。
“蹬腿派”的海爬相对较少。它们皆以宽大的桨状肢为主要推进器,尾部不同程度地退化。躯干不需扭动,逐渐变得宽扁而僵直,或者干脆包裹骨甲变成个盒子——也许可以称为“龟形”或者“泛龟形”吧。
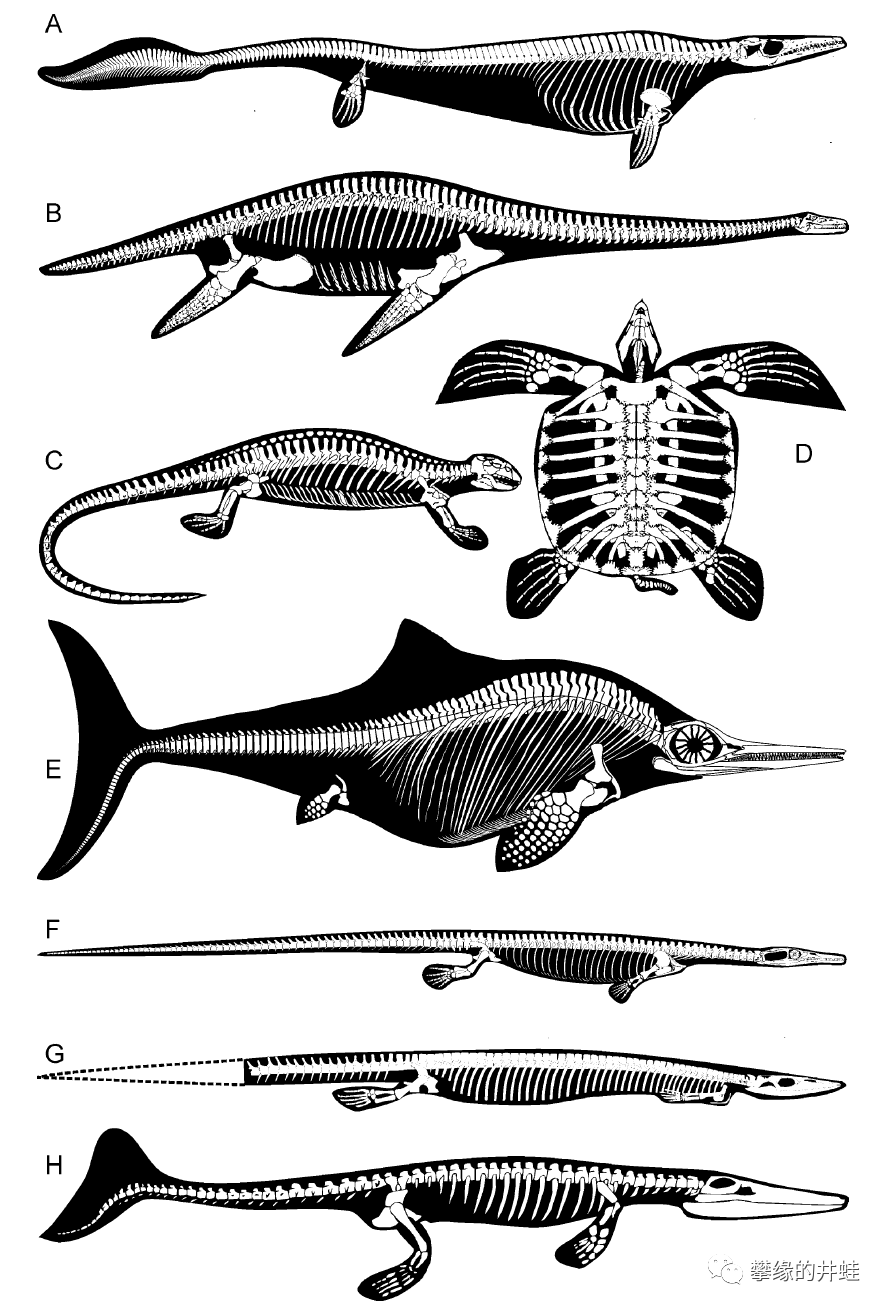
一些中生代海爬的骨骼和形体简图。A:浮龙
Plotosaurus
(沧龙类);B:海鳗龙
Muraenosaurus
(蛇颈龙类);C:楯齿龙
Placodus
(楯齿龙类);D:古巨龟
Archelon
(龟鳖类);E:大眼鱼龙
Ophthalmosaurus
(鱼龙类);F:阿氏开普吐龙
Askeptosaurus
(海龙目);G:腹躯龙
Pleurosaurus
(喙头目);H:地蜥鳄
Metriorhynchus
(海鳄类)。哪些是鱼形的摆尾派,哪些是龟形的蹬腿派,一目了然。图片来源自[7]。
这两种体型各有所长:“鱼形”身体更加紧凑,受到的阻力小,非常适合高速冲刺。“泛龟形”身体速度稍逊,但可以通过调整四个桨状肢的力度和角度,轻松实现变速和转向,灵活性更高。“鱼形”被鱼龙类推到极致;“泛龟形”则以鳍龙类为顶峰。中生代海爬的故事,基本上就是一部“鱼形”和“泛龟形”的争霸史,这其中又以鱼龙类和鳍龙类的缠斗历时最长,起伏跌宕最为精彩。
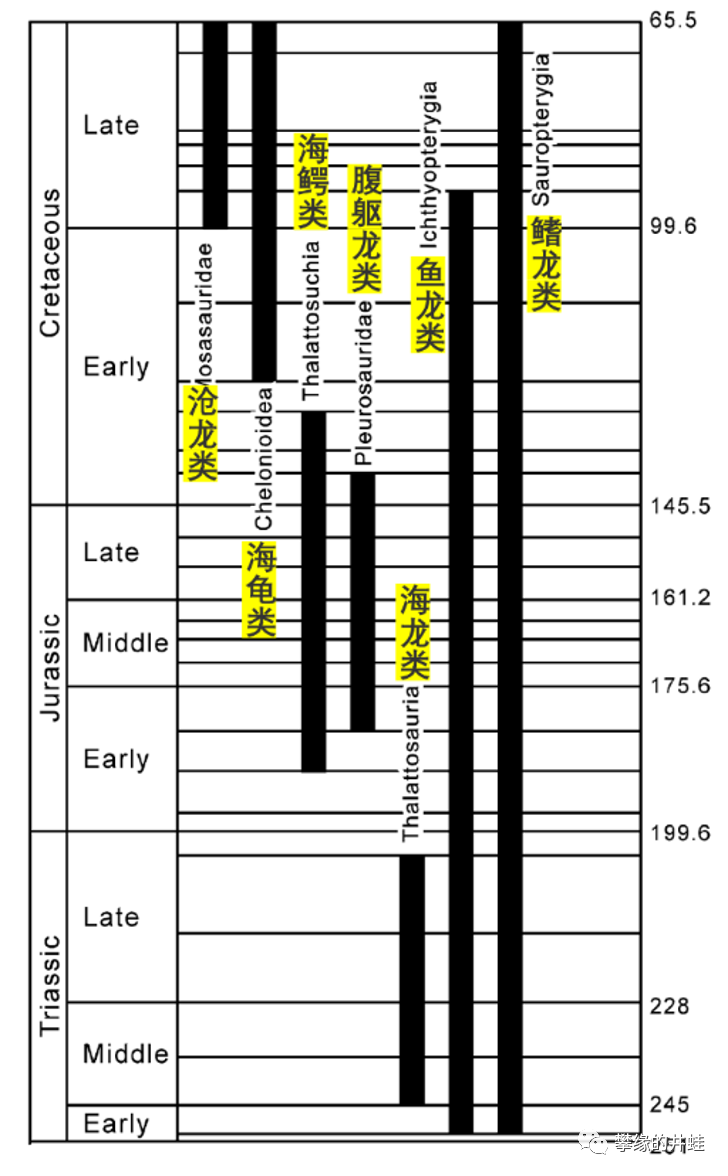
一些重要海爬类群的生存年代。鱼龙类和鳍龙类是右边最长的两条。它们摆着尾巴蹬着腿儿,在全世界的海洋里并肩遨游了1亿5000万年。在图片来源自[8]。
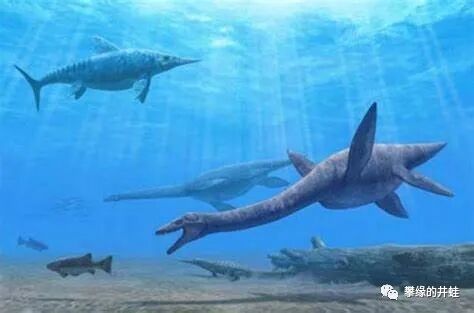
在中生代的绝大多数时间,海洋中都能看到鱼龙和鳍龙的柔美身姿。水与光的波纹拂过骨甲和鳞片,调和出丰富深邃的色彩。我一直觉得,这是中生代最美的画面。图片来源自网络。
按照惯例,应该介绍鱼龙类和鳍龙类在蜥形纲演化树上的位置。早年间使用过一个分类垃圾筐:调孔类(Euryapsida),把鱼龙类和鳍龙类都扔进去。现在这个名词基本上已经废弃了。
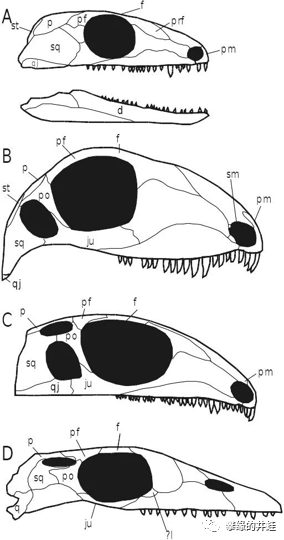
学术界曾经根据颞颥孔的数量和位置作为分类依据,把羊膜动物分成四大类:没有颞颥孔的无孔亚纲(Anapsida,如图A);只有一个下颞颥孔的下孔亚纲(Synapsida,如图B);有上下两个颞颥孔的双孔亚纲(Diapsida,如图C)和只有一个上颞颥孔的调孔亚纲(Euryapsida,如图D)。随着认识的深入和知识体系的更新,这四个亚纲也走向了不同的命运:调孔亚纲不复存在,其下的鱼龙类和鳍龙类都移入双孔亚纲。无孔亚纲拆散,副爬行动物独立出去,古窗龙和大鼻龙类归入基干蜥形类,龟鳖类归入双孔亚纲。双孔亚纲极大扩充,成为蜥形纲的主体。下孔亚纲升级成合弓纲,与整个蜥形纲并列。图片来源自[9]。
目前比较通行的观点是:鱼龙形态类(或称鱼龙形下纲,Ichthyosauromorpha)自成一支,和主龙形态类(或称主龙形下纲,
Archosauromorpha
)、鳞龙形态类(或称鳞龙形下纲,Lepidosauromorpha)并列。
至于鳍龙类(又称鳍龙超目,Sauropterygia),一般认为和龟鳖类(Testudines)的亲缘关系较近,它们共同组成了泛龟类(Pantestudines)。根据对现存龟鳖类的基因分析[10],泛龟类可能是主龙形态类的一支。
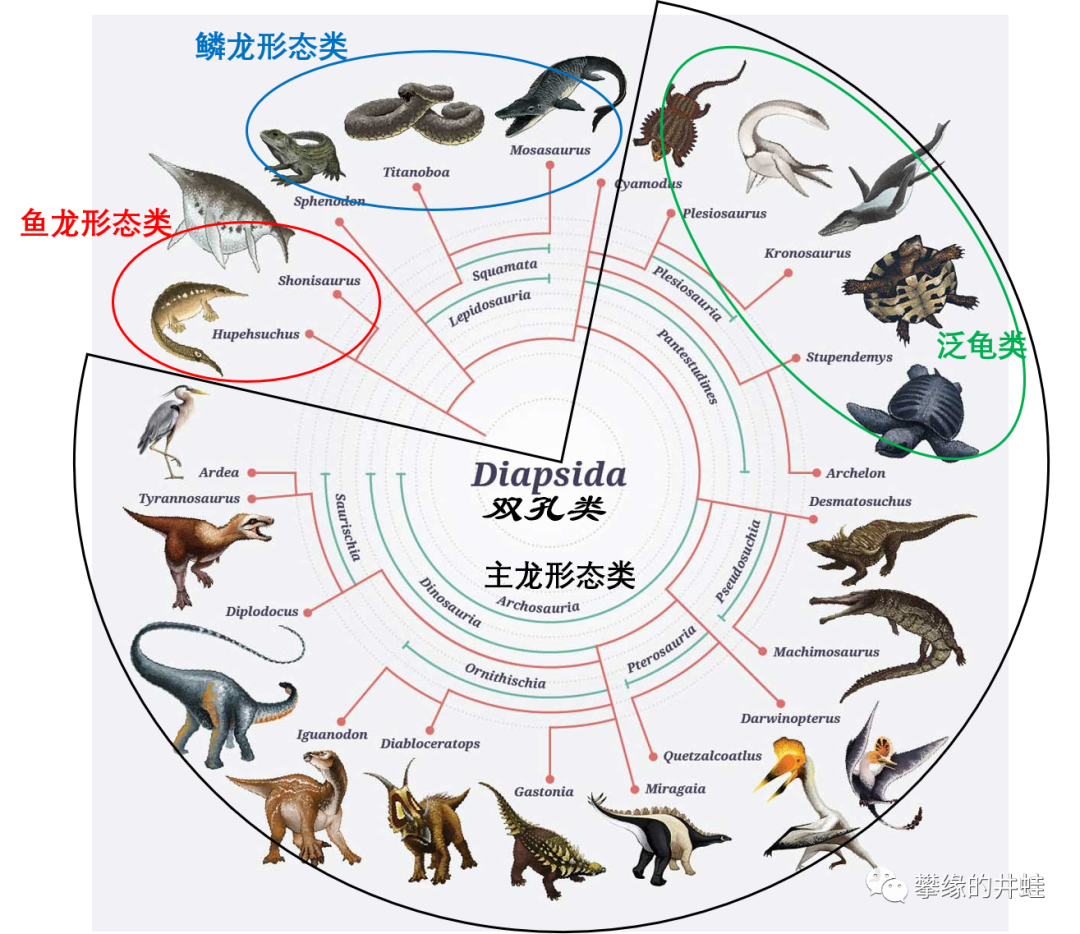
蜥形纲双孔类的系统发生极简图,曾经的“调孔亚纲”已经完全并入其中。图片来源自网络。
如果在同一个时间坐标上把鱼龙类和鳍龙类的演化树简单展开,可以得到下面这张图:
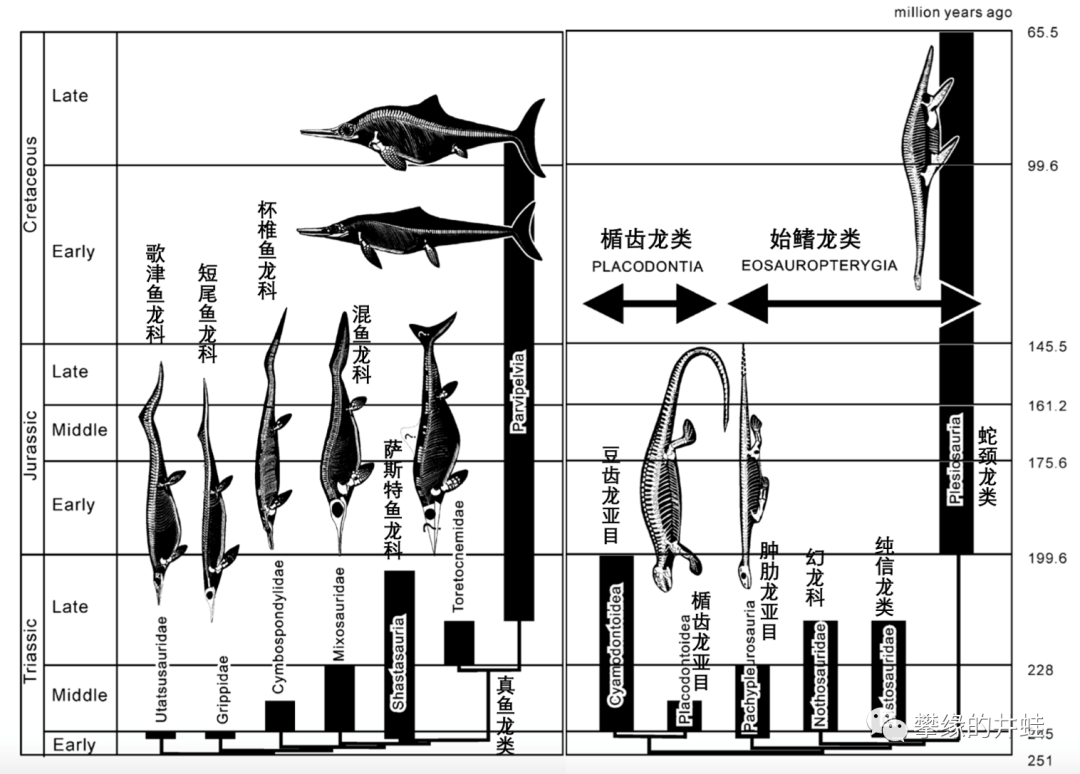
图片来源自[8]。这两大海爬族群的命运很有些相似:都是大灭绝后迅速崛起,在早三叠世到中三叠世开枝散叶,辐射演化出庞大的家系。这众多家系又在晚三叠世纷纷夭折,只剩下一个演化程度最高的分支挺进到侏罗纪。最后在晚白垩世先后谢幕,把鲜活的生命永远凝固在中生代。
之前的回目(参见
第二百六十七回 《我的种族战斗力很弱一直被别族欺压偶尔发达几次也很快就被打回原形但是适应力超强耗死了很多对手未来有可能翻身吗?》
)介绍过,主龙形态类和鳞龙形态类都有从狭义到广义的分类单元:
主龙类(Archosauria)
⊂
主龙形类(Archosauriformes)
⊂
主龙形态类(Archosauromorpha)
鳞龙类(Lepidosauria)
⊂
鳞龙形类(Lepidosauriformes)
⊂
鳞龙形态类(Lepidosauromorpha)
鱼龙目(Ichthyosauria)
⊂
鱼龙超目(Ichthyopterygia)
⊂
鱼龙形类(也称鱼龙型小纲,Ichthyosauriformes)
⊂
鱼龙形态类(或称鱼龙形下纲,Ichthyosauromorpha)
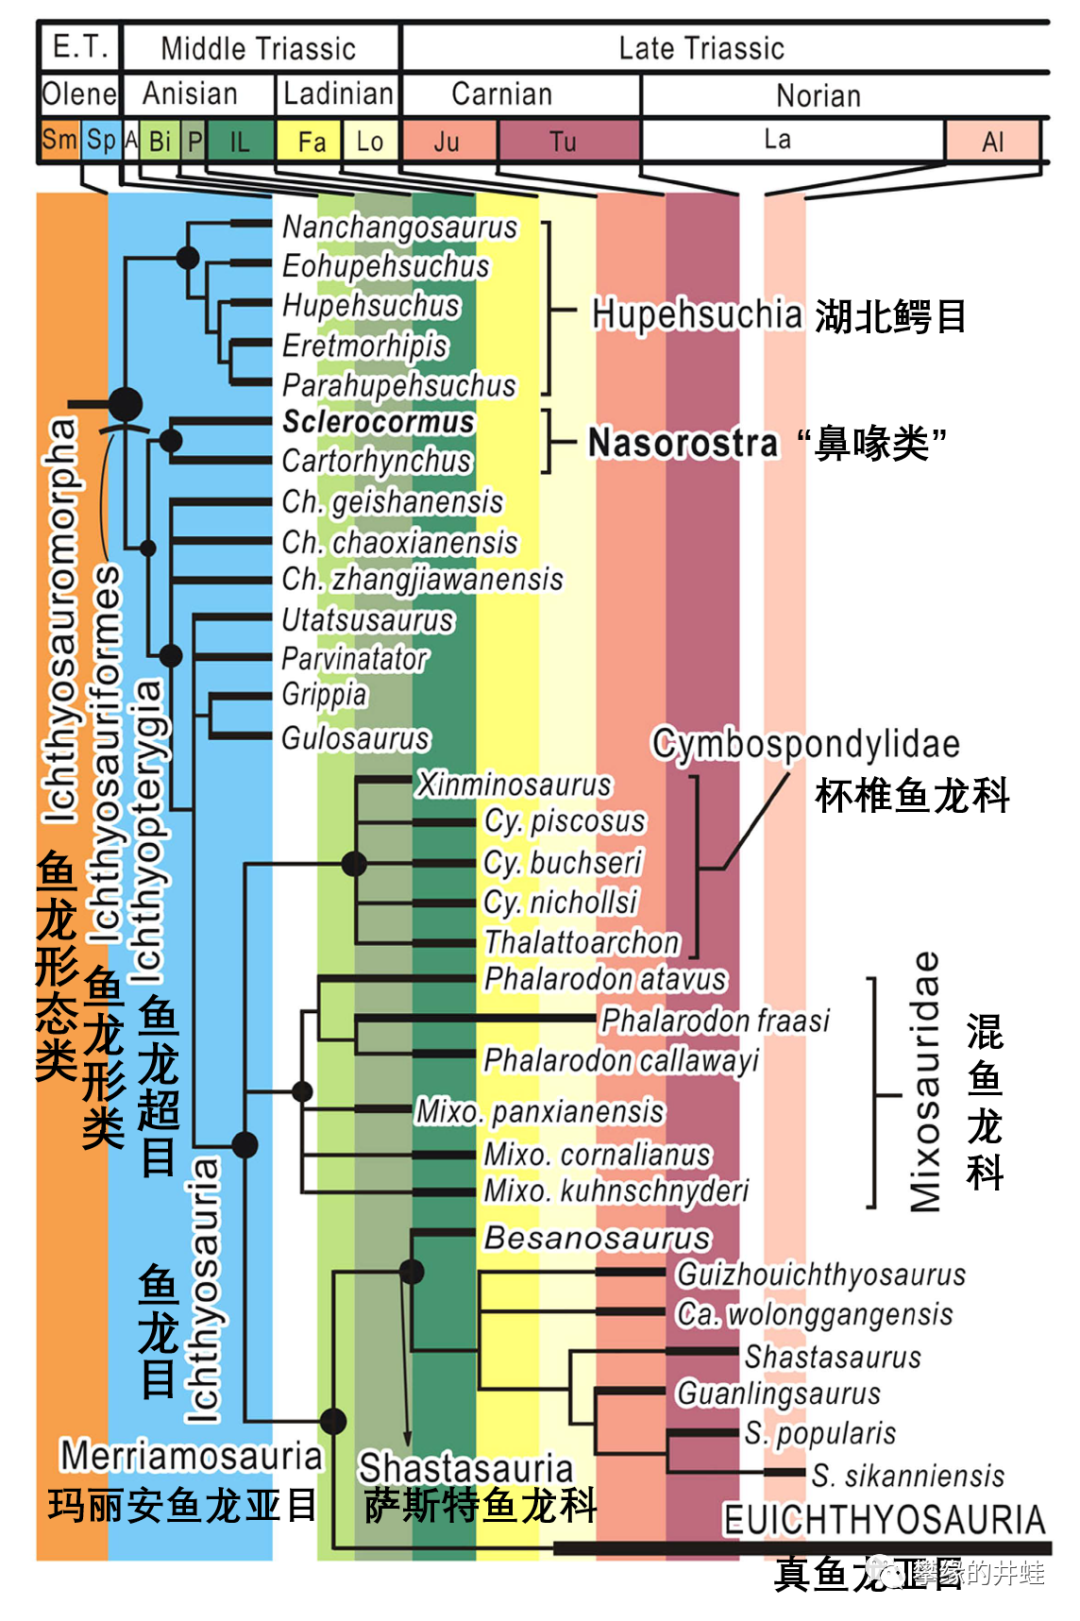
图片来源自[11]。
注意在鱼龙形态类下,有一个名为湖北鳄目(Hupehsuchia)的演化支,和鱼龙形类并列。湖北鳄类生活在早三叠世奥伦尼克阶,仅分布于湖北省的南漳-远安动物群(Nanzhang-Yuan’an fauna)。
在【第二百七十六回 九龙颂8:等闲入海即乘潮】中介绍过的“三叠纪鸭嘴兽”卡洛董氏扇桨龙
Eretmorhipis carrolldongi
,就是湖北鳄目的成员。这个家族中还有孙氏南漳龙
Nanchangosaurus suni
,短颈始湖北鳄
Eohupehsuchus
brevichollis
,长形似湖北鳄
Parahupehsuchus longus
,南漳湖北鳄
Hupehsuchus nanchangensis
,以及一些尚未定名的标本。它们是迄今为止发现的结构最原始的鱼龙形态类海爬。
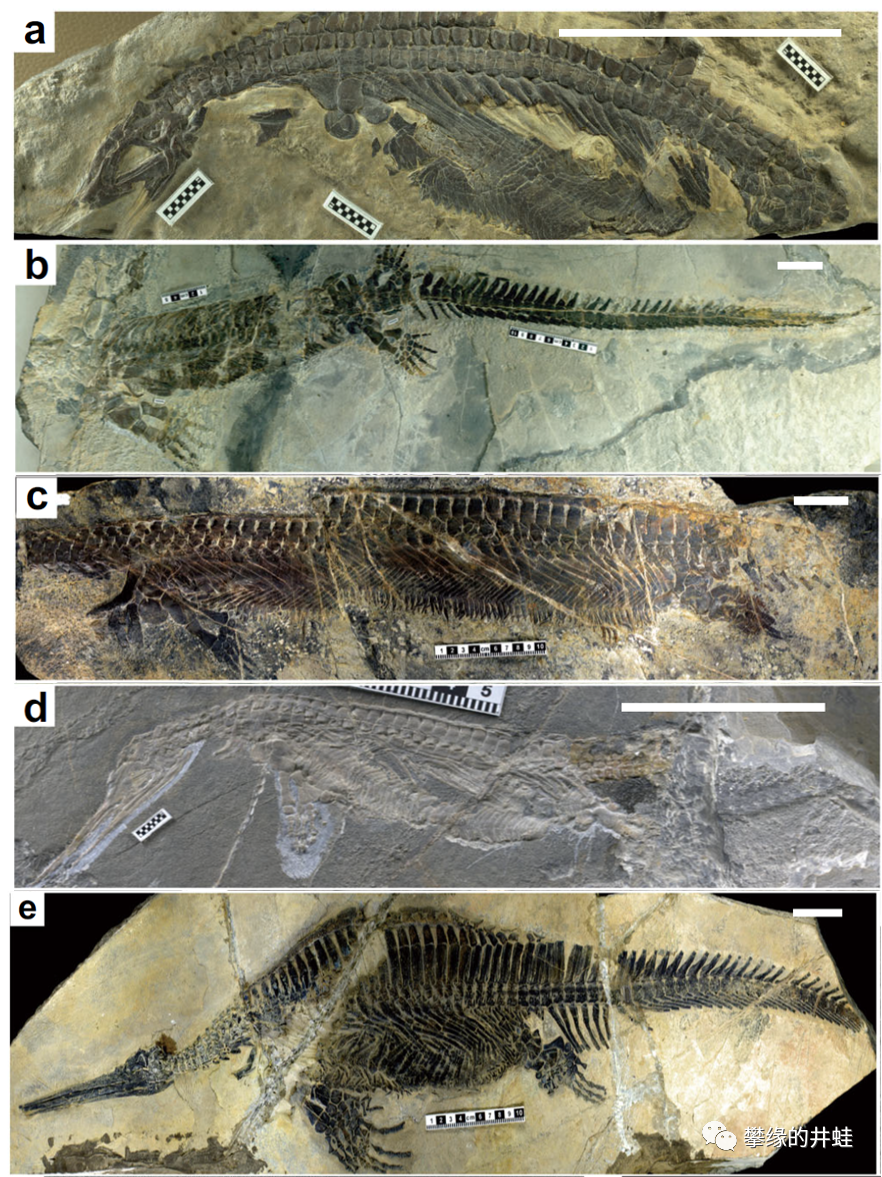
湖北鳄目主要种类化石。a,孙氏南漳龙;b,卡洛董氏扇桨龙;c,长形似湖北鳄;d,短颈始湖北鳄,e,南漳湖北鳄。在它们的身上,已经可以看到“鱼形化”的发展趋势。图片来源自[12],标尺长度5厘米。
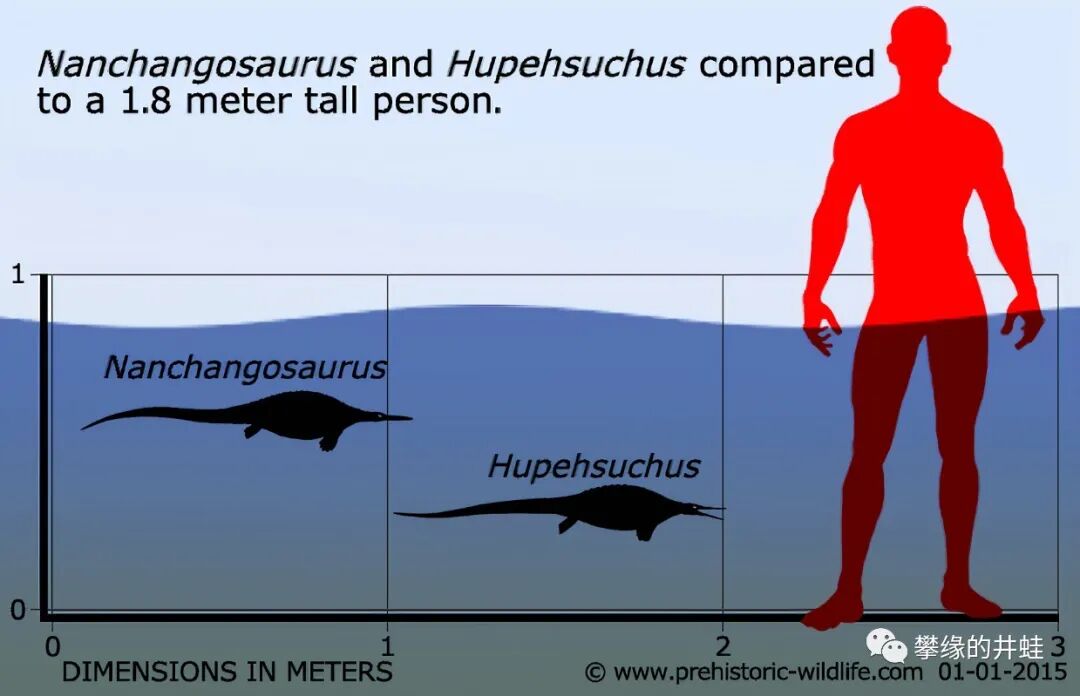
湖北鳄类的体长一般在1米上下。上图是孙氏南漳龙和南漳湖北鳄的体型对比。图片来源间水印。
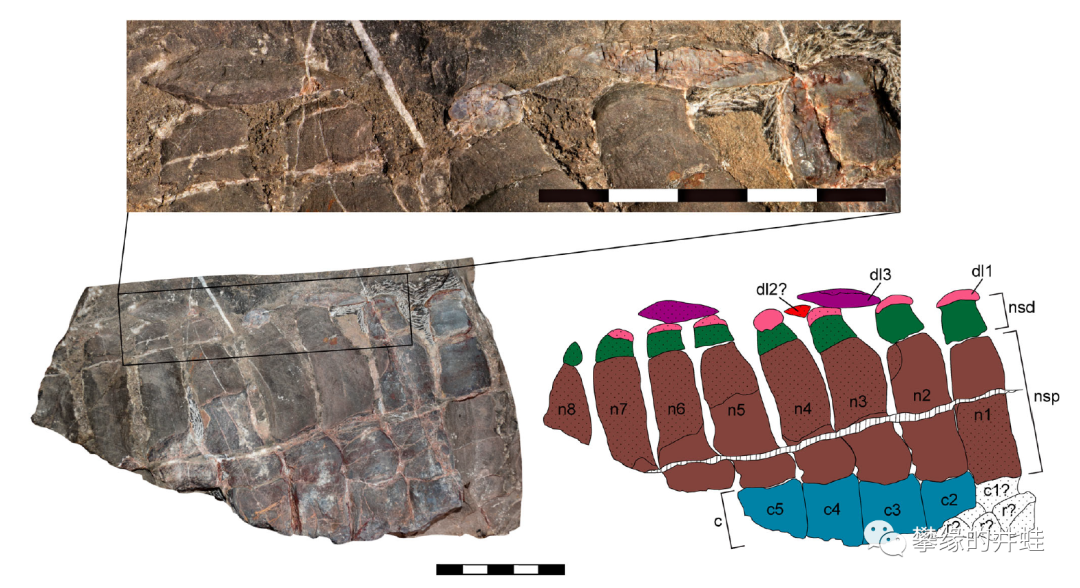
这块编号HFUT YA-15-032的标本保存了部分骨板和脊椎,属于某种未定名的湖北鳄类。根据其他湖北鳄类的身体比例估算,这只个体达到了2.3米,是目前发现的最大的湖北鳄类。图片来源自[13],飙车长度5厘米。
湖北鳄类存在时间短,生活范围狭小,种类也不多,但保存的化石数量相当可观,多样性也很高,看来曾经是当地的优势类群。南漳-远安动物群中没有发现鱼类、节肢动物和软体动物的化石。除了包括湖北鳄类在内的各种海洋爬行动物之外,还找到了菌毯和藻类留下的痕迹,以及牙形石[14]。看来和“前辈”中龙一样,湖北鳄类也生活在一片食物链比较畸形的水域。造成这种“畸形”的原因不难想到:大灭绝结束不久,这片海域正在艰难地复苏中,自然搭建不起太过复杂的食物网。湖北鳄类的主食可能就是微小的牙形动物,或者菌毯里的蠕虫。
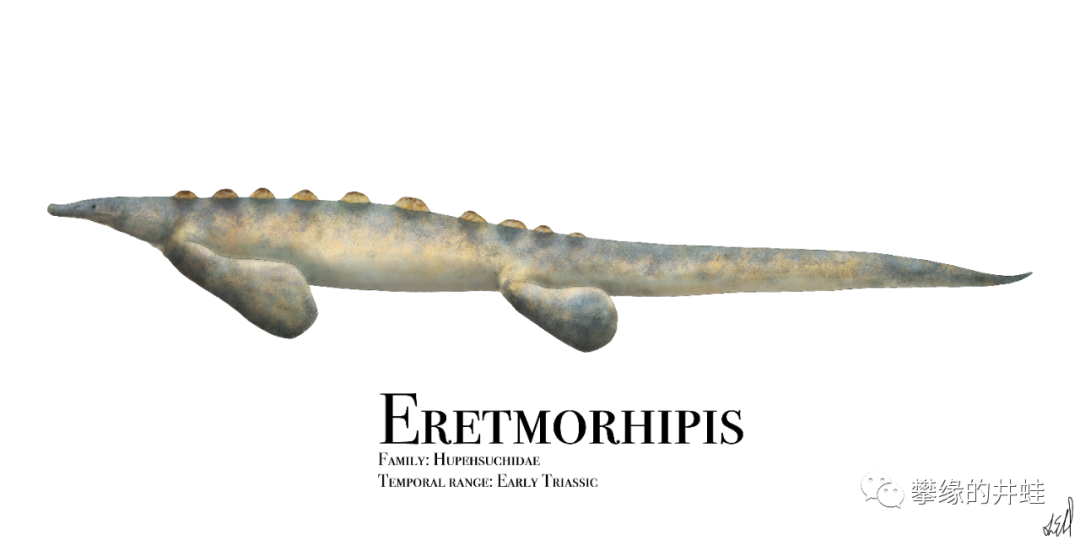
卡洛董氏扇桨龙很可能靠盲感应(化学物质或电流)搜寻菌毯里的蠕虫。图片来源自网络。
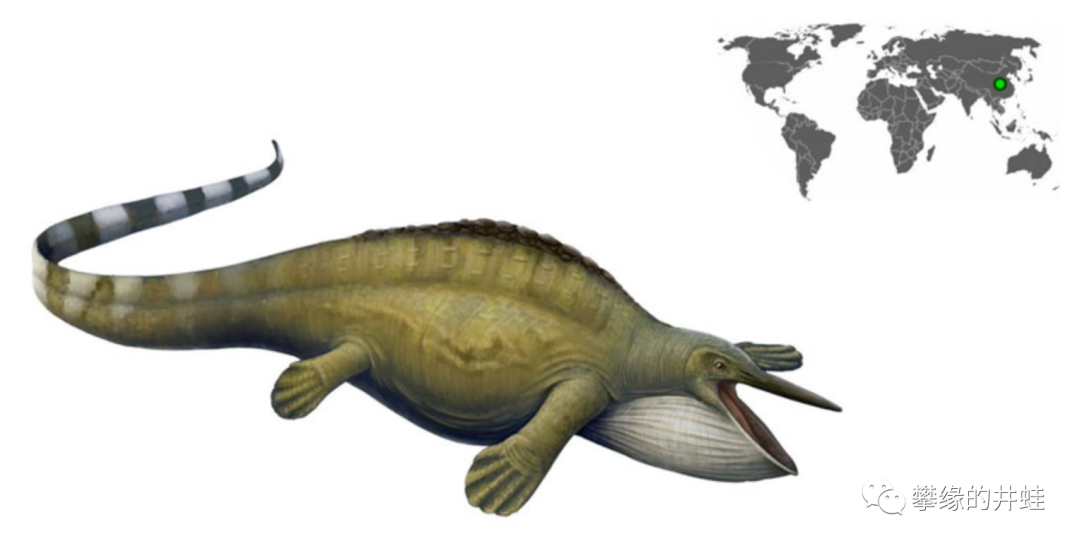
孙氏南漳龙复原图。研究者猜测它可能像鹈鹕那样,用网兜似的大嘴捞食牙形动物,或者更小的浮游生物。图片来源自网络。
不幸的是,湖北鳄类并不是这个畸形生态链的终点。种种证据显示,那片水域中存在更大更凶悍的掠食者。湖北鳄类背部长有发达的骨板,腹部包裹厚实的肋骨,宁可牺牲速度和灵活性也要把自己打造成个铁桶,可能就是抵御天敌的手段。
到目前为止,人们还没有找到鱼龙形态类的陆生和半水生祖先。作为这个类群的早期旁支,在湖北鳄类身上还能看到一点两栖生活的祖先的影子:比如四肢仍然是五趾分开、趾间长蹼的“脚”,而不是鱼龙那样的“鳍”。另外,湖北鳄目还有较长而灵活的脖子,这不利于快速游动和保存平衡,更进步的鱼龙颈部都缩短而且僵硬了。
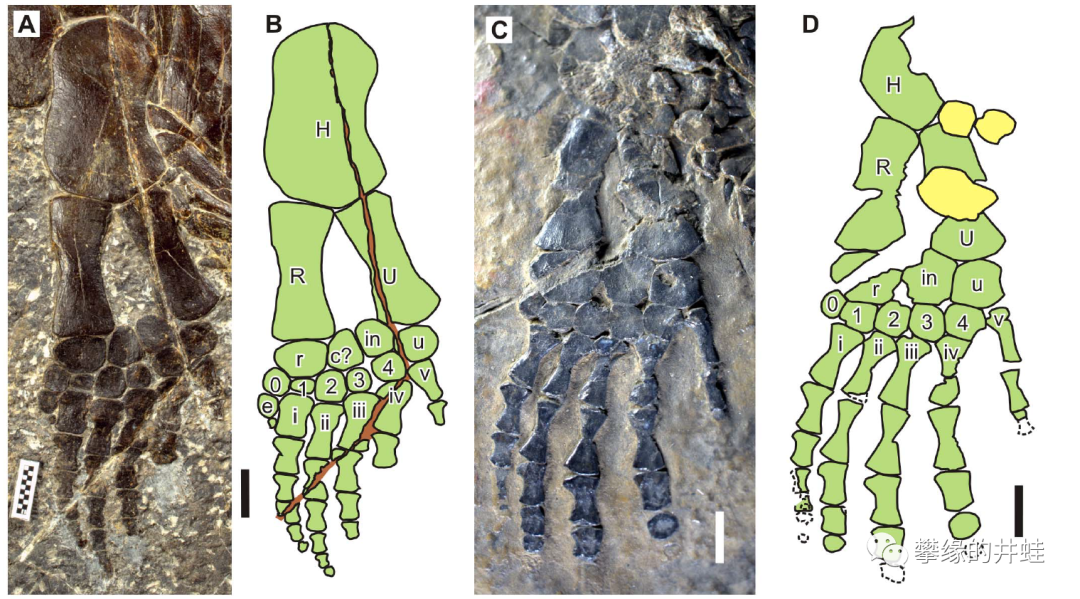
长形似湖北鳄(A,B)和南漳湖北鳄(C,D)前肢化石和结构图,趾、掌、腕部分的骨骼仍然区别明显。图片来源自[15],标尺长度1厘米。
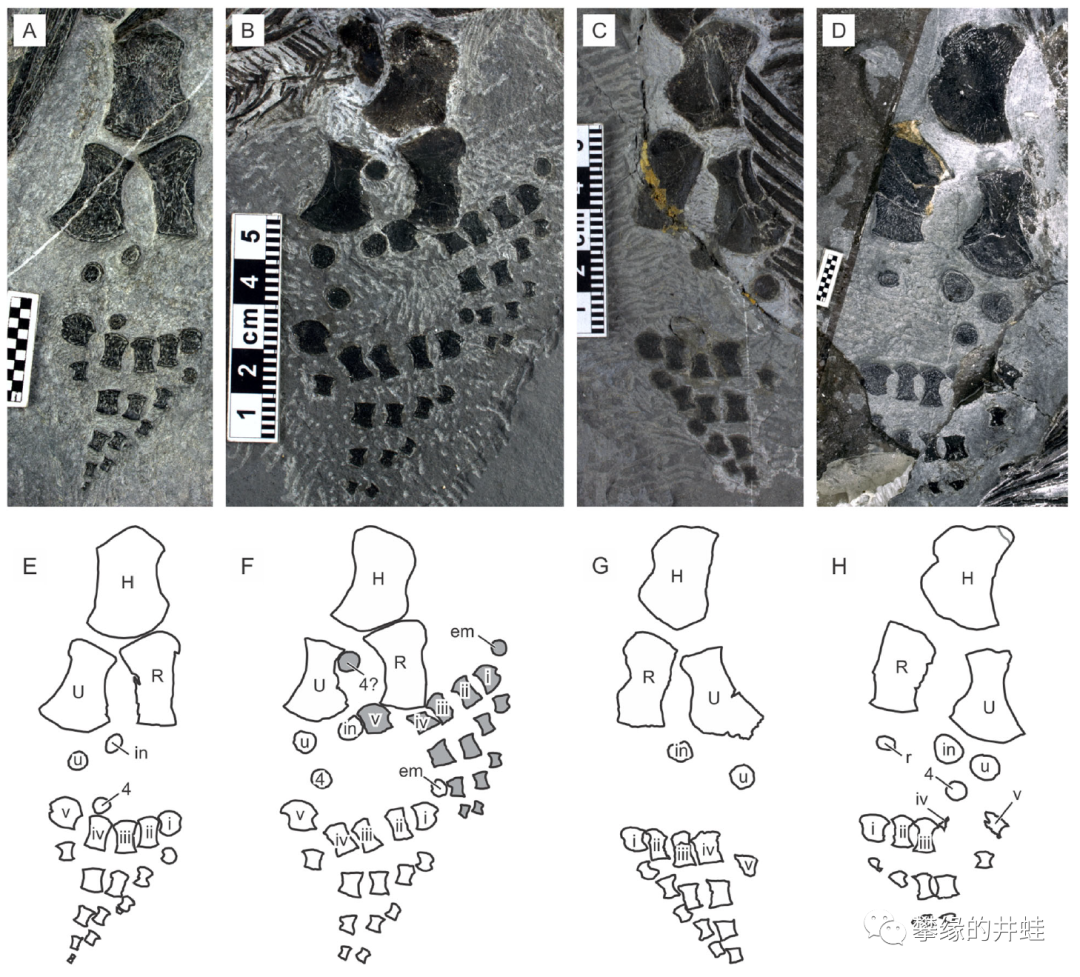
对比一下三叠纪的早期鱼龙:短腿巢湖龙
Chaohusaurus
brevifemoralis
的前肢化石。鳍状肢里就只剩这样一堆小碎骨头。图片来源自[16],标尺长度1厘米。
笨重的身体,原始的结构,羸弱的运动能力,再加上特化的食性,湖北鳄类的劣势一目了然。当海洋生态系统日趋复杂,生存竞争越发激烈之后,湖北鳄类不出意外地尽数退场,把舞台让给了结构更先进、游泳能力更强的鱼龙形类。
目前发现的最原始的鱼龙形类,是安徽省巢湖动物群(早三叠世奥伦尼克阶)的柔腕短吻龙
Cartorhynchus
lenticarpus
和小头刚体龙
Sclerocormus parviceps
。
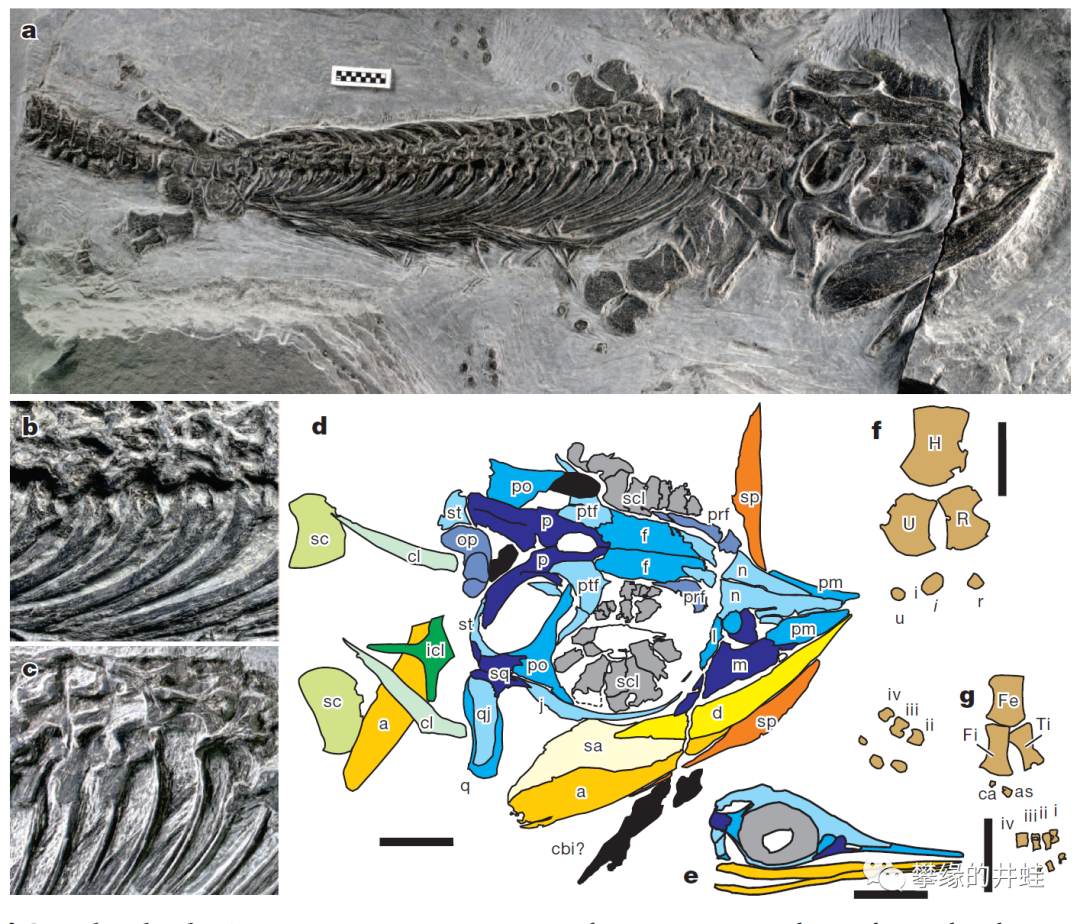
a:柔腕短吻龙模式标本;b:柔腕短吻龙肋骨特写;c:巢湖鱼龙肋骨,作为对比;d:柔腕短吻龙头骨和肩带结构;e:巢湖鱼龙幼体头骨结构作为对比;f:右前肢;g:右后肢。图片来源自[17],标尺长度1厘米。
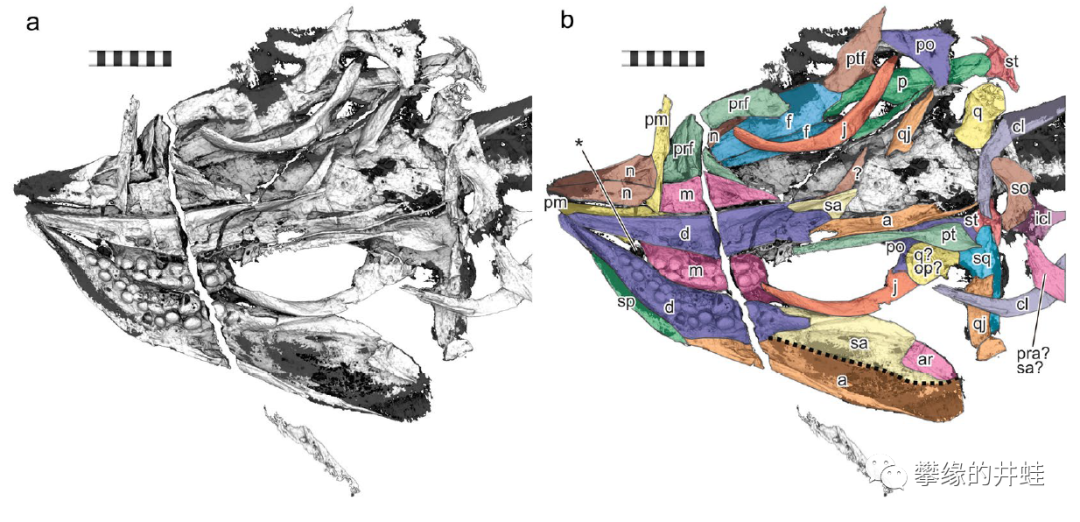
柔腕短吻龙的化石外观上看不到牙齿。研究者曾经认为这种动物靠吸吞捕食猎物。不过2020年的CT扫描结果显示,在颌骨的内侧其实有三排小豆子牙,所以它其实以有硬壳的无脊椎动物为食。另外,由于模式标本的头部比例很大,有观点认为这是一个幼年个体。新发现的牙齿已经发育完全而且有明显的磨损,说明它已经成年——人家就长个大头娃娃的体型。图片来源自[18],标尺长度1厘米。
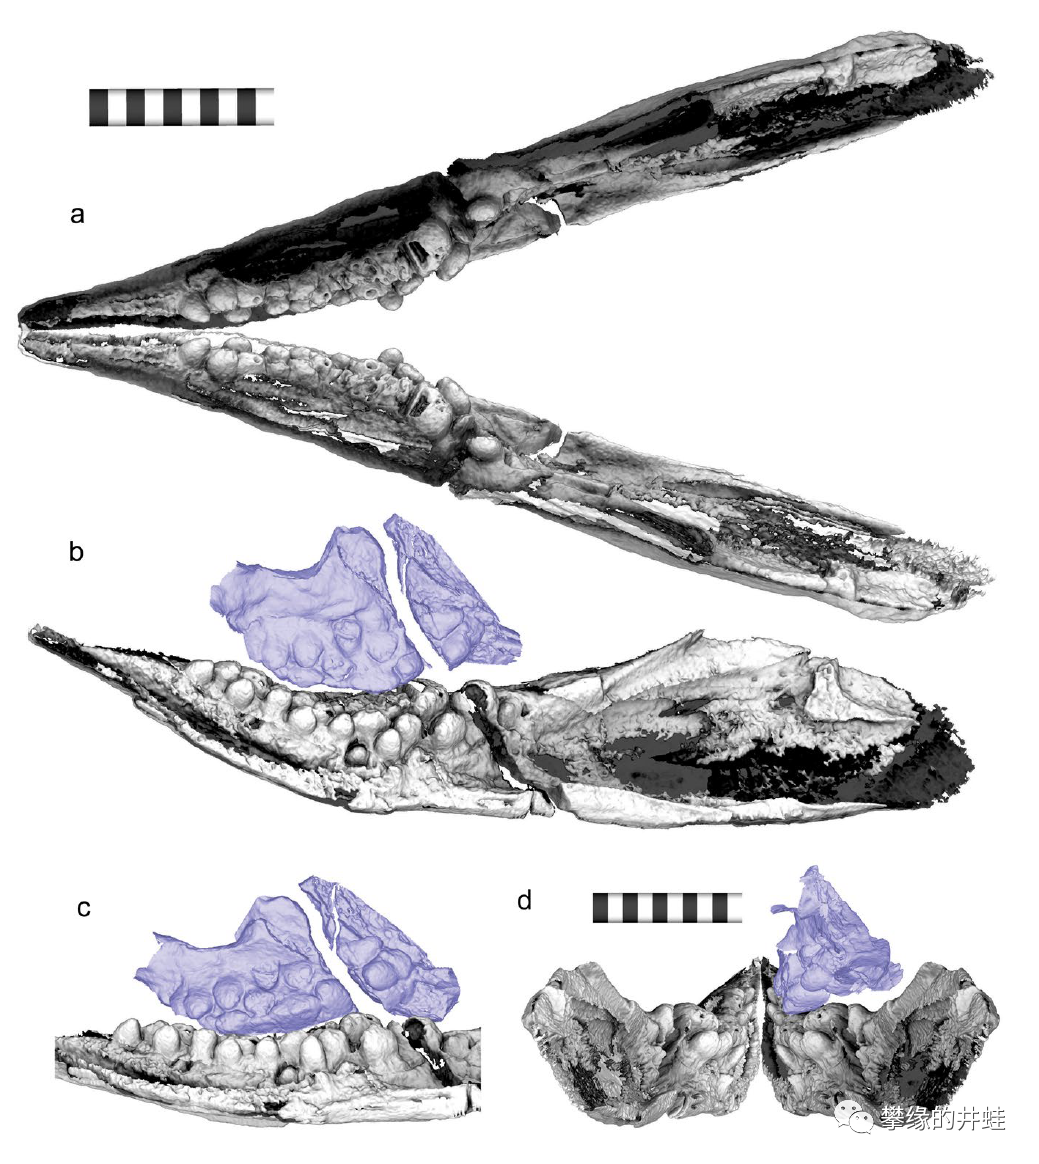
柔腕短吻龙的上下颌结构复原。这种豆子牙和楯齿龙、豆齿龙如出一辙,明显是嗑贝壳用的。图片来源自[18],标尺长度1厘米。
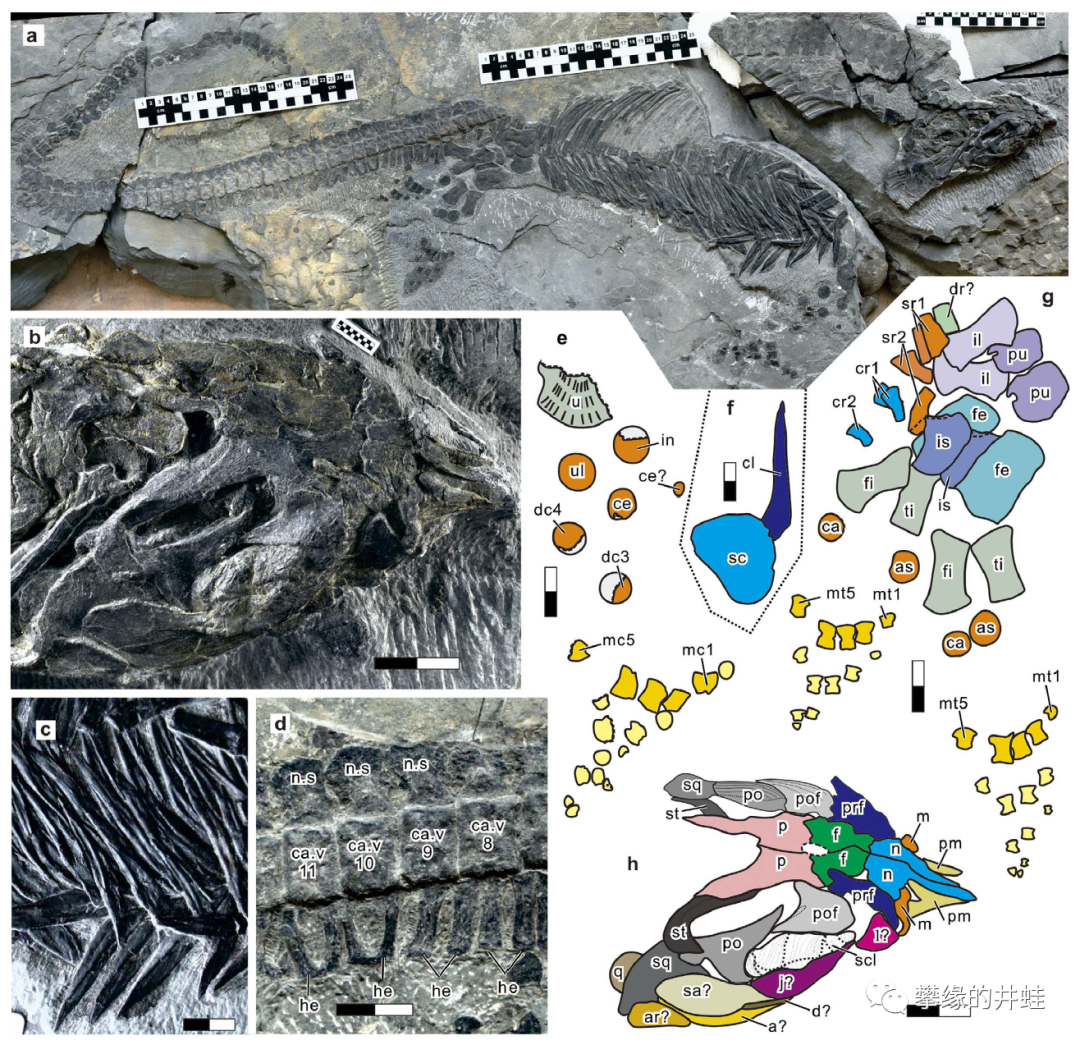
小头刚体龙模式标本。它的身材比柔腕短吻龙“正常”一些:头小,身粗,尾细长,很像一条长着四支鳍足的蜥蜴。小头刚体龙的躯干也包裹着厚实的骨板和肋骨,像湖北鳄类一样。它们可能面临着相似的危险。图片来源自[11],a图小格长度1厘米,其余标尺长度2厘米。
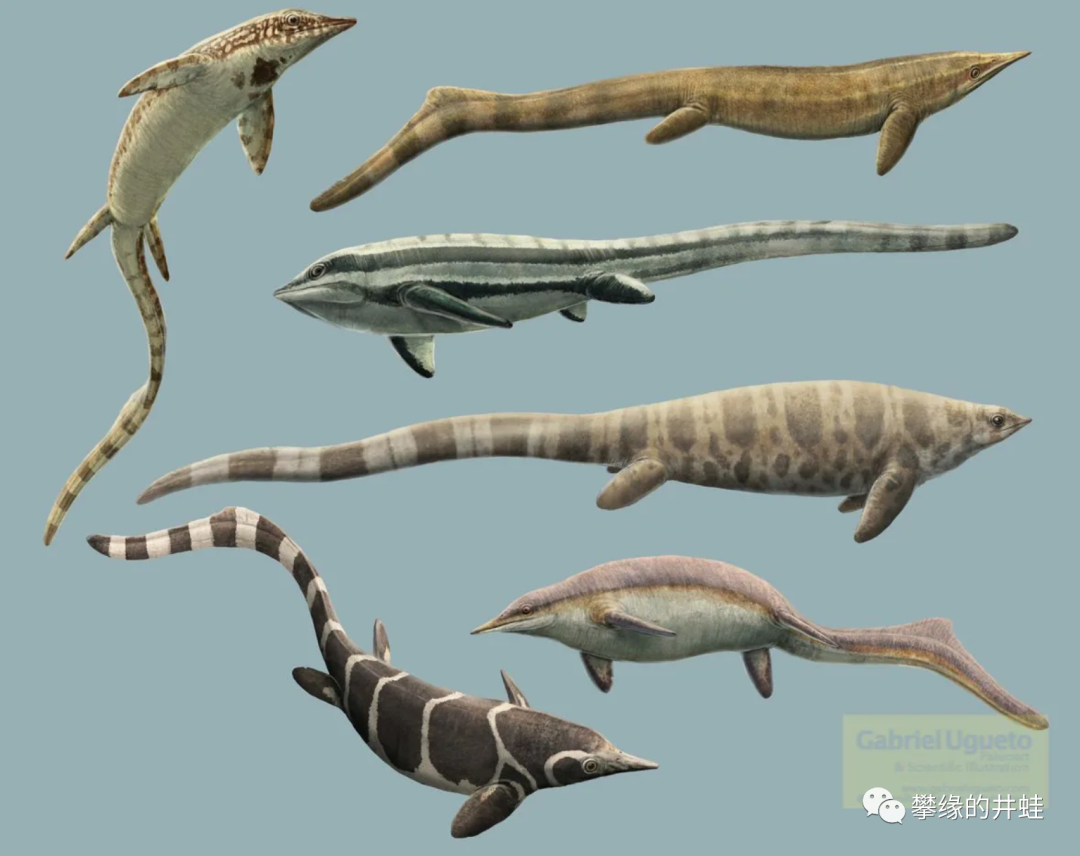
一些早期鱼龙形类的复原图。右二是柔腕短吻龙,右三是小头刚体龙。虽然有些报道称它们为“水陆两栖的鱼龙”,但其实它俩已经是完全水栖的物种了,在陆地上的运动能力也就是能勉强扑腾回水里的程度吧。图片来源见水印。
研究者为柔腕短吻龙和小头刚体龙建立了一个单独的演化支:“鼻喙类(Nasorostra)”,放在鱼龙形类最基干的位置。鼻喙类比湖北鳄目“鱼形化”程度更高一点,但和上图中的其他早期鱼龙相比,柔腕短吻龙和小头刚体龙显然保留了更多的原始特征:它们的吻部极短,还没有演化出鱼龙典型的尖细“筷子嘴“。另外,柔腕短吻龙化石尾部大部分缺失,但小头刚体龙的尾部基本保存完整,可以看到是平直的,没有出现其他鱼龙类的弯折结构(这个弯折结构后来演化成上下两叶尾鳍)。
再看看这张图片,注意湖北鳄目和鼻喙类的位置。图片来源自[11]。
鼻喙类可以看作是目前未知的鱼龙形类祖先类型的最后孑遗。它们也和湖北鳄目一样,永远沉寂在下三叠统的地层中。
鳍龙类的祖先在二叠纪末到三叠纪初进入海洋,很快分化成楯齿龙类(Placodontia)和始鳍龙类(Eosauropterygia)两支。龟形龟相的楯齿龙类已经在【第二百七十六回 九龙颂8:等闲入海即乘潮】讲过了。本回开始介绍更加轻盈的始祖鳍龙类。
前面讲过,”蹬腿派“海爬会越来越”泛龟形化“,在三叠纪至少有两支海爬独立走上了这条演化路线:一支是原龙目的长颈龙和东方恐头龙(参见第二百六十一回
九龙颂4:蹙为宛转青蛇项),在三叠纪末中道崩殂。鳍龙类,尤其是始鳍龙类则一直走到了中生代的尾声。(龟鳖类比较特殊,似乎是先演化出“龟形”身体再下的海。它们的故事在【龟虽寿】系列中讲述)。
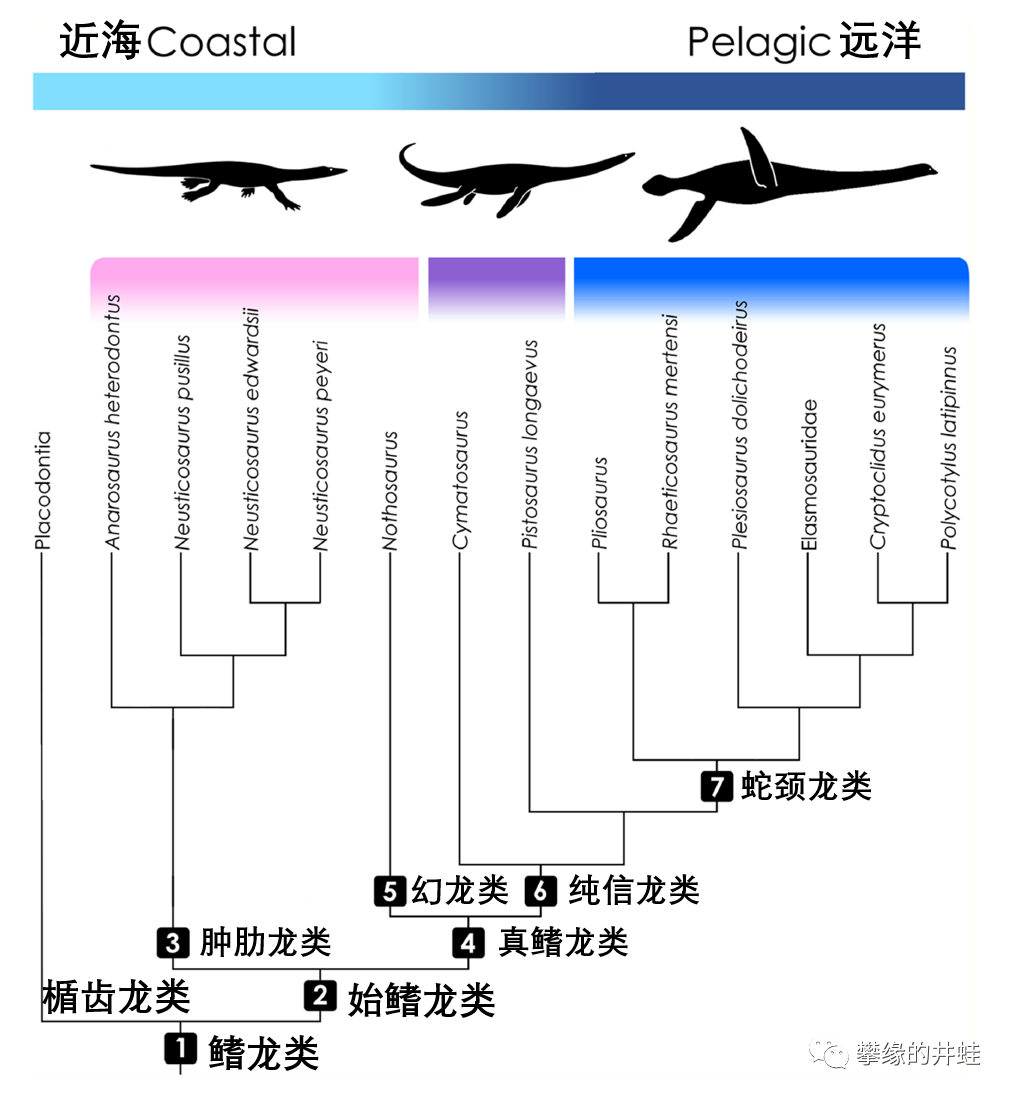
鳍龙类的演化谱系,及对应的体型特征和生活方式。图片来源自[19]。
目前学术界把始鳍龙类分成肿肋龙类(Pachypleurosauroidea)、幻龙类(Nothosauroidea)和纯信龙类(Pistosauroidea)三个分支。其实肿肋龙类和幻龙类都不大像是单系群,与其说是三个演化支,不如理解成是水栖化(其实也就是“泛龟形化”)程度从低到高的三个阶段更确切一些。
作为始鳍龙类中最基干的成员,肿肋龙类的外形都像是脚上有蹼的长脖子蜥蜴。
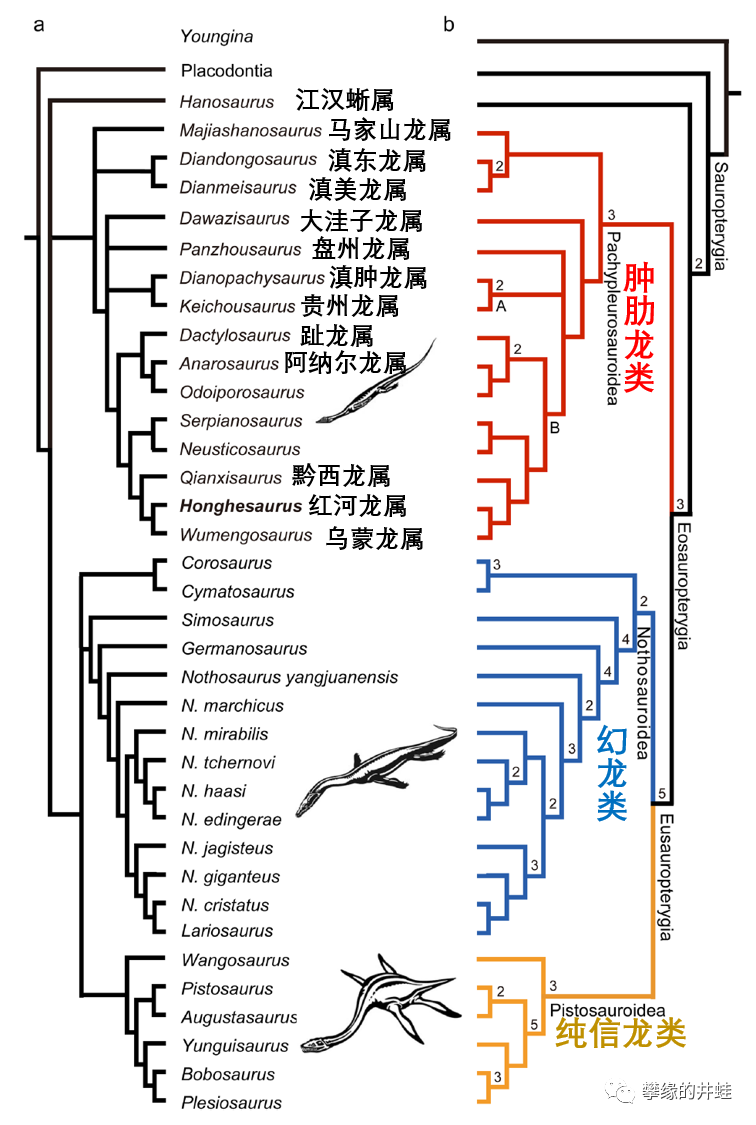
一些主要的肿肋龙属种。趾龙属
Dactylosaurus
,阿纳尔龙属
Anarosaurus
,
Odoiporosaurus
,
Serpianosaurus
和
Neusticosaurus
产自欧洲。其他基本都是在中国发现的,看名字也能知道产地。图片来源自[20]。
在非专业人士(比如我)看来,肿肋龙类的化石长相都差不多。下面选比较有特点的简单列举几种,从它们身上粗略推演鳍龙类的下海进程:
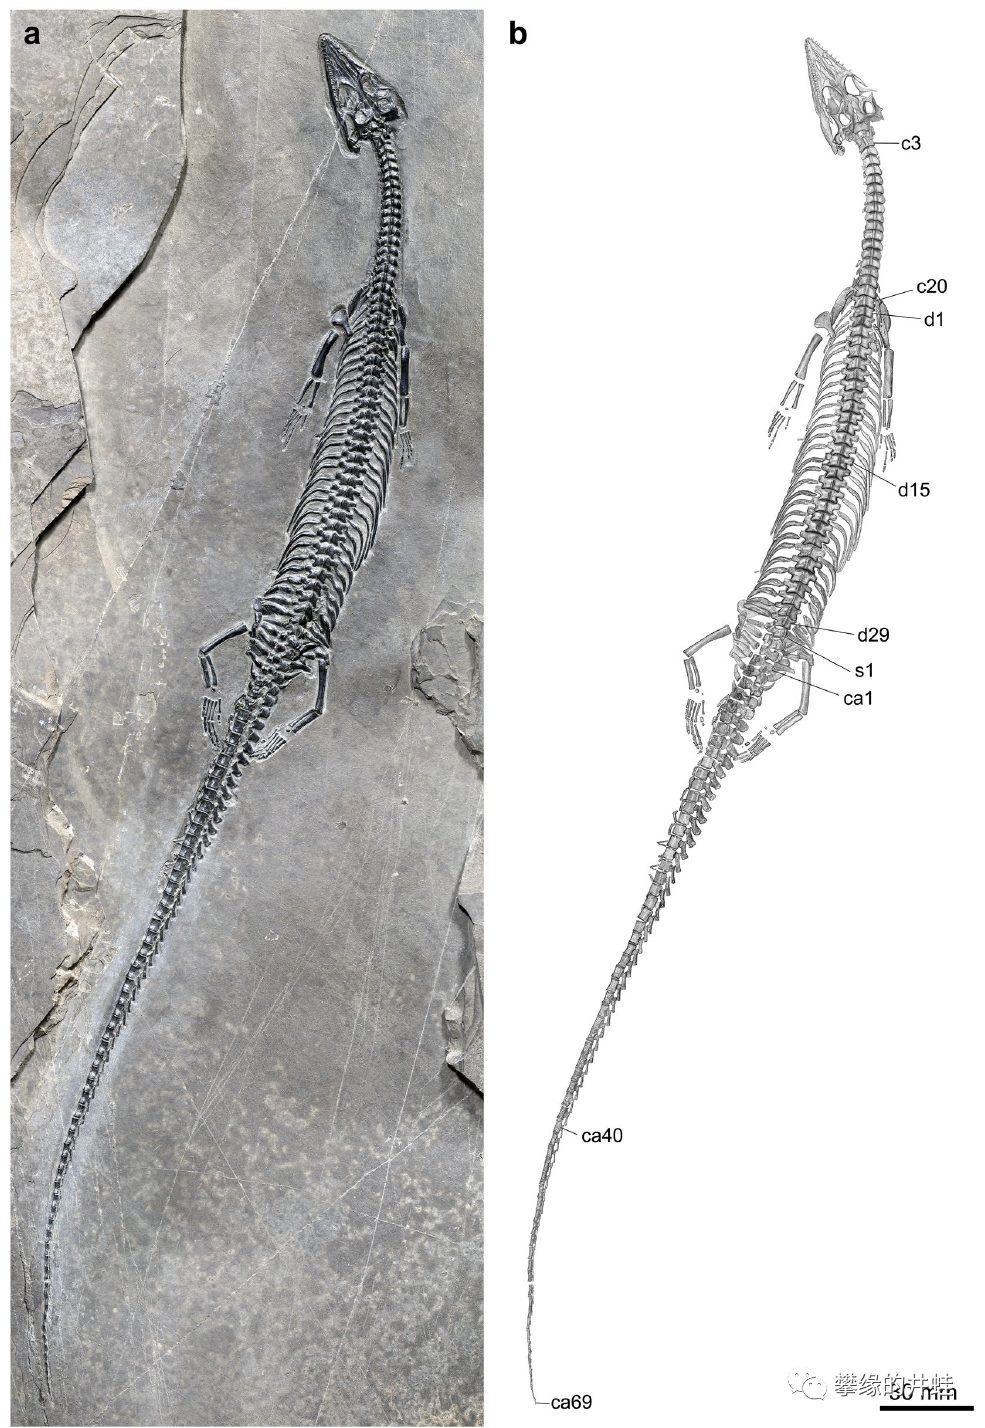
2022年新发表的长尾红河龙
Honghesaurus
longicaudalis
模式标本(IVPP V30380),产地云南省红河州泸西县,生存于早中三叠世安尼期。图片来源自[20]。
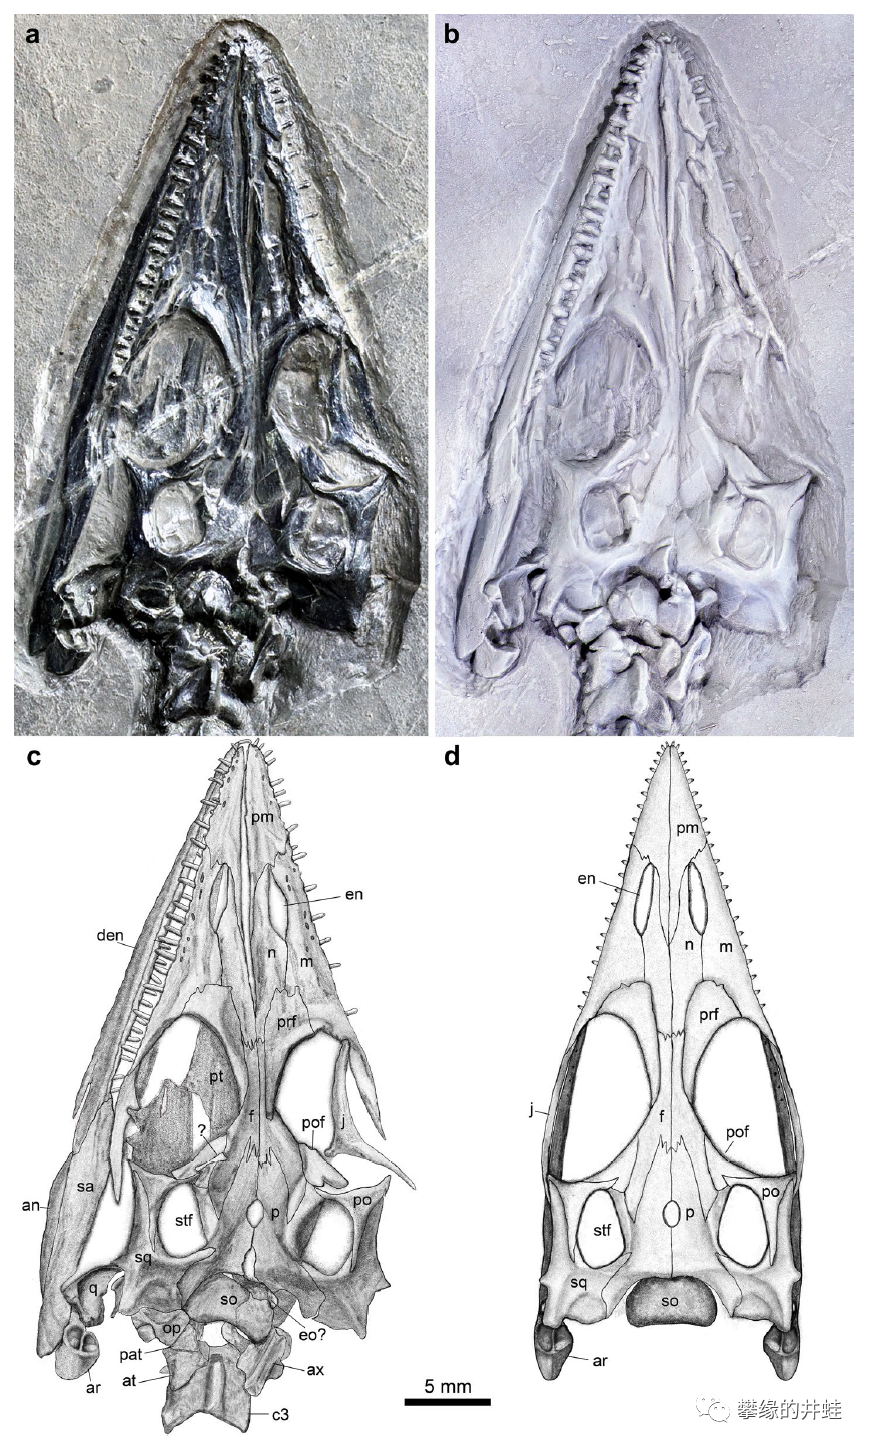
长尾红河龙的头骨。注意它的牙齿,短小纤细,这种形态比较原始,其实不太适合取食水生猎物。单看这个脑袋的话,基本没有海爬的感觉。图片来源自[20]。
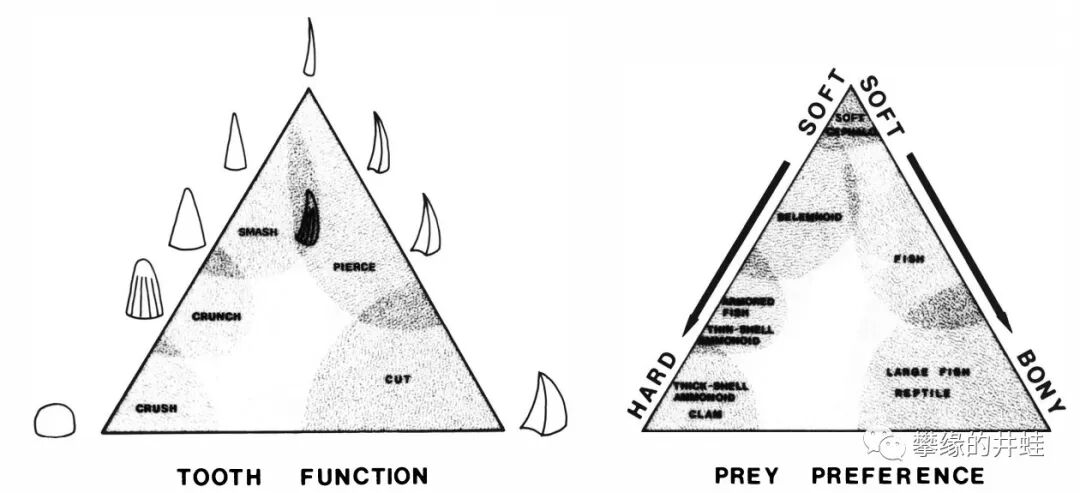
海爬的牙齿可以分成三大类,分别对应不同的食性:像楯齿龙那样的豆子牙,用来磨碎有硬壳的食物;细长而且弯曲的钩子牙,用来捕捉身体光滑的猎物;带有锋利刃口的锥形牙,是高级掠食者的配置,用来切割血肉。长尾红河龙的牙齿还没有发生相应的特化。图片来源自网络。
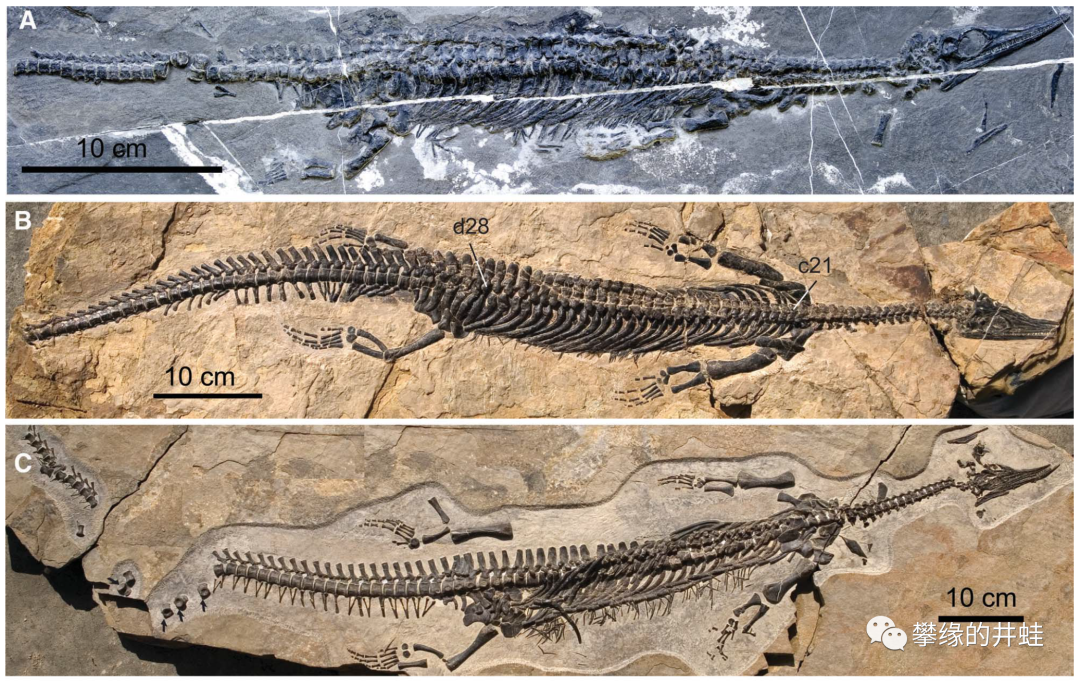
和长尾红河龙同样是面条身材的还有纤颌乌蒙龙
Wumengosaurus
delicatomandibularis
,产地贵州省盘县,生存于中三叠世安尼期。图片来源自[21]。
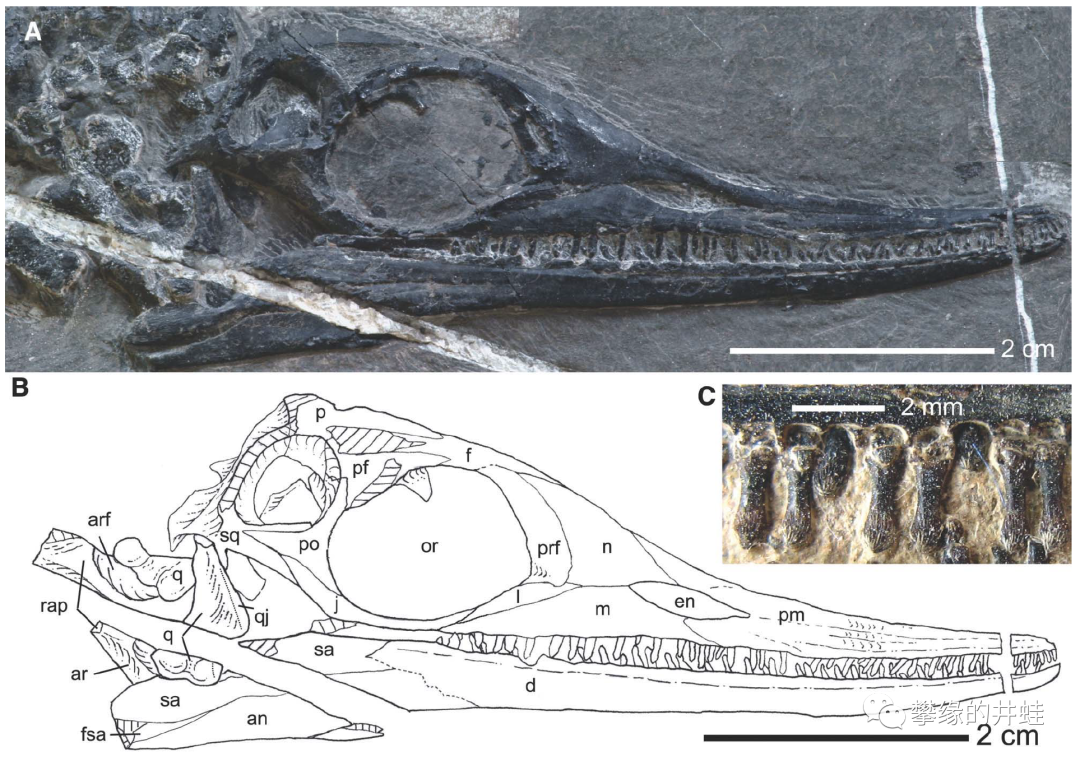
纤颌乌蒙龙的头骨结构,已经有点儿朝着鱼龙那种筷子嘴的方向发展,有比较明显的海爬特征了。图片来源自[21]。
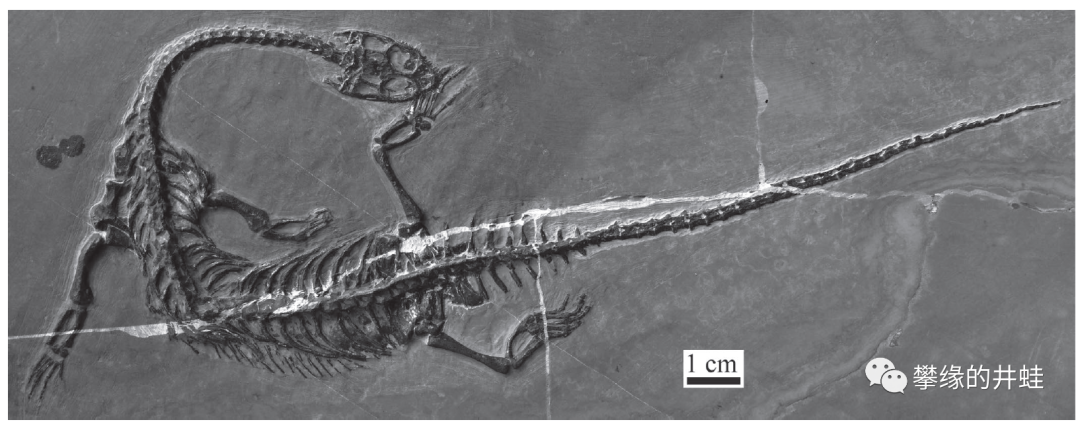
纤细滇美龙
Dianmeisaurus gracilis
,产地云南罗平,中三叠世安尼期。图片来源自[26]。
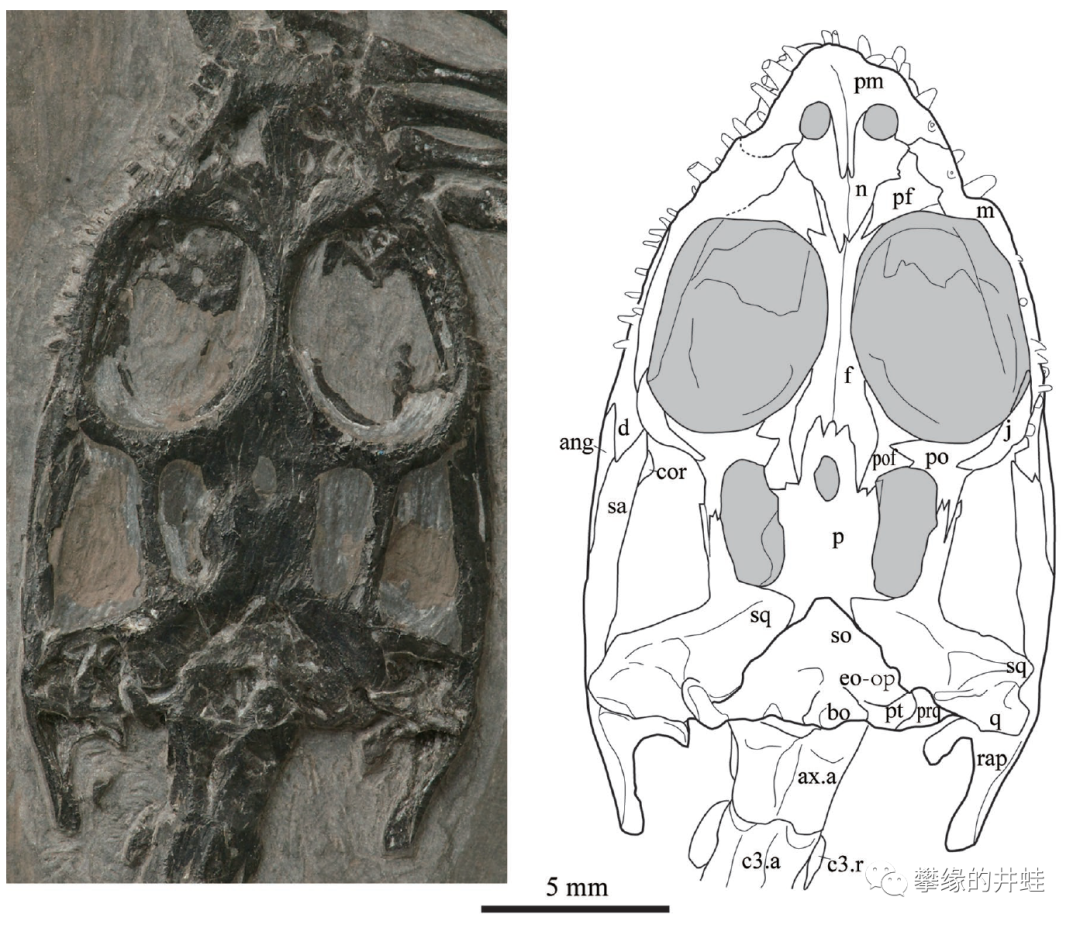
纤细滇美龙的头骨结构。它的牙齿已经开始往外龇了。图片来源自[26]。
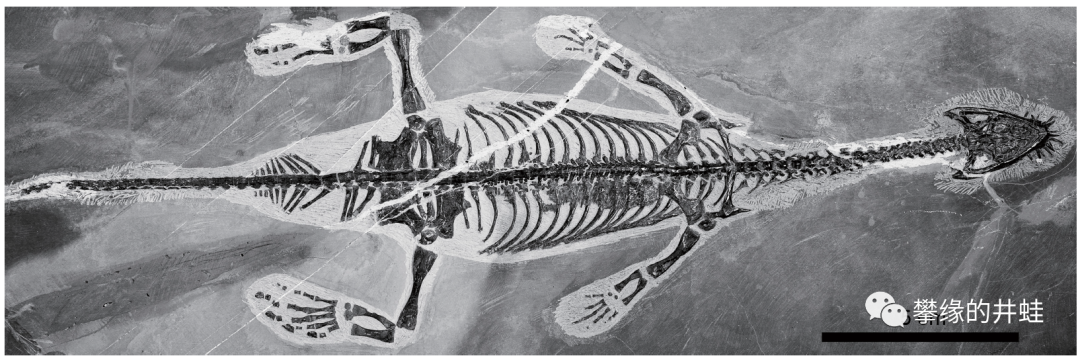
同样产自云南罗平中三叠世安尼期关岭组的利齿滇东龙
Diandongosaurus
acutidentatus
。它的躯体就丰满得多,开始向着“泛龟形”的锅盖身材方向发展。图片来源自[22]。
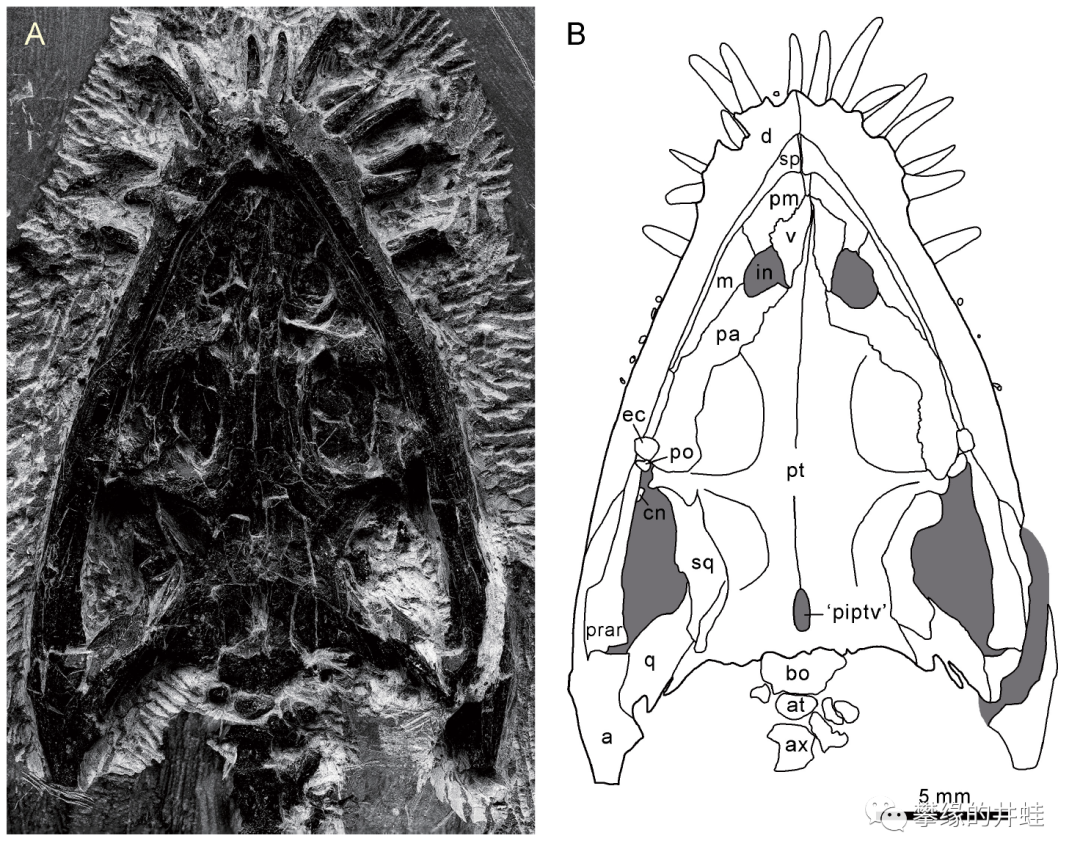
利齿滇东龙的头骨结构。这种龇出嘴外的长牙是非常典型的海爬特征,很适合抓捕滑溜溜的鱼虾等猎物,从中龙到蛇颈龙都大量配备。图片来源自[22]。
最后说说胡氏贵州龙
Keichousaurus hui
。这种原始鳍龙生活于中三叠世安妮期,化石产自贵州兴义,因为化石储量特别丰富,大量流入古生物化石市场,许多小型展馆和个人玩家都有收藏,算是最常见的海爬了。也正因为化石丰富,胡氏贵州龙得到了充分研究,取得的成果加深了人们对肿肋龙类,乃至对全部鳍龙类的认识。
比如已经发现了多个雌性胡氏贵州龙的腹腔中有幼体骨骼,可以确定它是卵胎生甚至胎生的。换言之,就是鳍龙类在肿肋龙这个阶段就已经不用再上岸产卵了。
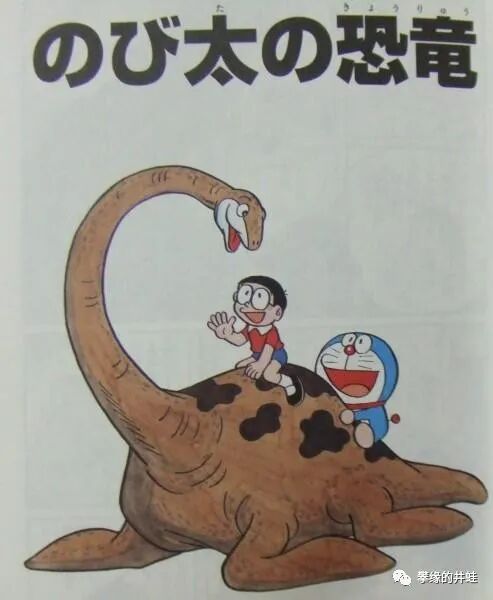
所以说野比大雄从蛋里孵化出一头蛇颈龙的设定,基本上被否定了。
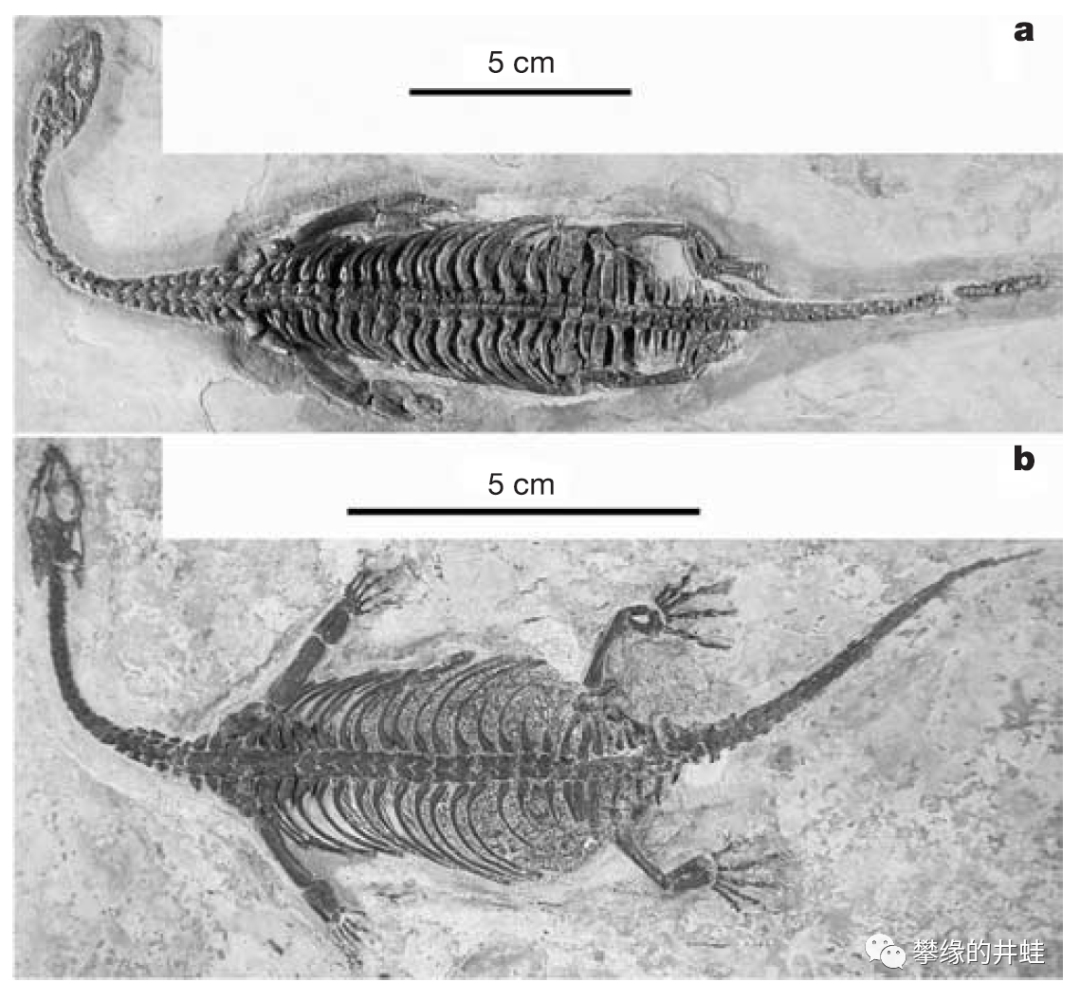
两个“怀孕”的胡氏贵州龙化石标本。图片来源自[23]。
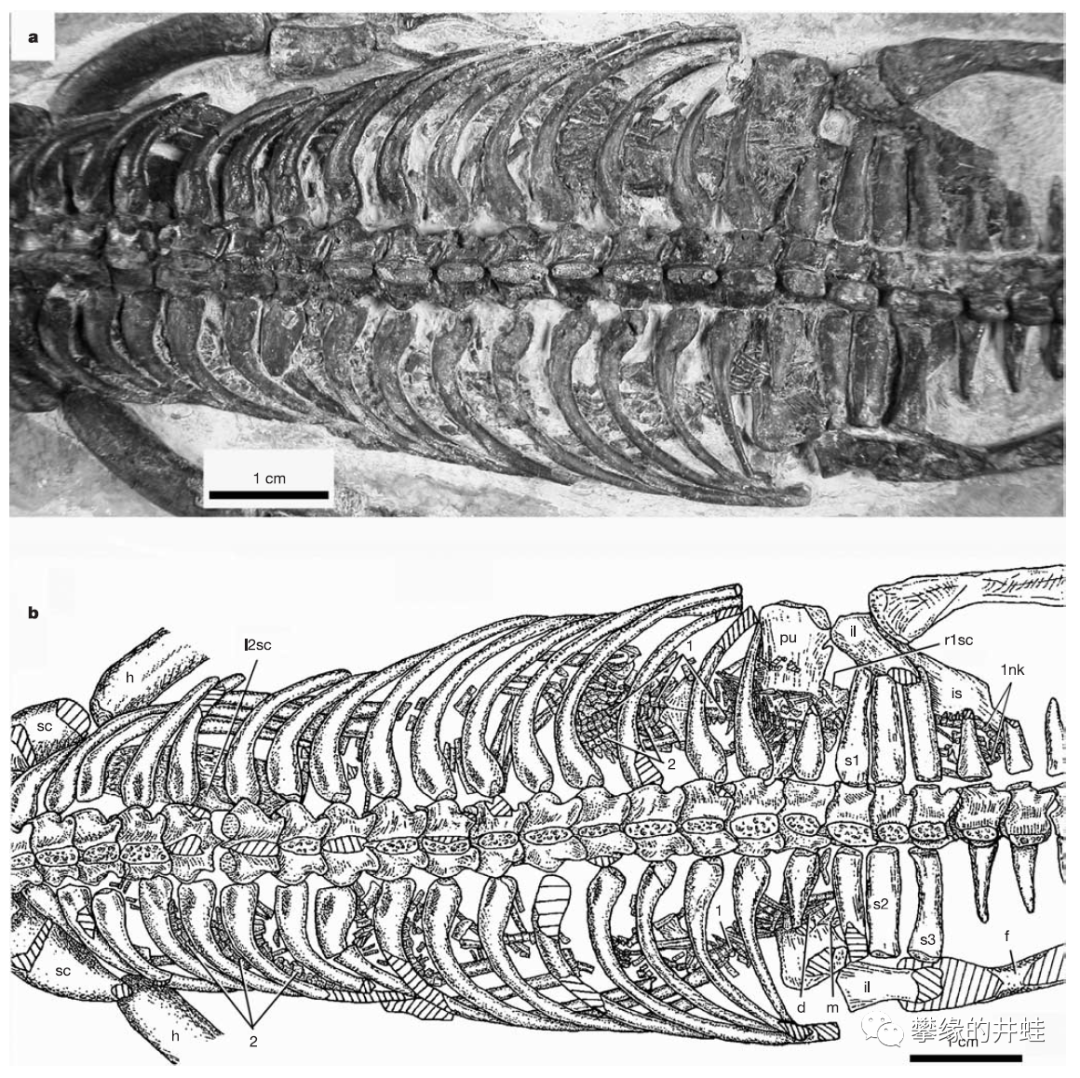
胡氏贵州龙化石腹腔中的胚胎骨骼。图片来源自[23]。
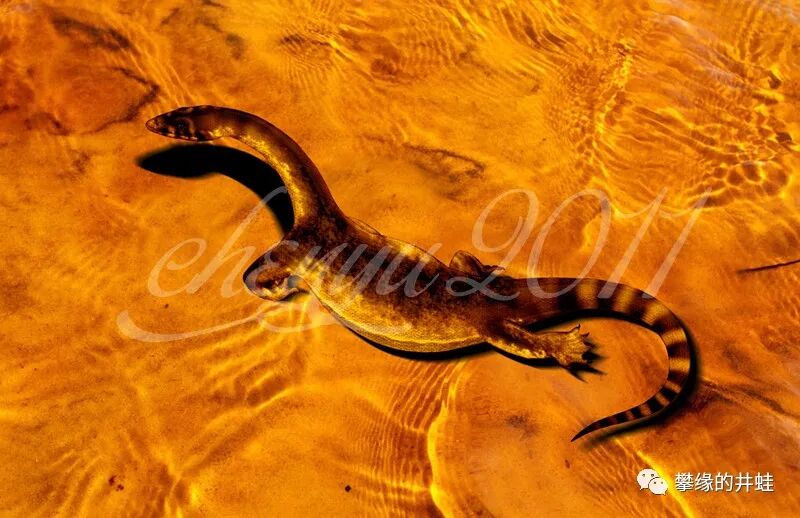
胡氏贵州龙复原图。其实肿肋龙也差不多都长这样,长短胖瘦稍有不同。图片来源自网络。
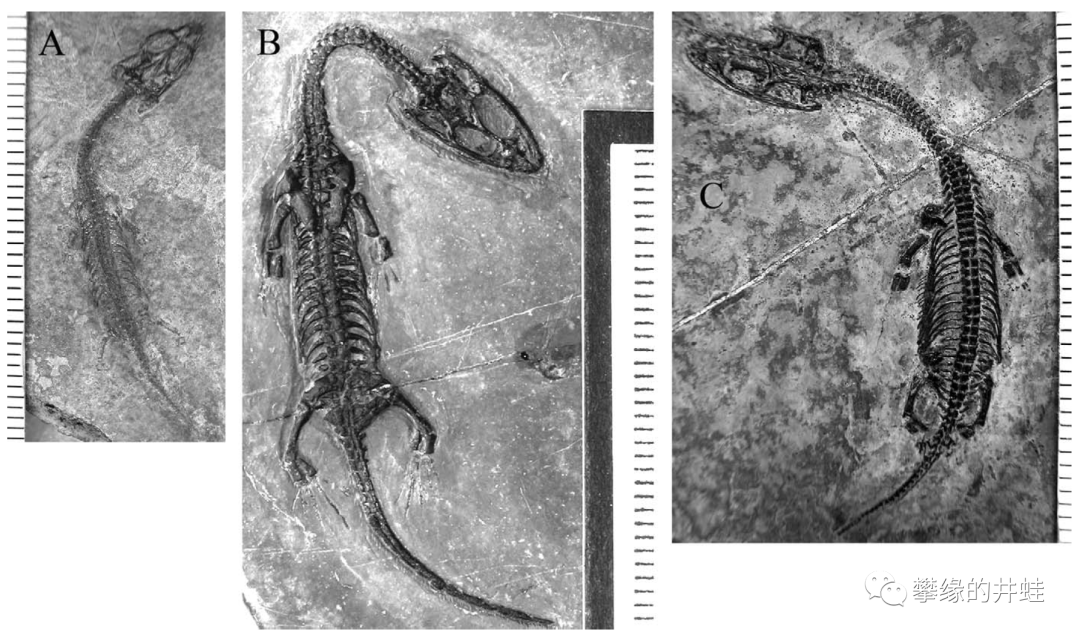
可能是刚刚出生的胡氏贵州龙幼体化石。小手小脚大脑袋,很可爱。图片来源自[24],标尺小格为1毫米。
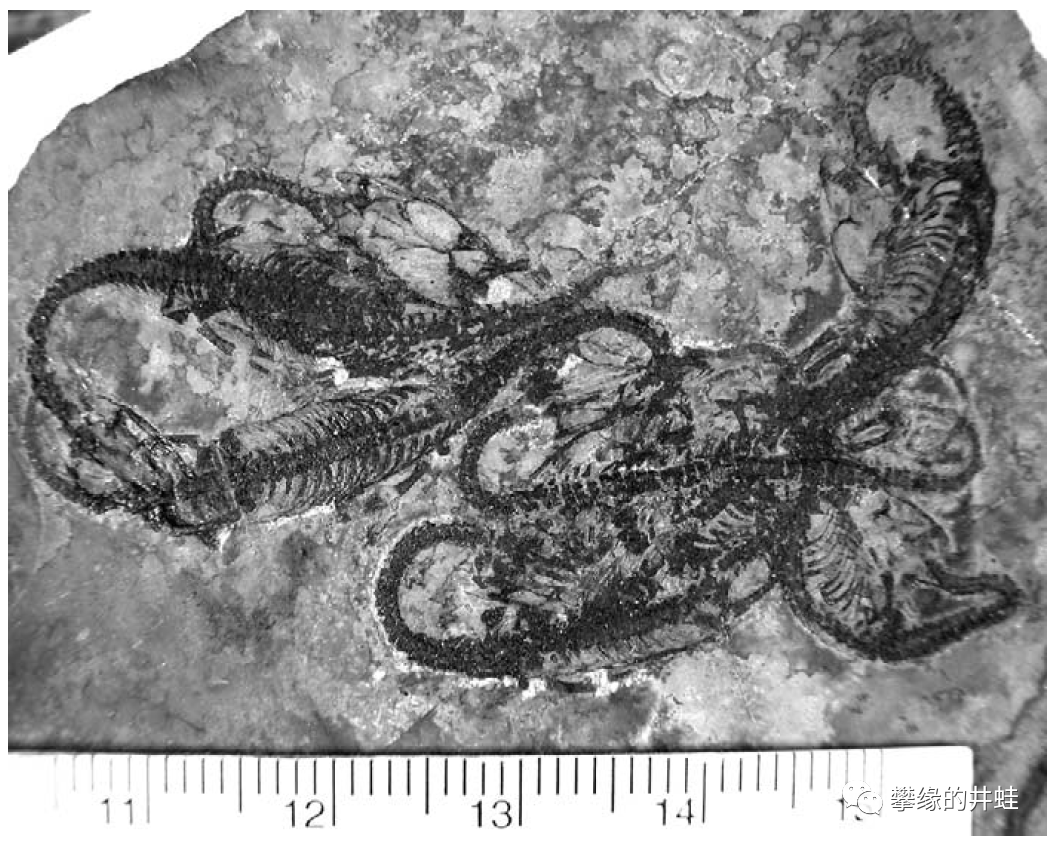
至少7条胡氏贵州龙幼体聚在一起。这景象让我想到鳄类的幼崽,不知它们的母亲是否会在旁边守护。图片来源自[24]。
本回到这里也就差不多了。湖北鳄目和鼻喙类,以及肿肋龙类的出现,标志着海洋逐渐从大灭绝后的沉寂中苏生,再次变得拥挤欢闹,也再次变得杀机四伏。
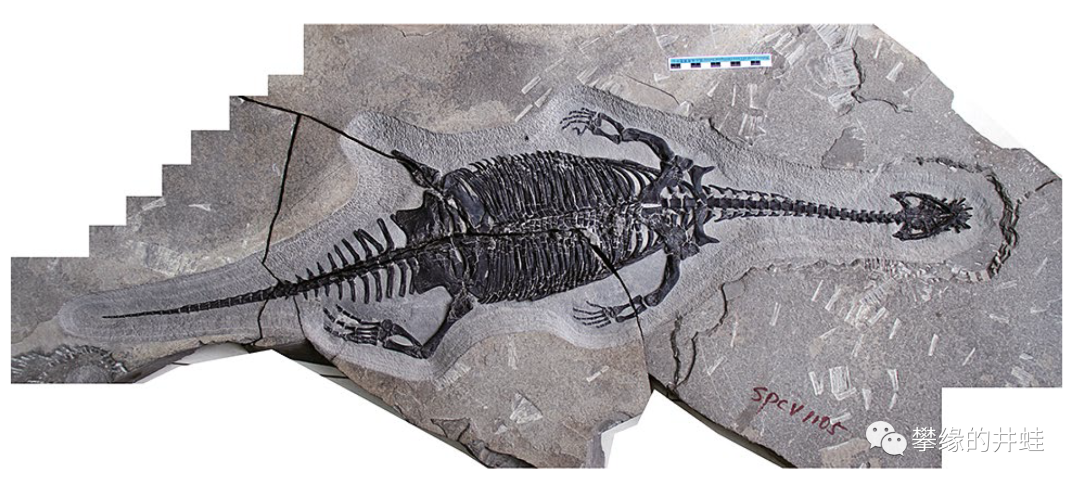
这个标本来自云南罗平生物群(中三叠世安尼期)。上面的动物骨骼结构和利齿滇东龙相似,可能是滇东龙属
Diandongosaurus
的一个新种,但体长却是利齿滇东龙的3倍以上,已经逼近肿肋龙类的体型极限。图中标尺长度10厘米,可以往上看看,对比一下利齿滇东龙化石的标尺。图片来源自[25]。
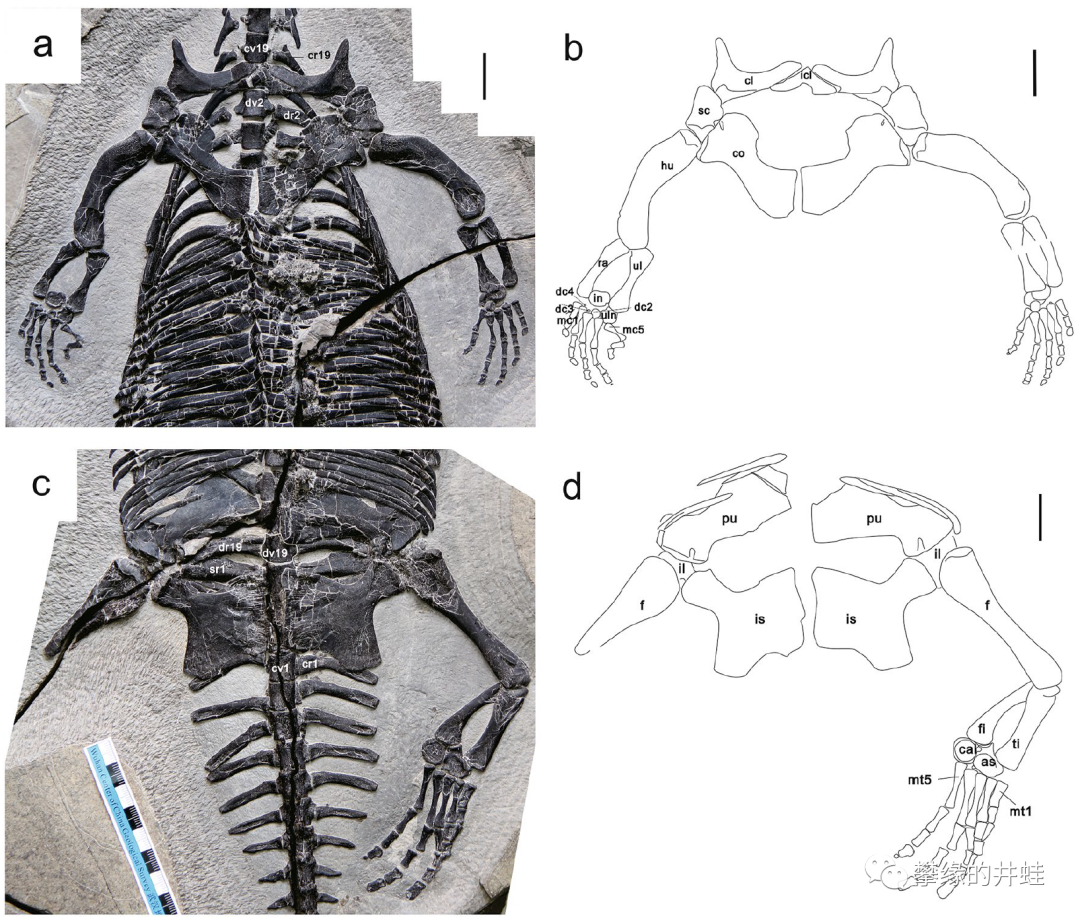
这条新发现的大型滇东龙也算是当时近海的一个小霸王。但是仔细看,它的左后腿膝关节和之后的部分都缺失了。这表明它遭到了更大的掠食者的攻击。图片来源自[25]。
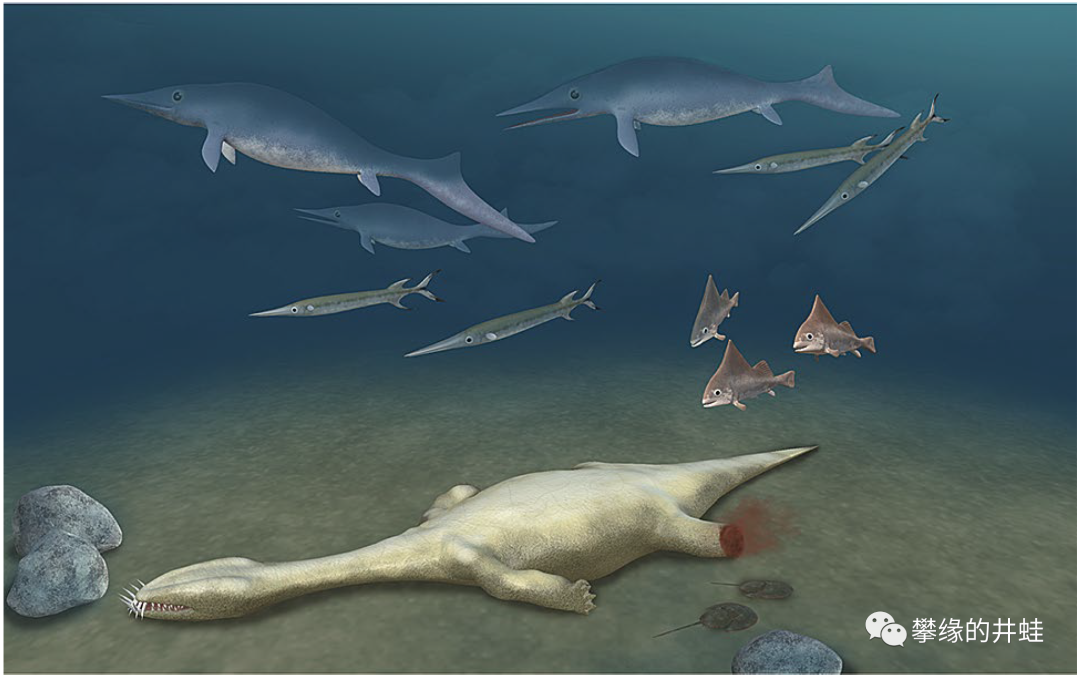
这桩远古凶案的现场复原图。旁观者的表情很传神。图片来源自[25],绘者:Tinglu Yang。
海爬的加入,让残破的食物链得以更快地填补完整,超级掠食者也不负众望地归来。一些海爬在“鱼形化”和“泛龟形化”的道路上比湖北鳄目、鼻喙类和肿肋龙类走得更快更远,抢先登上了海洋霸主的宝座,迫不及待地把血盆大口对准了一起下海的同侪。要知道它们的故事,请看下回。
地球名片
生物分类:动物界-脊索动物门-脊椎动物亚门-羊膜类-蜥形纲-双孔类-鱼龙形态类
存在时间:早三叠世 至 晚白垩世
现存种类:无
化石种类:未找到完整统计
生活环境:海洋
代表特征:高度鱼形化的海洋爬行动物,头骨只有一对上颞颥孔
主要类群:湖北鳄目、鼻喙类、鱼龙超目
参考文献
[1] Dayrat B, Goulding TC, Apte D, Bhave V,
Comendador J, Ngô XQ, Tan SK, Tan SH (2016) Integrative taxonomy of the genus
Onchidium Buchannan, 1800 (Mollusca, Gastropoda, Pulmonata, Onchidiidae).
ZooKeys 636: 1–40. doi: 10.3897/zookeys.636.8879
[2] Ronald Sluys, The
evolutionary terrestrialization of planarian flatworms (Platyhelminthes,
Tricladida, Geoplanidae): a review and research programme. Zoosyst. Evol.,
95(2), 2019, 543–556, DOI: 10.3897/zse.95.38727
[3] Ralf WERNEBURG, Frederik SPINDLER,
Jocelyn FALCONNET, et al., A new caseid synapsid from the Permian (Guadalupian)
of the Lodève basin (Occitanie, France). PALAEOVERTEBRATA, VOL.45 (2)-e2, DOI:
10.18563/pv.45.2.e2
[4] Cajus G. Diedrich, Middle Triassic
chirotherid trackways on earthquake influenced intertidal limulid reproduction
flats of the European Germanic Basin coasts. Cent. Eur. J. Geosci., 4(3), 2012,
495-529, DOI: 10.2478/s13533-011-0080-9
[5] MacLeod A et al., Hybridization
masks speciation in the evolutionary history of the Gala′pagos marine iguana. Proc. R. Soc. B 282: 20150425., 2015, doi:
10.1098/rspb.2015.0425
[6] https://www.reptilesofecuador.com/hybrid_iguana.html
[7] Ryosuke Motani, The Evolution of
Marine Reptiles. Evo Edu Outreach, 2: 224–235, 2009, DOI:
10.1007/s12052-009-0139-y
[8] Ryosuke Motani, The Evolution of Marine
Reptiles. Evo Edu Outreach, 2: 224–235, DOI 10.1007/s12052-009-0139-y, 2009
[9] https://didatico.igc.usp.br/fosseis/repteis-mesossaurideos/
[10] Zhuo Wang, Juan Pascual-Anaya, Amonida
Zadissa, et al., The draft genomes of soft-shell turtle and green sea turtle
yield insights into the development and evolution of the turtle-specific body
plan. Nature Genetics, VOLUME 45, NUMBER 6, 2013
[11] Jiang, D.-Y.et al. A
large aberrant stem ichthyosauriform indicating early rise and demise of
ichthyosauromorphs in the wake of the end-Permian extinction. Sci. Rep. 6,
26232, 2016, doi: 10.1038/srep26232
[12] Qiang Li, Jun Liu, An Early Triassic
sauropterygian and associated fauna from South China provide insights into
Triassic ecosystem health. COMMUNICATIONS BIOLOGY, 3: 63, 2020, doi:
10.1038/s42003-020-0778-7
[13] Yu Qiao, Masaya Iijima &
Jun Liu (2020): The largest hupehsuchian (Reptilia,
Ichthyosauromorpha) from the Lower
Triassic of South China indicates early establishment of high predation
pressure after the Permo-Triassic mass extinction, Journal of Vertebrate
Paleontology, DOI: 10.1080/02724634.2019.1719122
[14] 程龙, 阎春波, 陈孝红, et al., 湖北省南漳/远安动物群特征及其意义初探. 中国地质, Vol. 42(2): 676-684, 2015
[15] Chen X-h, Motani R, Cheng L,
Jiang D-y, Rieppel O (2014) A Carapace-Like Bony ‘Body Tube’ in an Early
Triassic Marine Reptile and the Onset of Marine Tetrapod Predation. PLoS ONE
9(4): e94396. doi:10.1371/journal.pone.0094396
[16] Huang J-d, Motani R, Jiang D-y,
Tintori A, Rieppel O, Zhou M, Ren X-X, Zhang R. 2019. The new ichthyosauriform
Chaohusaurus brevifemoralis (Reptilia, Ichthyosauromorpha) from Majiashan,
Chaohu, Anhui Province, China. PeerJ, 7: e7561 DOI 10.7717/peerj.7561
[17] Ryosuke Motani, Da-Yong Jiang,
Guan-Bao Chen, et al., A basal ichthyosauriform with a short snout from the
Lower Triassic of China. Nature, 2014, doi: 10.1038/nature13866
[18] Jian-dong Huang, Ryosuke
Motani, Da-yong Jiang, et al., Repeated evolution of durophagy during
ichthyosaur radiation after mass extinction indicated by hidden dentition.
Scientific Reports, 10: 7798, 2020, doi: 10.1038/s41598-020-64854-z
[19] Fleischle CV, Sander PM,
Wintrich T, Caspar KR. 2019. Hematological convergence between Mesozoic marine
reptiles (Sauropterygia) and extant aquatic amniotes elucidates diving
adaptations in plesiosaurs. PeerJ 7:e8022 DOI 10.7717/peerj.8022
[20] Guang
‑
Hui Xu, Yi Ren, Li
‑
Jun Zhao, et al., A
long
‑
tailed marine reptile from China provides new insights into the
Middle Triassic pachypleurosaur radiation. Scientific Reports, 12:7396, 2022,
doi: 10.1038/s41598-022-11309-2
[21] XIAO-CHUN WU, YEN-NIEN CHENG,
CHUN LI, et al., NEW INFORMATION ON WUMENGOSAURUS DELICATOMANDIBULARIS JIANG ET
AL., 2008 (DIAPSIDA: SAUROPTERYGIA), WITH A REVISION OF THE OSTEOLOGY AND
PHYLOGENY OF THE TAXON. Journal of Vertebrate Paleontology, 31(1):70–83, 2011, DOI: 10.2307/25835804
[22] LIU Xue-Qing, LIN Wen-Bin,
Olivier RIEPPEL, et al., A new specimen of
Diandongosaurus acutidentatus
(Sauropterygia) from the Middle Triassic of Yunnan, China. VERTEBRATA
PALASIATICA, Vol. 53, Issue 4, pp. 281-290, 2015
[23] Yen-nien Cheng, Xiao-chun Wu,
Qiang Ji, Triassic marine reptiles gave birth to live young. NATURE, VOL 432,
2004, DOI: 10.1038/nature03050
[24] YEN-NIEN CHENG, ROBERT HOLMES,
XIAO-CHUN WU, et al., SEXUAL DIMORPHISM AND LIFE HISTORY OF KEICHOUSAURUS HUI
(REPTILIA: SAUROPTERYGIA). Journal of Vertebrate Paleontology, 29(2): 401–408, 2009, DOI: 10.1671/039.029.0230
[25] Qiling Liu, Tinglu Yang, Long
Cheng, et al., An injured pachypleurosaur (Diapsida: Sauropterygia) from the
Middle Triassic Luoping Biota indicating predation pressure in the Mesozoic.
Scientific Reports, 11: 21818, 2021, doi: 10.1038/s41598-021-01309-z
[26] Shang Q H, Li C, Wu X C, New
information on Dianmeisaurus gracilis Shang & Li, 2015. Vertebrata
PalAsiatica, 55(2): 145-161, 2017
 攀缘的井蛙约 25 分钟