书接上回。肿肋龙在始鳍龙类的演化史上处在基干位置;在三叠纪的海洋食物链上也一直在中下层徘徊。简单来说,就是“混得不怎么样”的意思。即使是成长到极限体型的肿肋龙,也难免沦为其他海爬的食物。
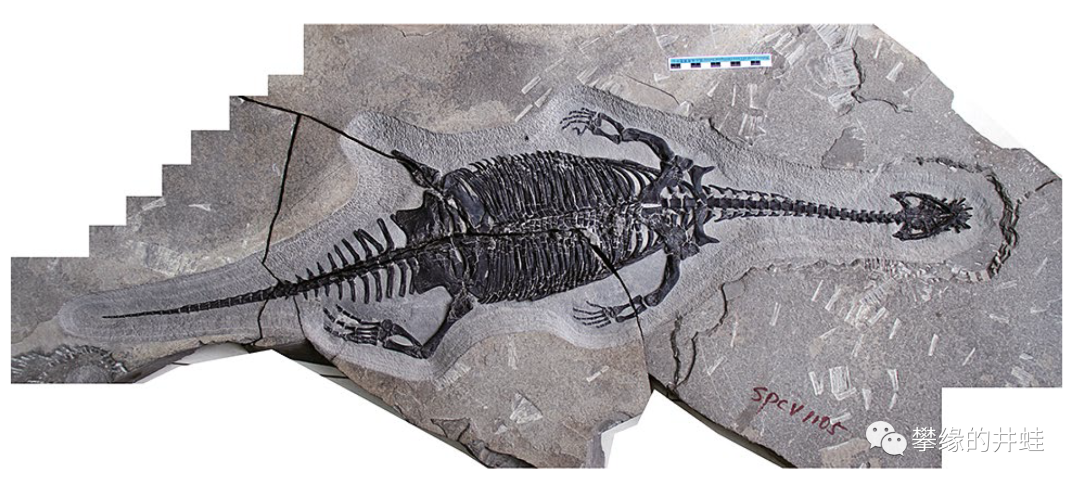
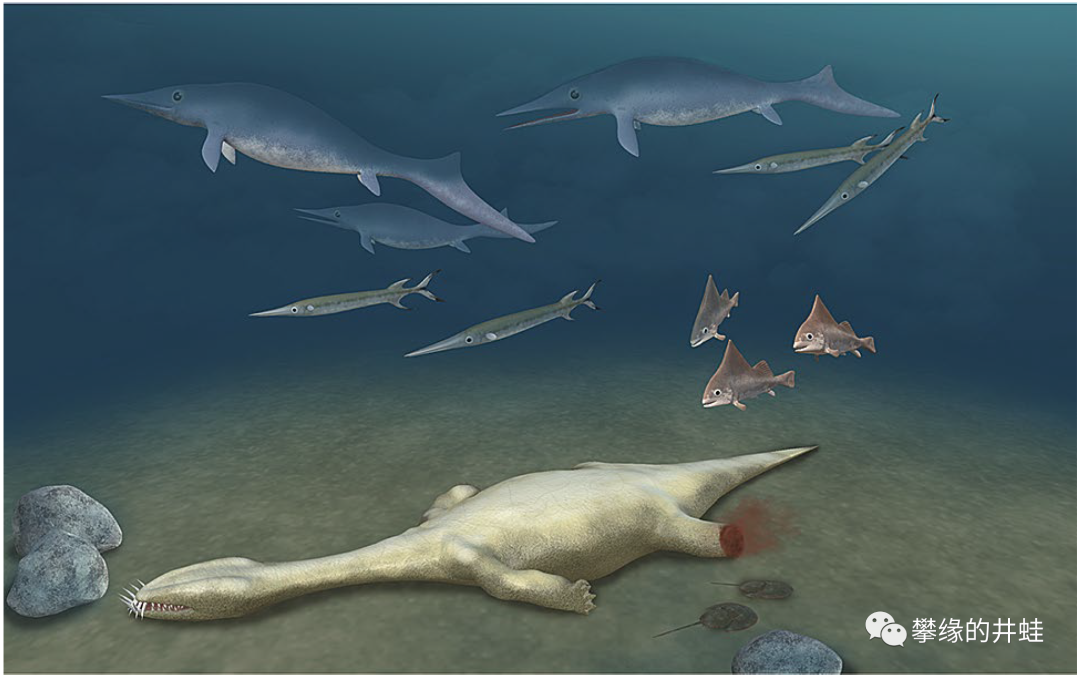
罗平生物群发现的大个体滇东龙
Diandongsaurus
化石。它曾经遭到攻击,失去一条后腿。图片来源自[1],标尺长度10厘米。
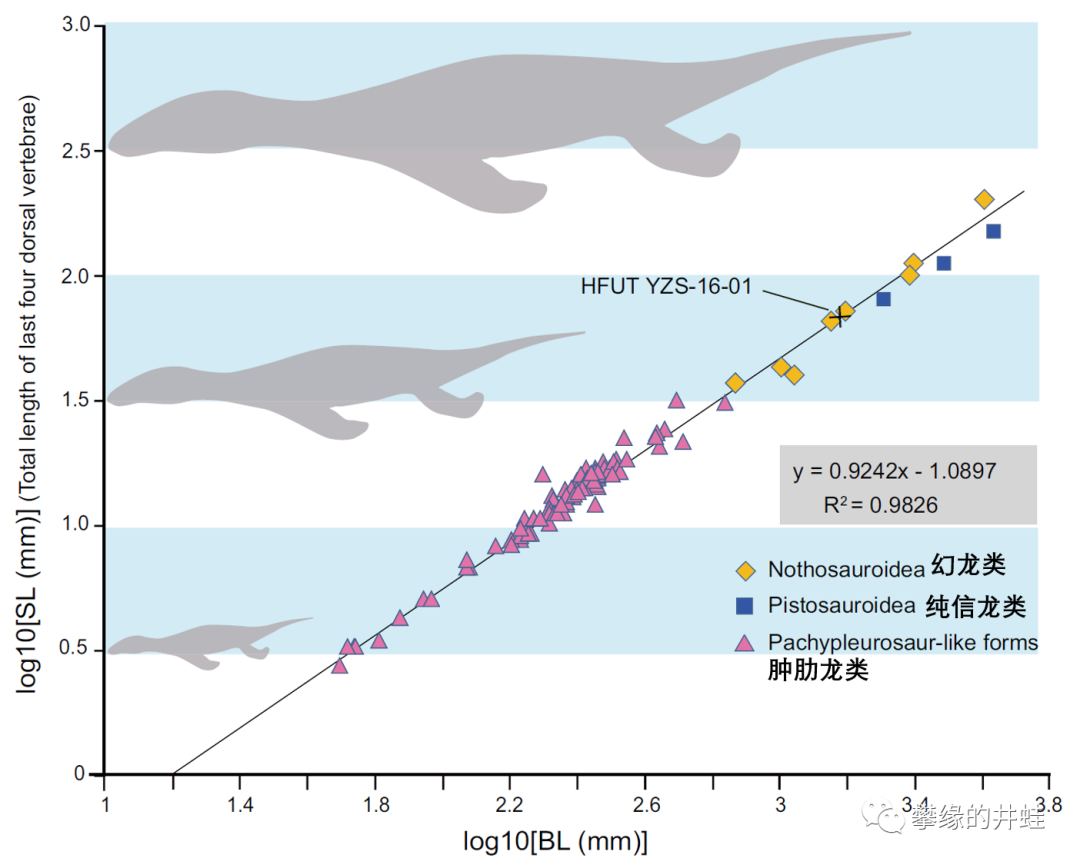
三叠纪始鳍龙类的体长分布统计。可以看到肿肋龙类(紫色三角形)的体长都在0.8米(10ˆ2.9)以下。幻龙类(黄色菱形)和纯信龙类(蓝色正方形)明显要大得多,它们普遍比肿肋龙类高了1~2个营养级。图片来源自[2]。
幻龙类(Nothosauroidea,也译作幻龙目)主要包括各种“幻龙
Nothosaurus
”和“鸥龙
Lariosaurus
”,以及其他一些近缘物种。从早三叠世到中三叠世,幻龙类非常繁盛;中国、欧洲和北美都发现了众多标本。
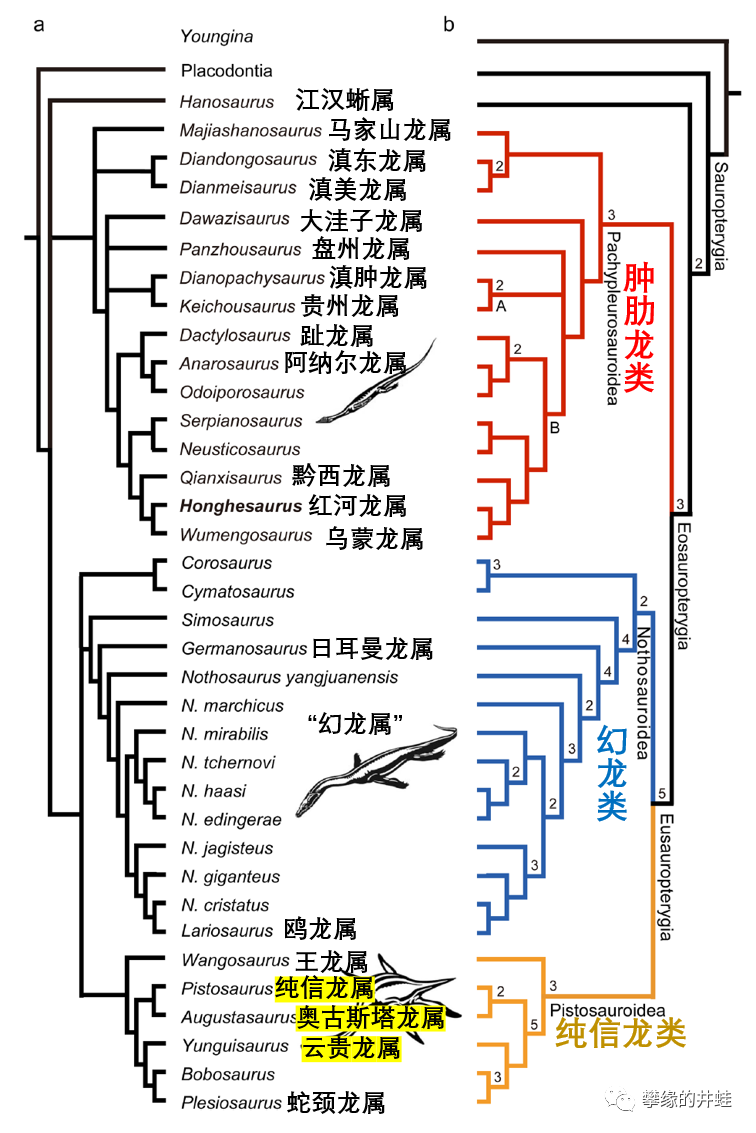
肿肋龙类、幻龙类和纯信龙类的系统发生关系。相比“蜥蜴形”的肿肋龙类,幻龙类水栖化,或者说,“泛龟化”程度更高。图片来源自[3]。
绝大多数幻龙目动物都被命名为“某某幻龙”或者“某某鸥龙”,但也有少数例外,比如这些:
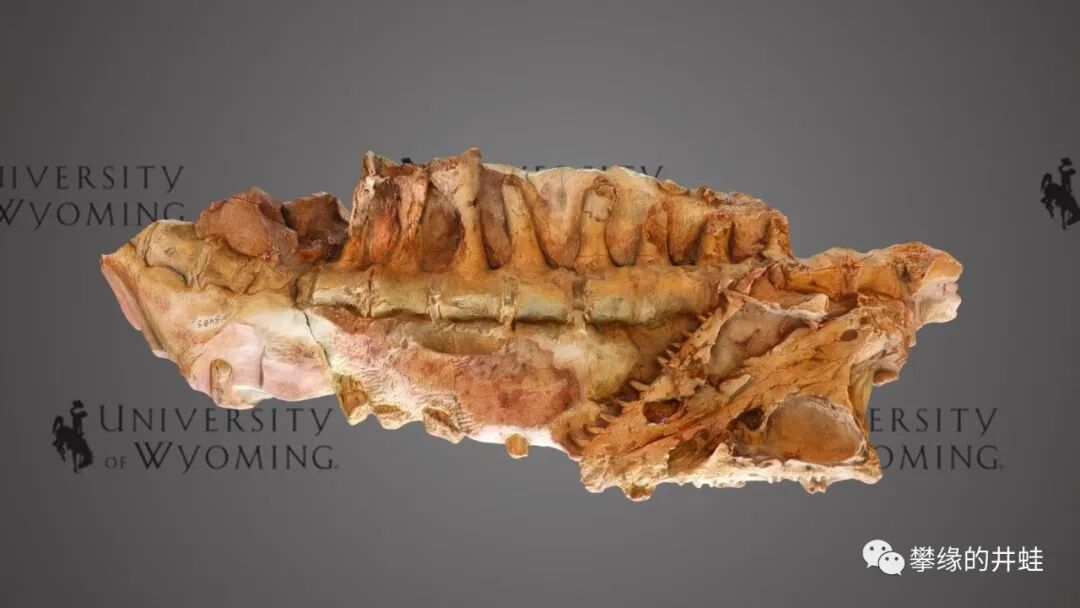
怀俄明州发现的早三叠世幻龙类
Corosaurus alcovensis
化石。图片来源自[4]。
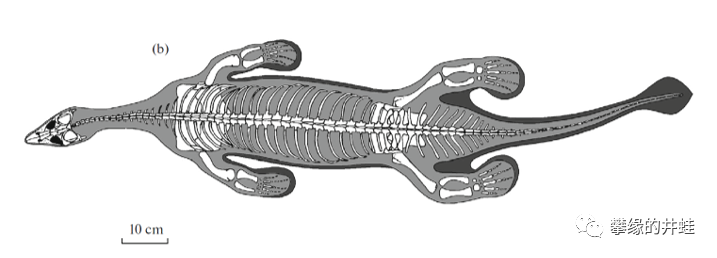
Corosaurus alcovensis
骨骼结构图。它是目前已知最早的幻龙类。图片来源自[5]。
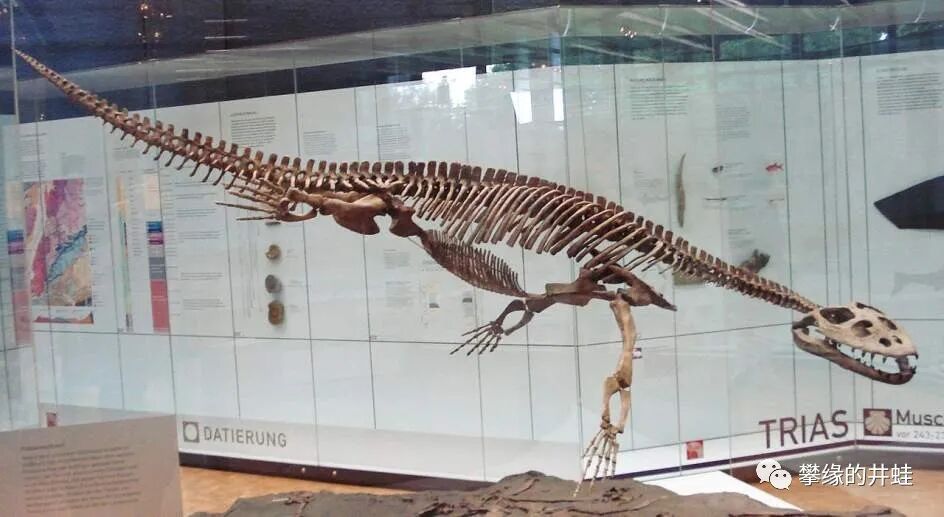
德国斯图加特州立自然博物馆(the Staatliches Museum für Naturkunde, Stuttgart)展出的中三叠世幻龙类
Simosaurus
(也许可以译为“西蒙龙”或者“赛门龙”)。
Simosaurus
体长可以达到3米,已经算是名副其实的“海怪”了。图片来源自网络。
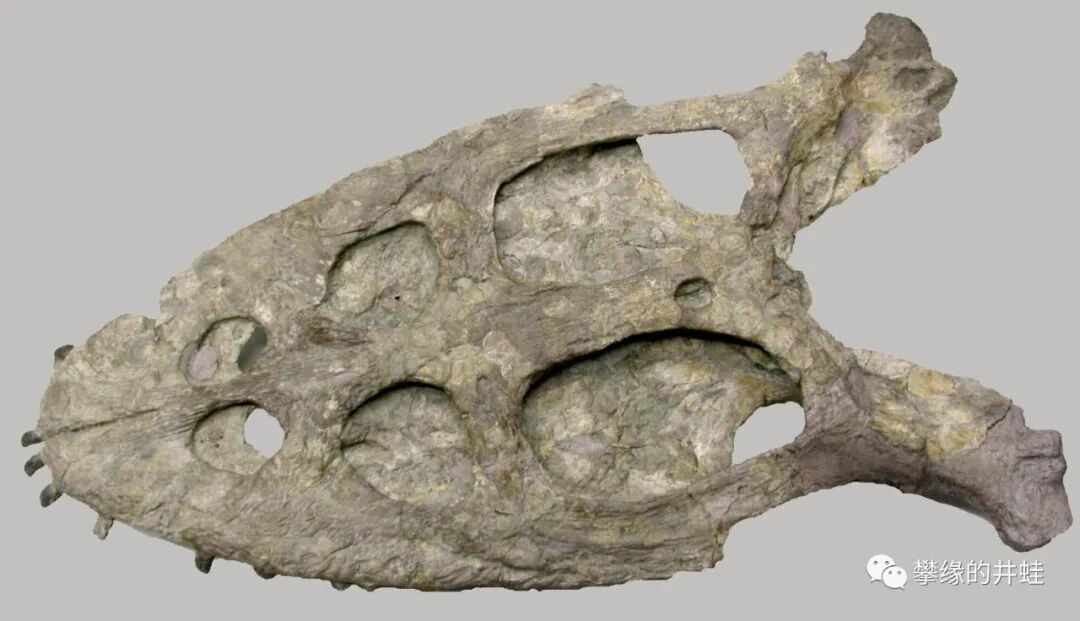
德国壳灰岩博物博馆(Muschelkalk museum)收藏的
Simosaurus gaillardoti
头骨化石。图片来源自[6]。
下面是最狭义的“幻龙”,也就是幻龙属
Nothosaurus
的成员:
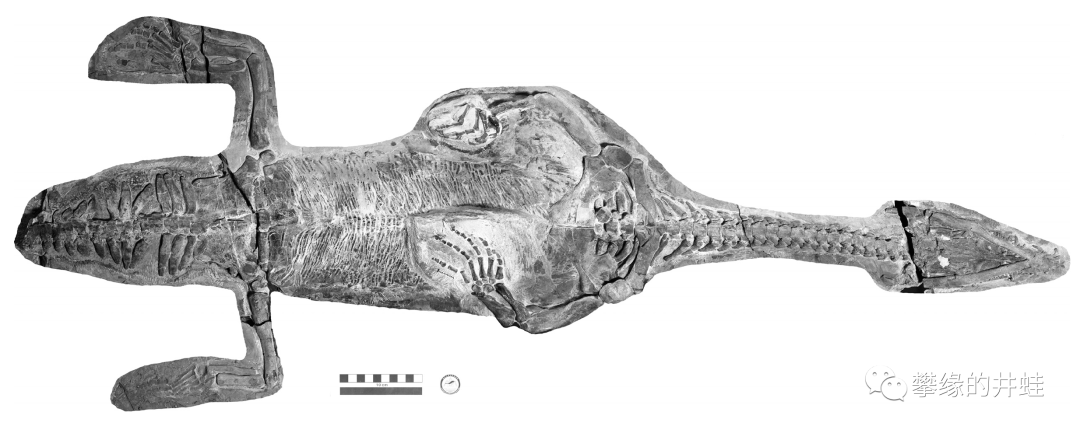
贵州兴义生物群(中三叠世)发现的杨氏幻龙
Nothosaurus Youngi
标本。图片来源自[7],标尺长度10厘米。
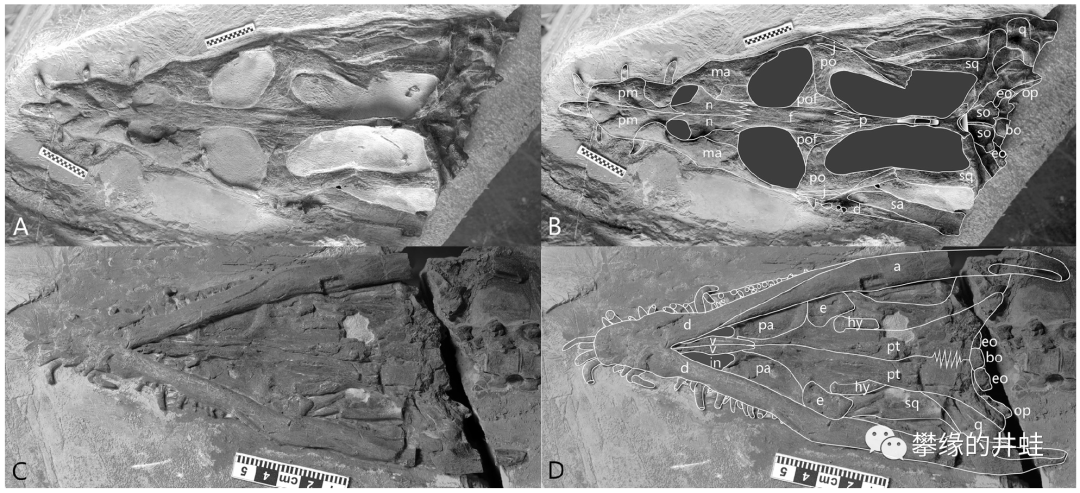
杨氏幻龙头骨放大。图片来源自[7],A、B图标尺长度2厘米,C、D图标尺长度5厘米。
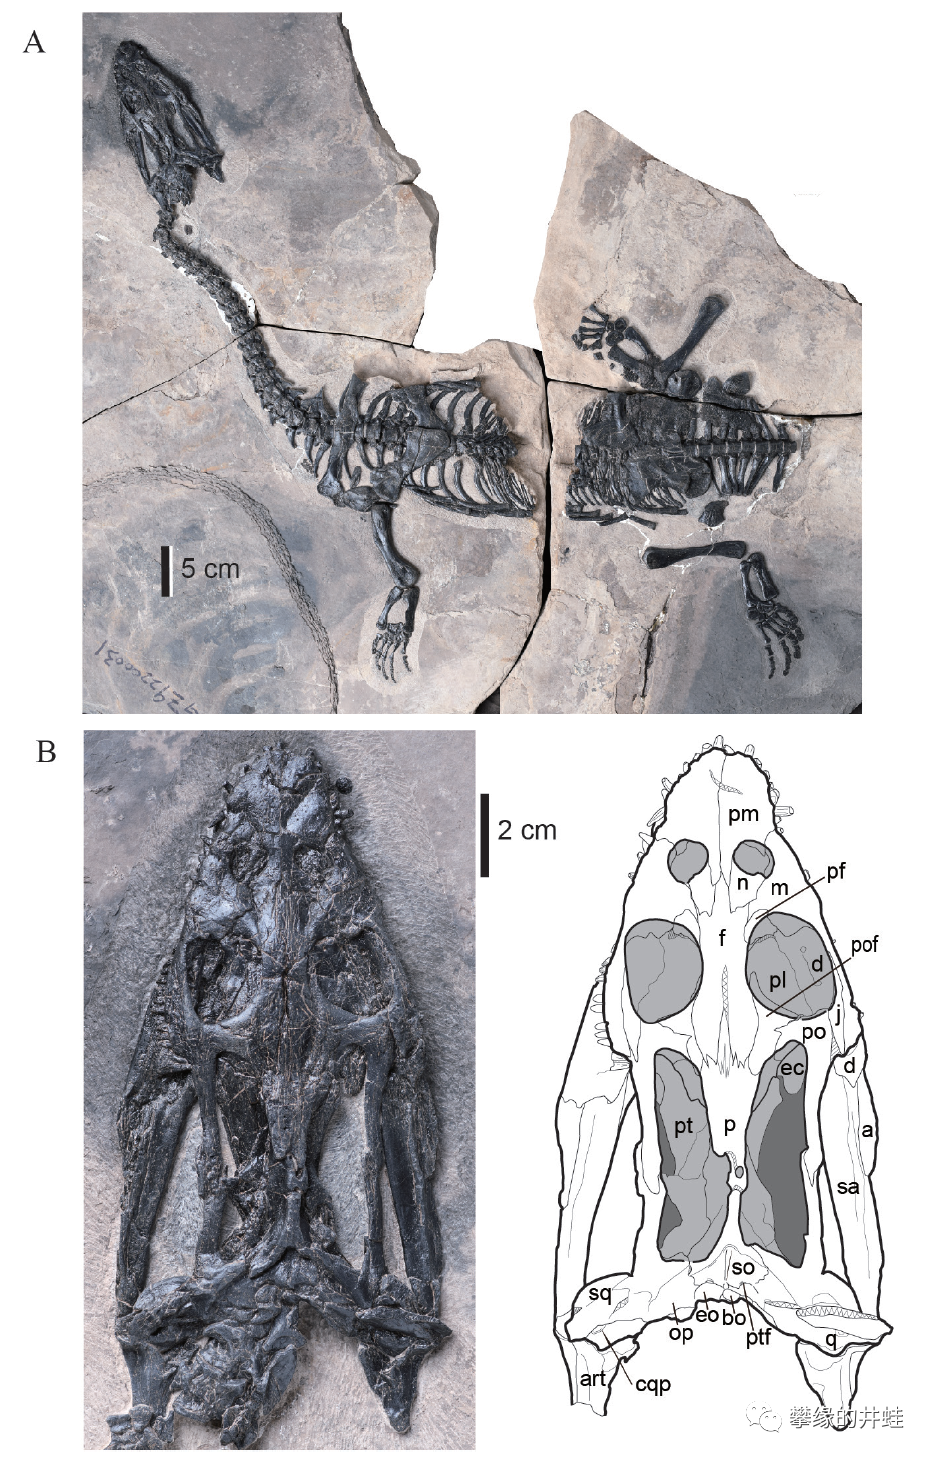
云南罗平生物群出土的罗平幻龙
Nothosaurus luopingensis
化石。图片来源自[8]。
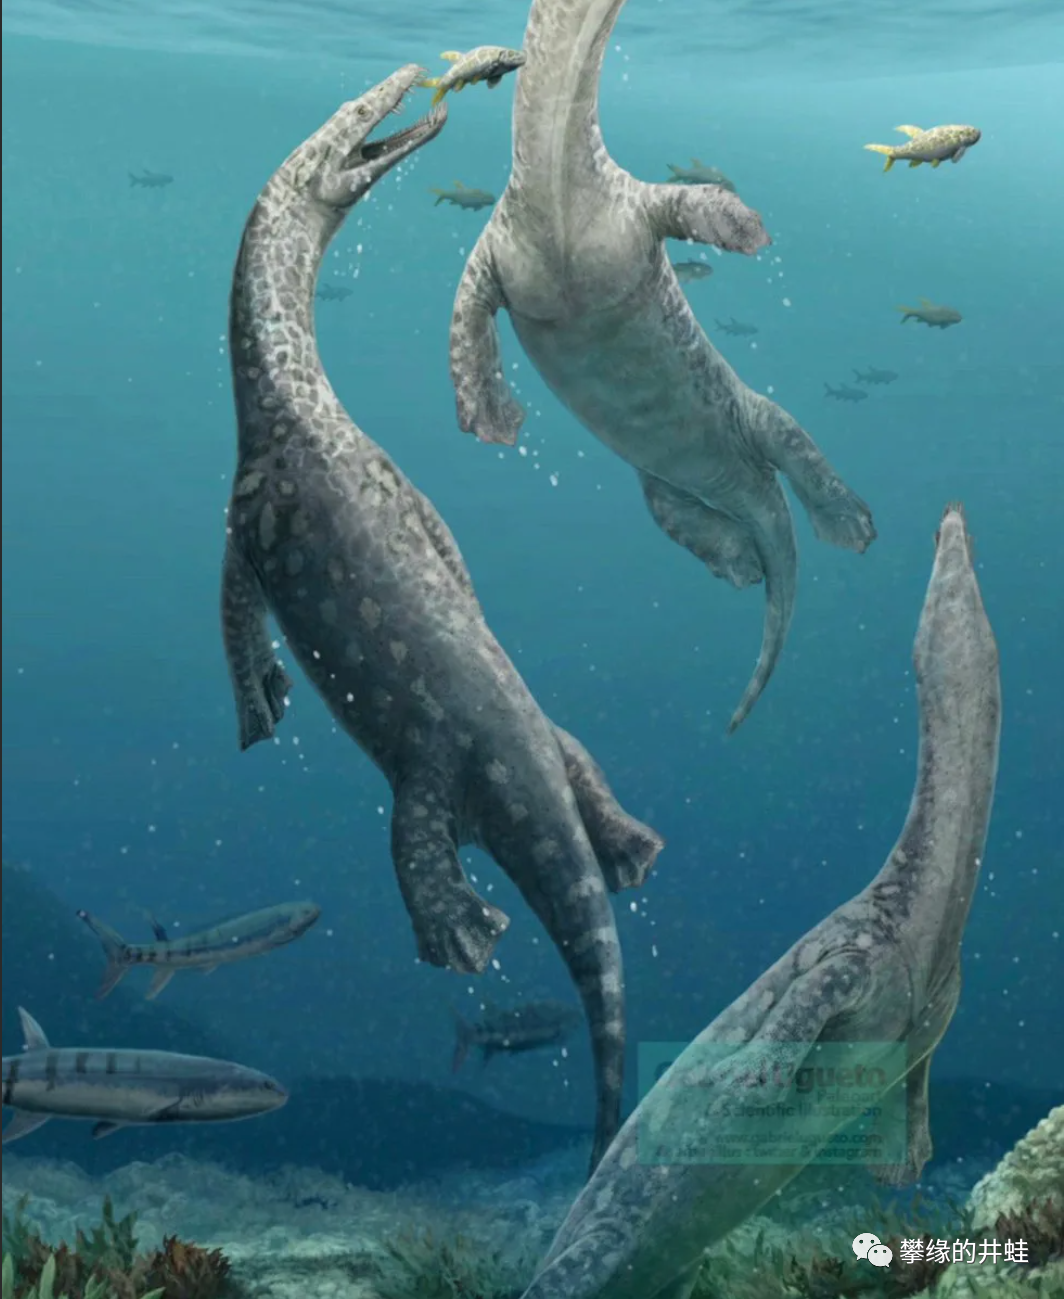
比较典型的幻龙复原图。图片来源见水印。
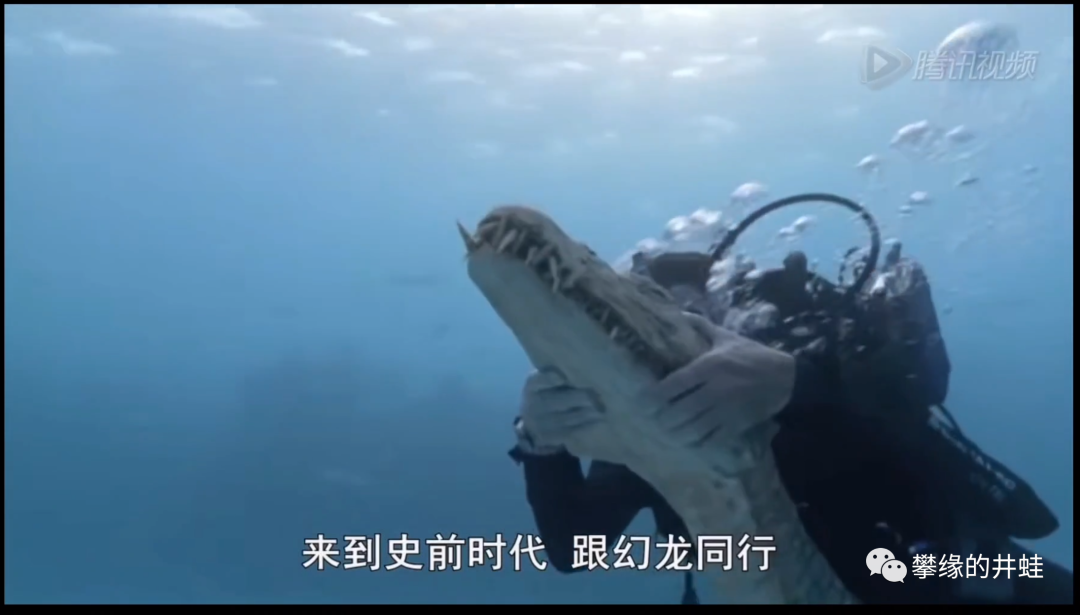
BBC纪录片《Sea Monsters》里出场的幻龙。大而扁平的头部和龇出嘴边的长牙非常适合捕食鱼类,和小型海爬。这片海域里还有长颈龙
Tanystropheus
和杯椎鱼龙
Cymbospondylus
,应该是位于特提斯海西岸(现在的欧洲)。
幻龙占据着近海食物链的中高层,它们的出现,标志着复杂的多层级食物网再次建立,海洋生态系统走出了大灭绝的阴霾。
一些幻龙体型巨大,足以跻身三叠纪海洋的首批超级掠食者(Apex Predators),代表是罗平生物群的张氏幻龙
Nothosaurus zhangi
和欧洲的巨型幻龙
Nothosaurus
giganteus
。
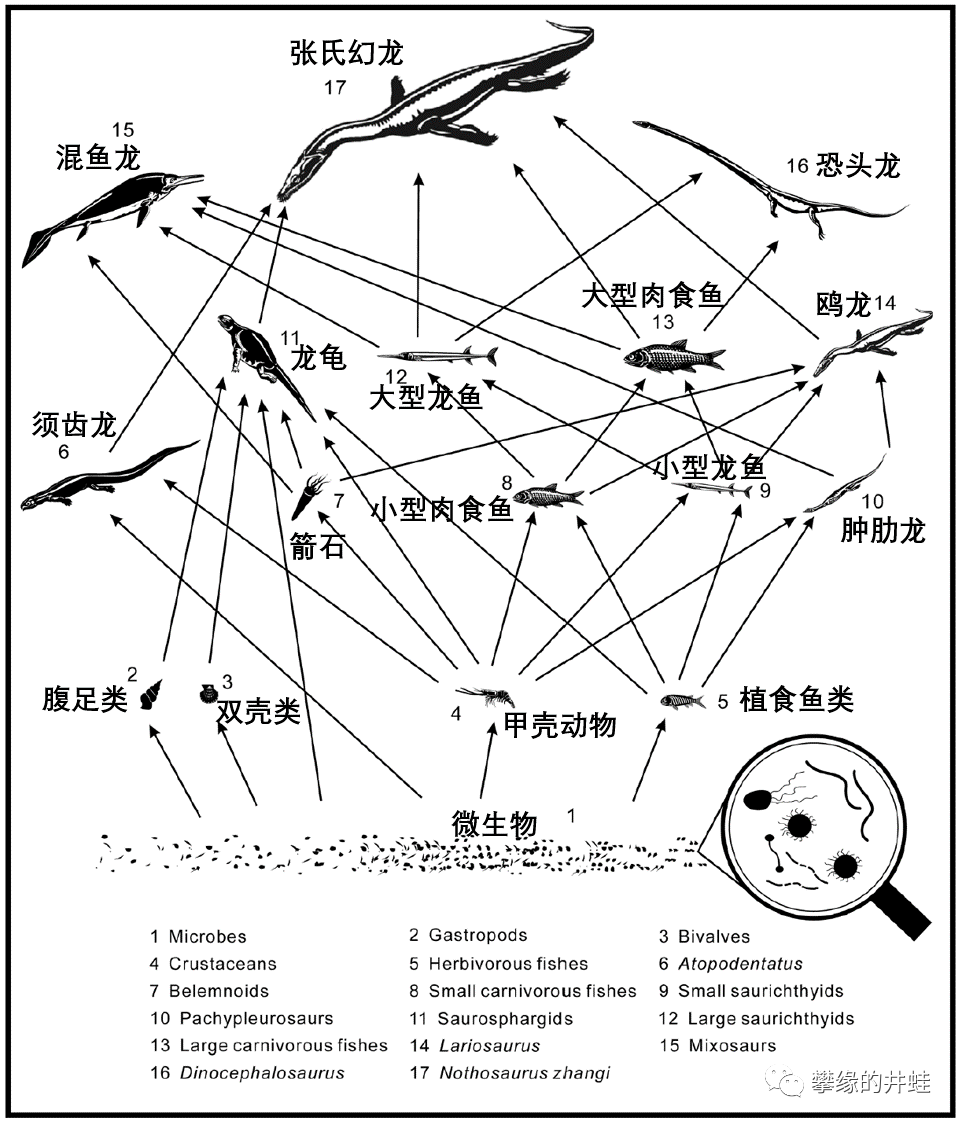
罗平生物群的食物网。张氏幻龙是这片海域的统治者。还记得开头那条丢了后腿的滇东龙吗?它的位置大概在10到14之间。攻击它的有可能就是张氏幻龙。图片来源自[9]。
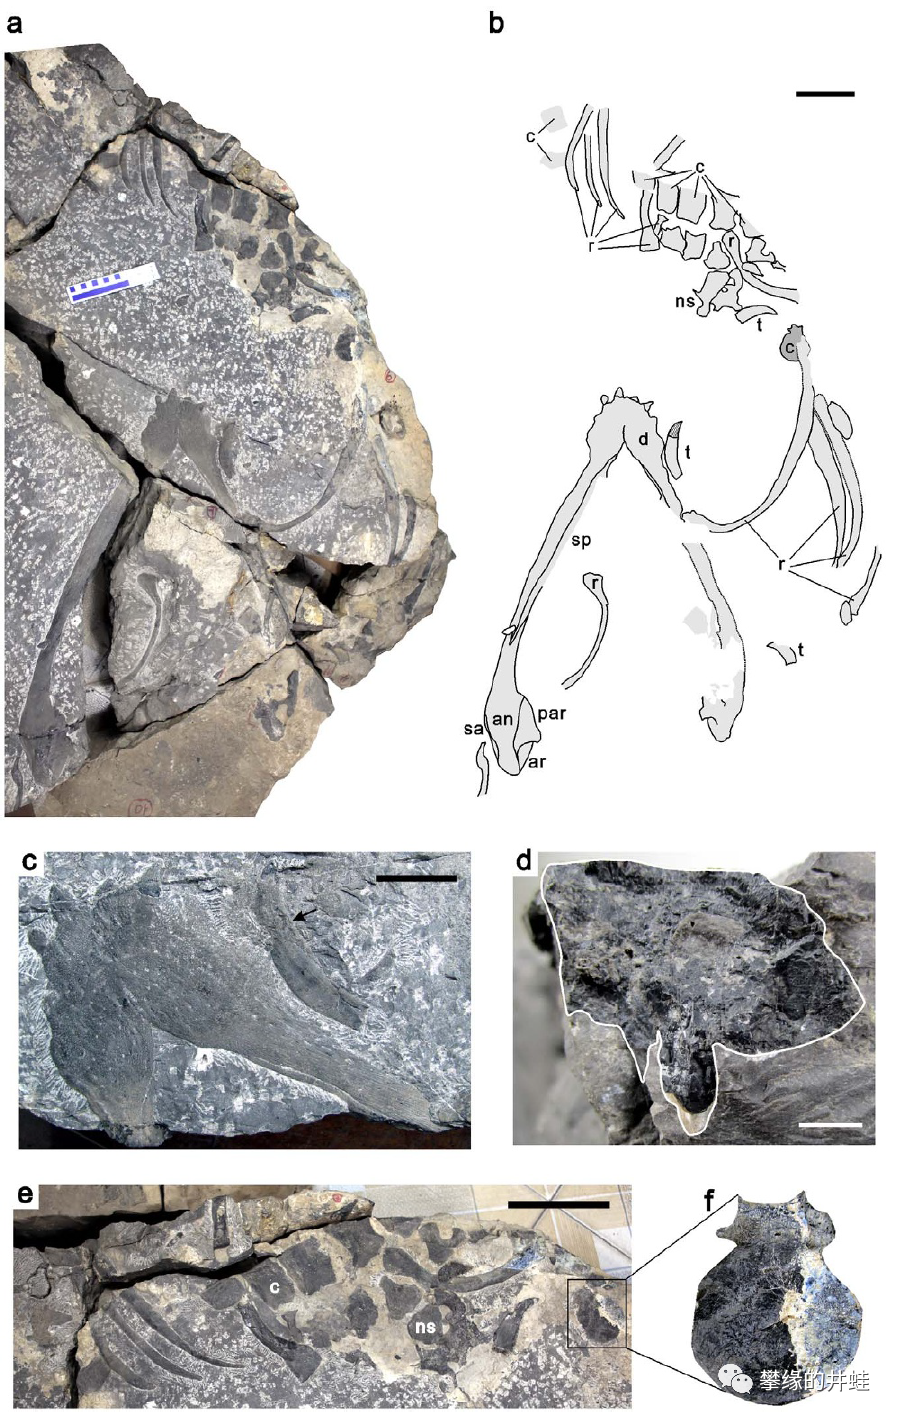
张氏幻龙模式标本(LPV 2067),包括一块比较完整的下颌,以及少量散落的肋骨和脊椎。图片来源自[9]。
张氏幻龙这个学名总让我想起张宗昌的那句“玉皇爷爷也姓张”。它的下颌长达65厘米,推测全长5至7米。张氏幻龙在2014年被发现。在这之前,三叠纪最大鳍龙类的桂冠属于1965年在欧洲出土的巨型幻龙
Nothosaurus giganteus
[10]。巨型幻龙最大头骨长61厘米,下颌骨最长59厘米,推测体长也在5米以上。
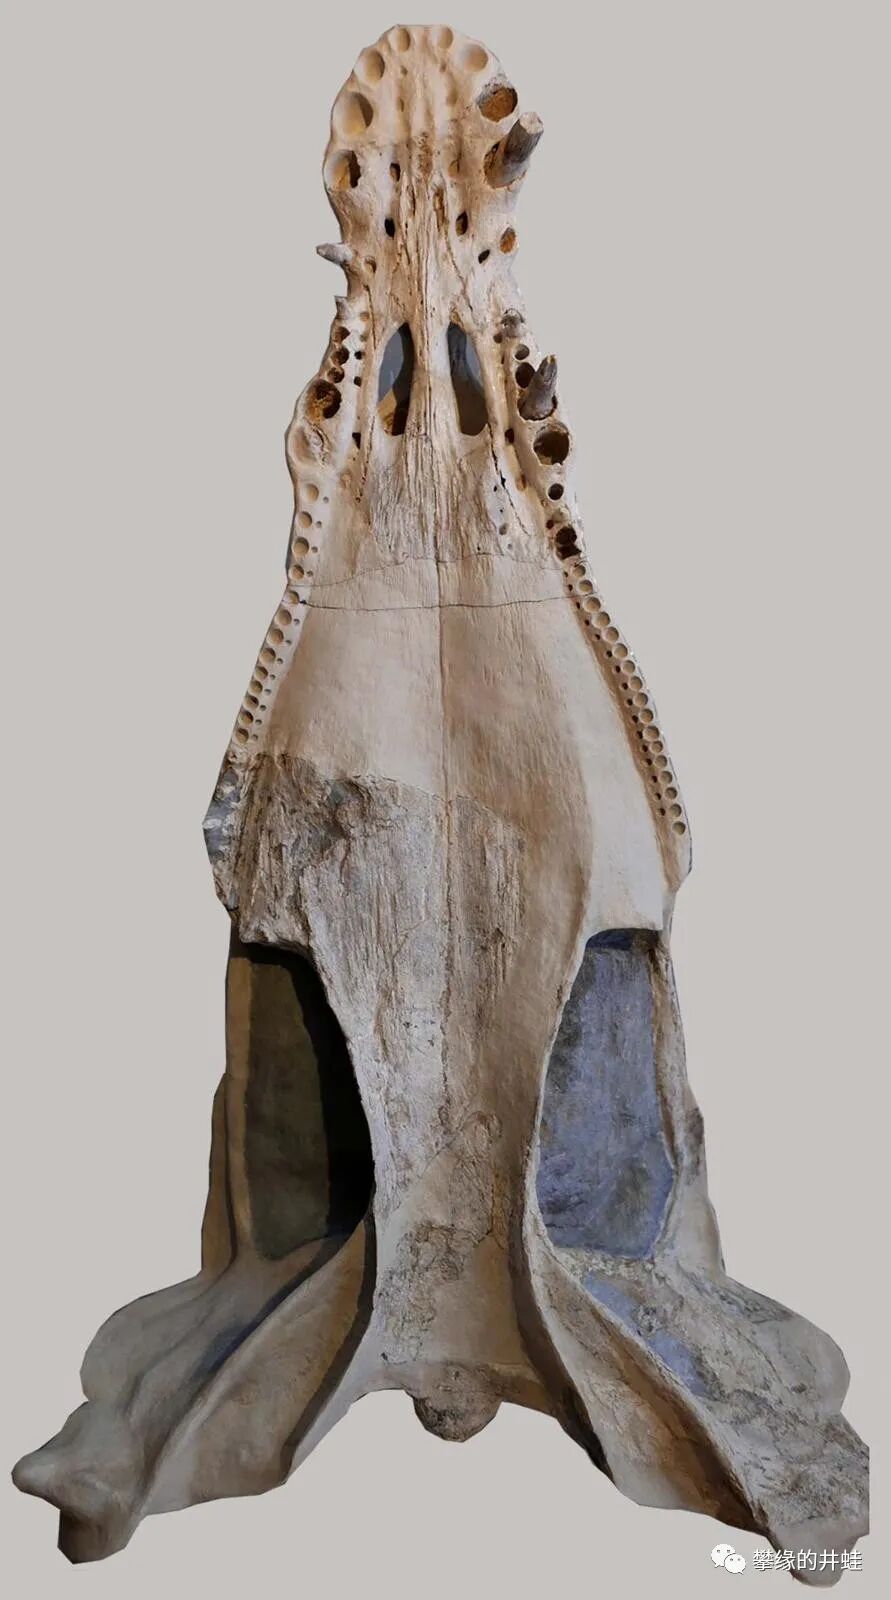
60厘米长的巨型幻龙头骨,收藏于德国壳灰岩博物博馆。图片来源自[6]。
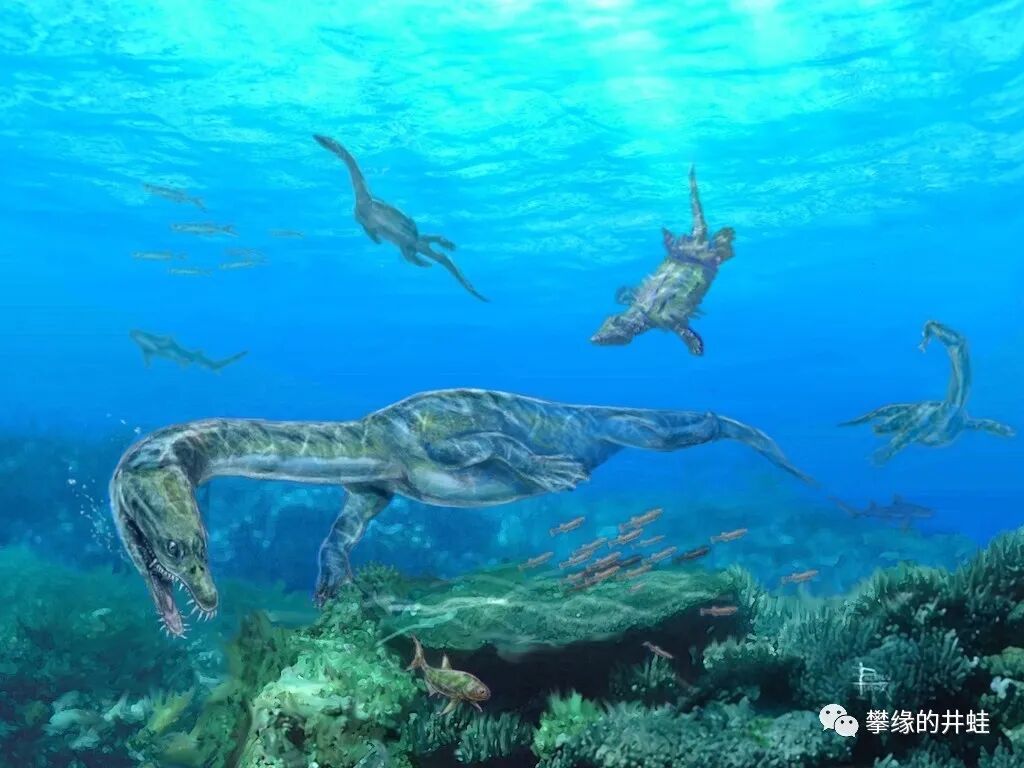
巨型幻龙复原图。它的体型比张氏幻龙稍逊一筹。张氏幻龙生活在特提斯海东岸,巨型幻龙生活在特提斯海西岸,可以算是幻龙家族的东西二帝了。图片来源自网络。
除了张氏幻龙和巨型幻龙,幻龙家族中很可能还有一个年代更早的大块头。
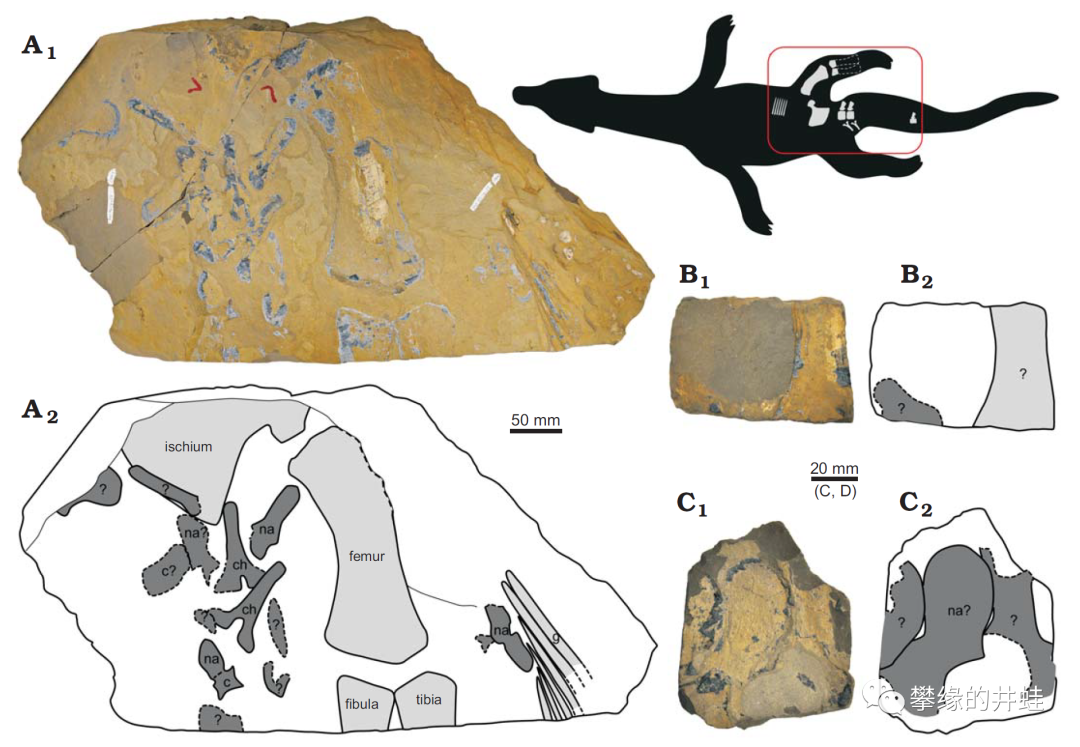
加拿大不列颠哥伦比亚省(British Columbia)发现的早三叠世奥伦尼克期疑似幻龙类化石
aff. Nothosauroidea indet.
,包括部分后肢和尾椎。推测它的体长也有4米左右。图片来源自[11]。
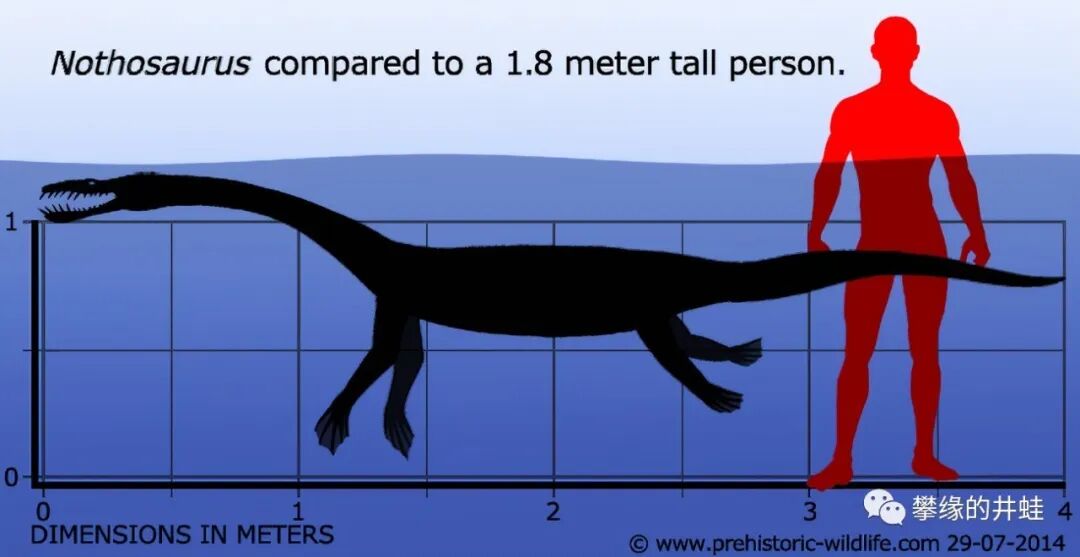
4米长的幻龙的体型。请自行想象更大的巨型幻龙和张氏幻龙。图片来源见水印。
幻龙目中还有一个重要的分支,就是“鸥龙”。鸥龙的生存时间和地理分布与肿肋龙类和幻龙重合。成体的平均长度只有0.7米,最大的个体也不过1.2米。于是在食物链上,鸥龙差不多就卡在了肿肋龙和幻龙之间。
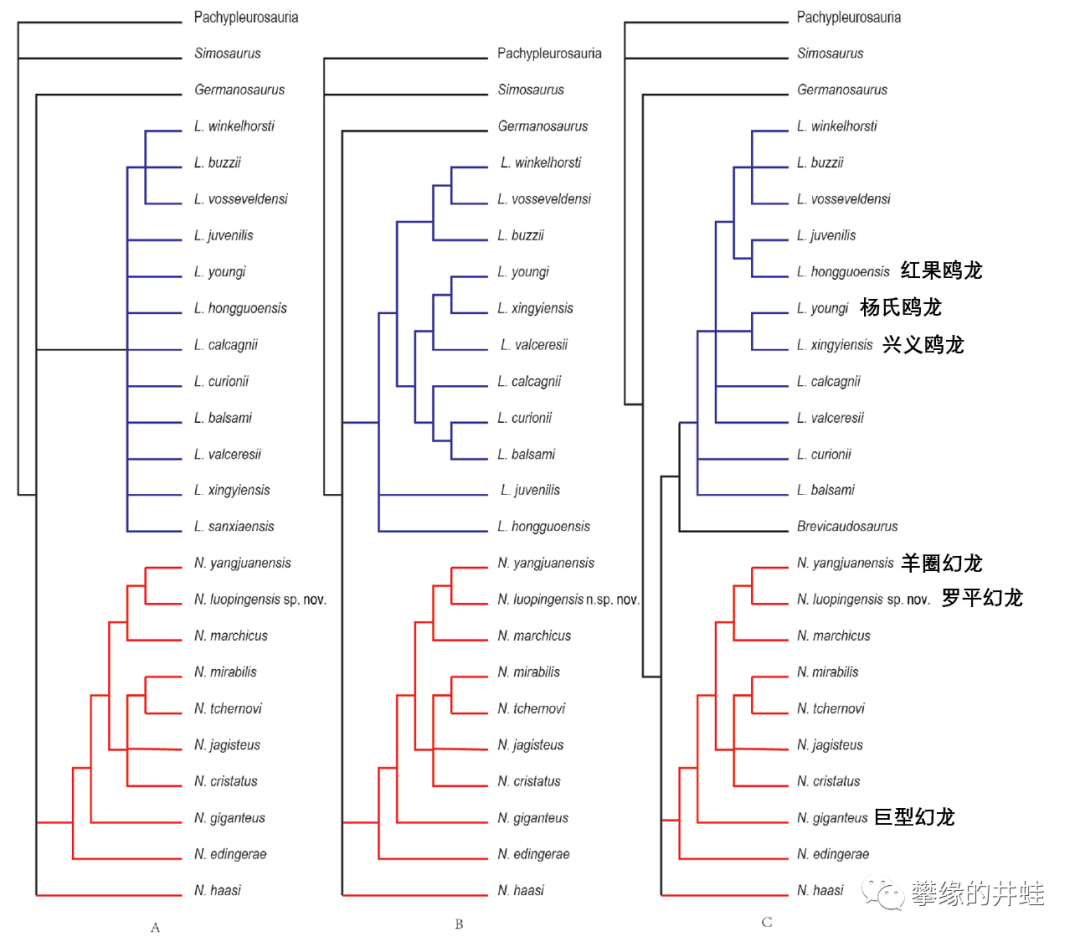
各种“幻龙”和“鸥龙”可能的系统发生关系。图片来源自[8]。
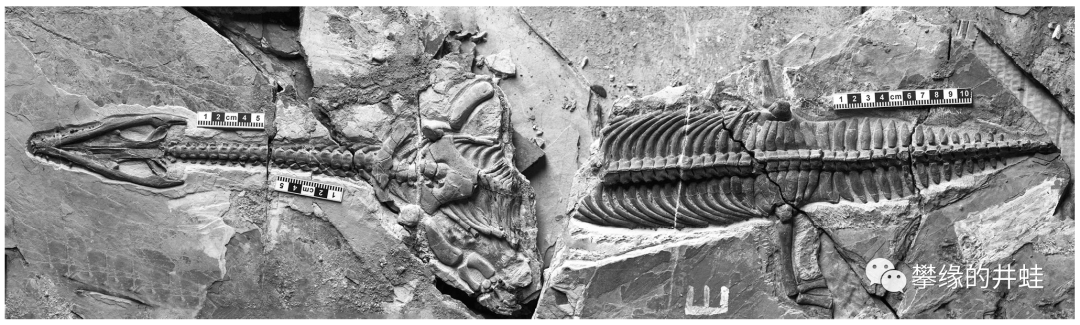
兴义生物群发现的兴义鸥龙
Lariosaurus xingyiensis
。图片来源自[12],标尺单位厘米。
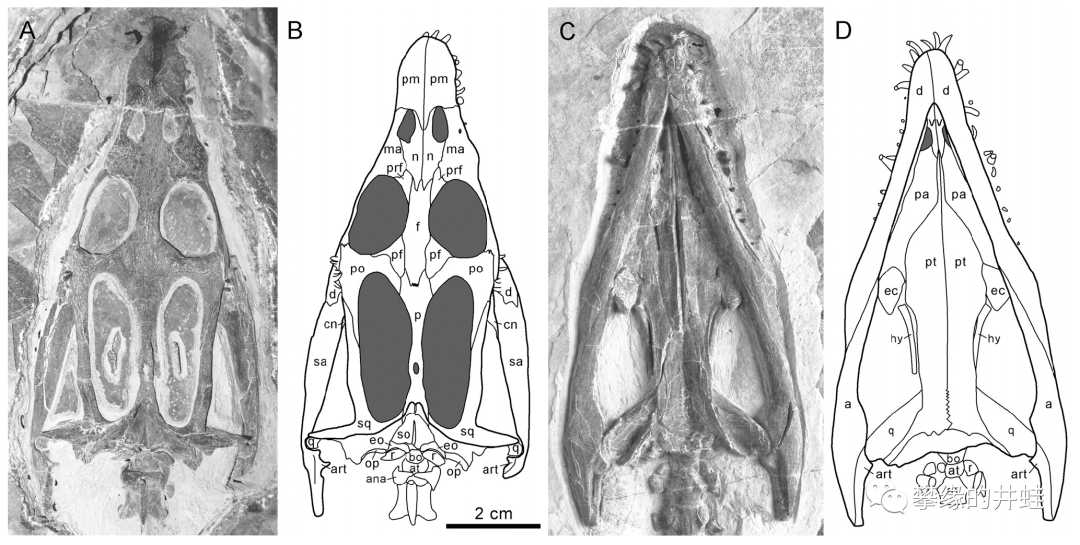
兴义鸥龙头骨结构。图片来源自[12]。
关于鸥龙,网上有两个传播比较广的说法。一是在鸥龙化石的腹腔内发现了两只豆齿龙
Cyamodus
幼体,这表明鸥龙是食性广泛的猎手。对此我比较好奇,因为豆齿龙长这样:
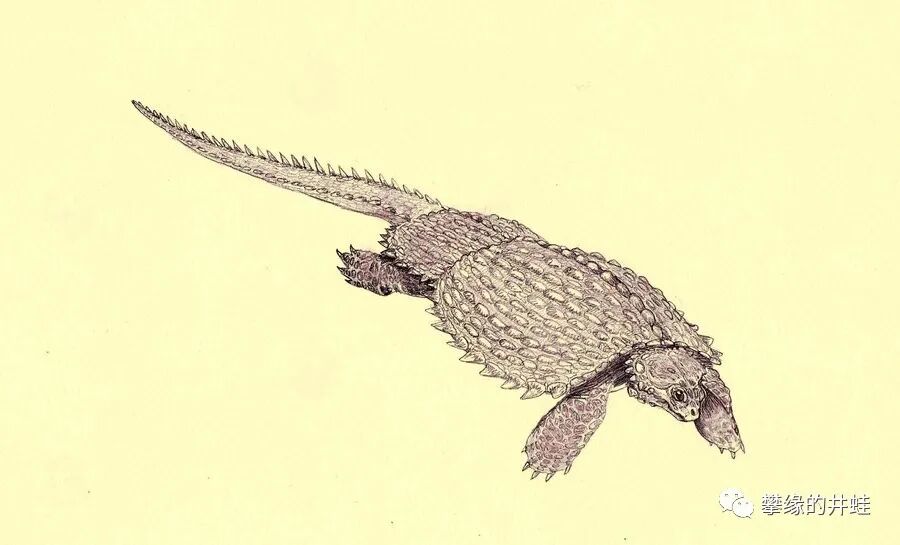
图片来源自网络。
怎么看也不像容易下嘴的样子。不过我在网上查不到这块化石的具体信息,也没看到文献中有相应的描述。希望有知情的朋友能提供有关资料,不胜感谢。
另一个说法是鸥龙的前肢已经变成了鳍状肢,后肢仍然是带蹼的爪子。
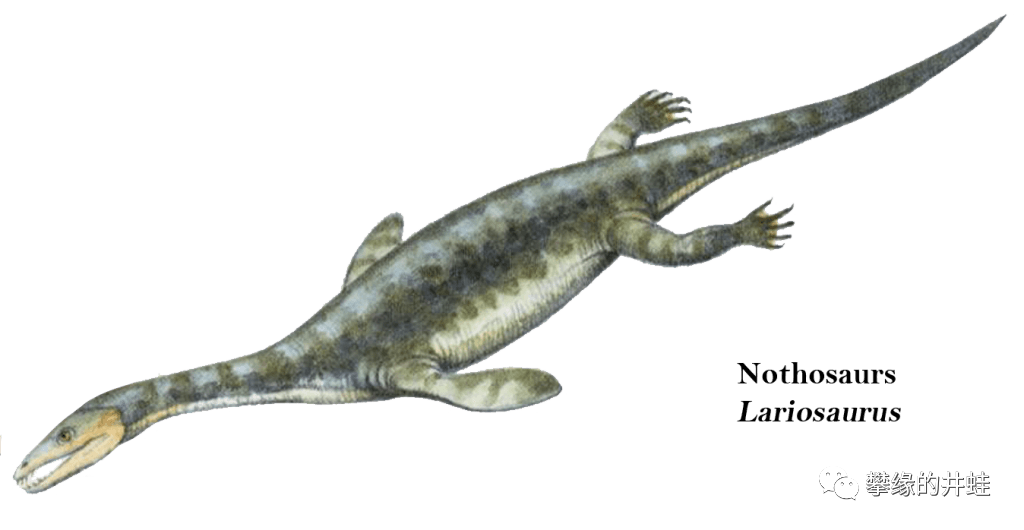
鸥龙的复原图基本上都把前肢画成鳍状,后肢画成爪子。图片来源自网络。
这种演化到一半的“过渡形态”很对古生物爱好者的胃口,于是我对比了一下鸥龙和幻龙的前肢化石图片。
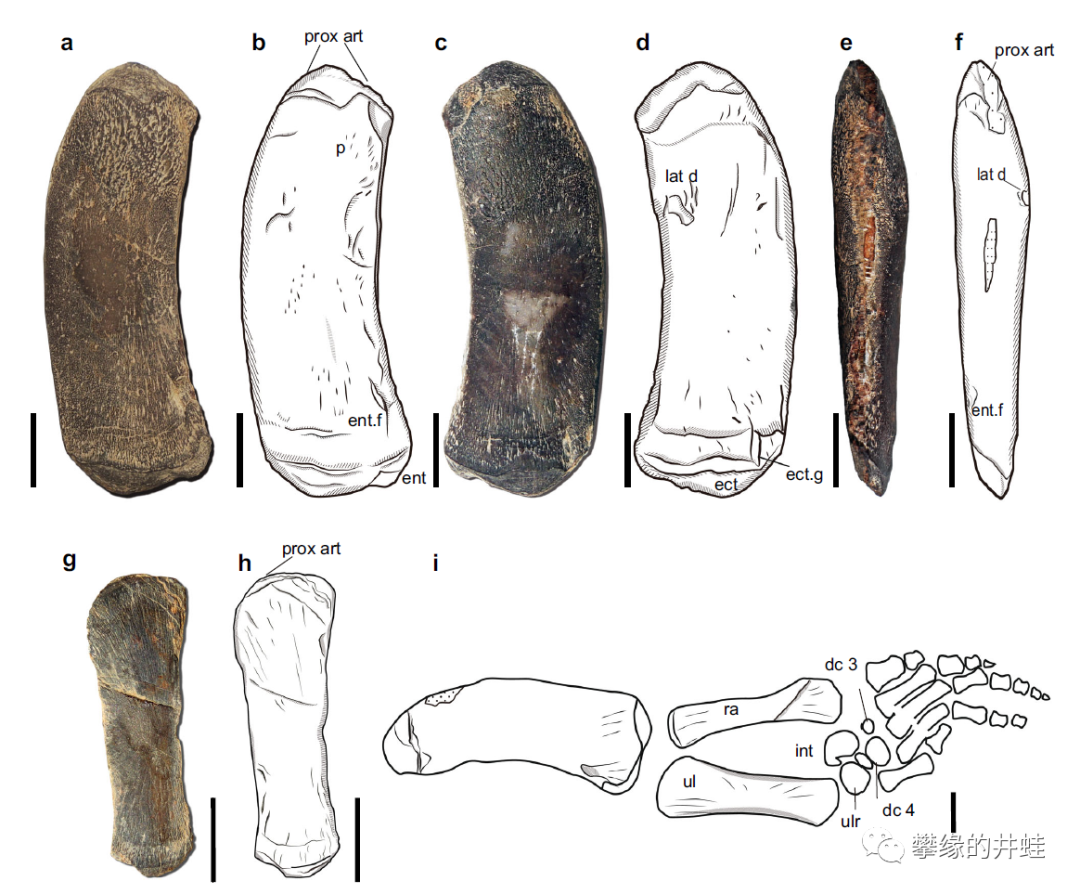
湖北远安(就是湖北鳄目所在的生物群)发现的早三叠世三峡鸥龙
Lariosaurus
sanxiaensis
前肢化石。图片来源自[2],标尺长度2厘米。
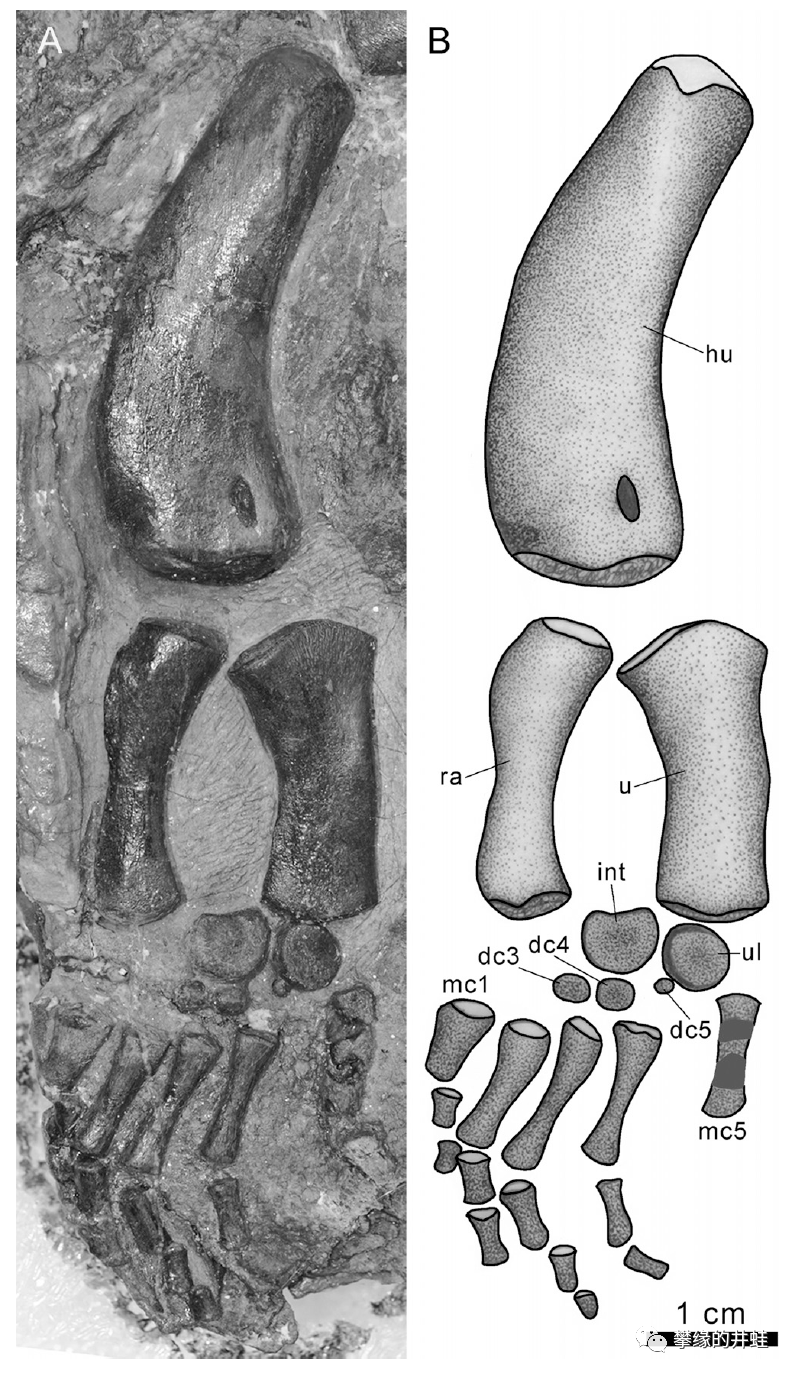
兴义鸥龙的前肢骨骼。图片来源自[12]。
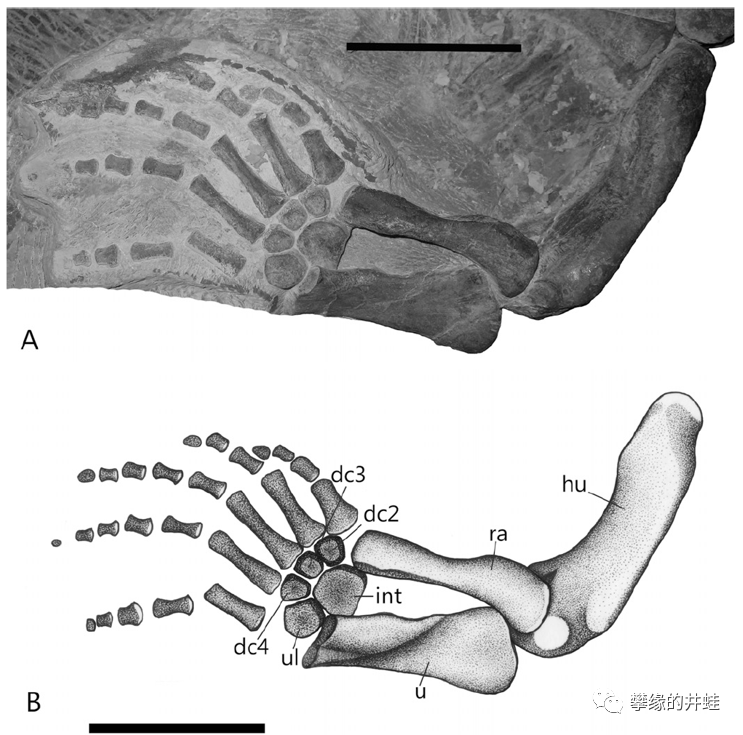
杨氏幻龙的前肢骨骼。图片来源自[7],标尺长度5厘米。
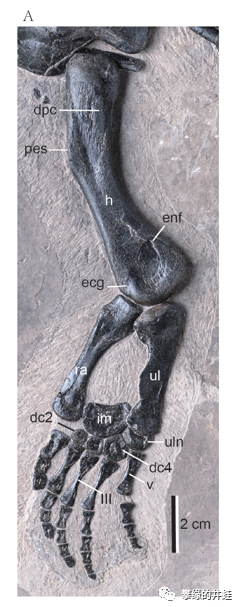
罗平幻龙的前肢骨骼。图片来源自[8]。
怎么说呢?鸥龙的前肢确实比幻龙的更“短粗扁”,但你要说有什么本质性的差别,那好像也没有。
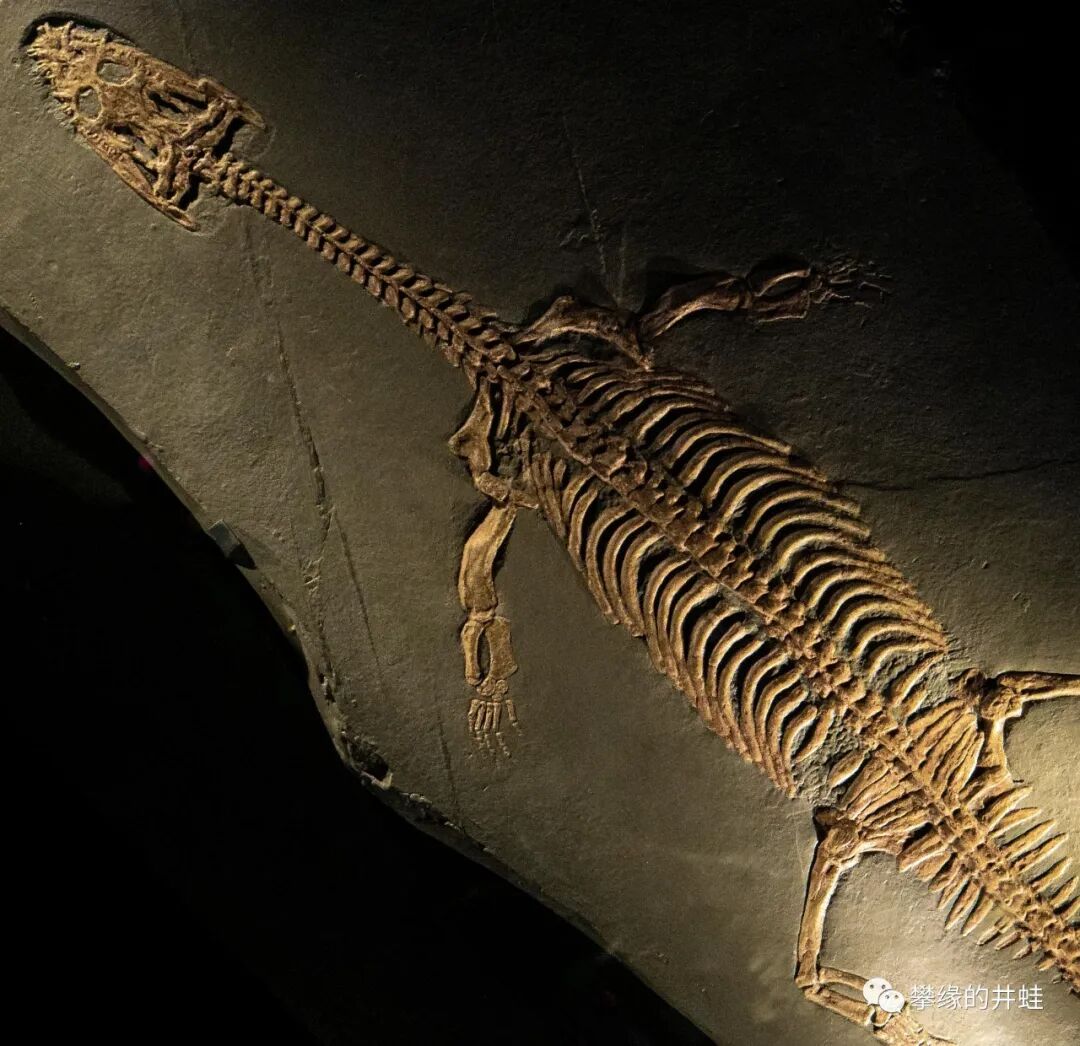
意大利出土的鸥龙
Lariosaurus balsami
化石。你觉得那对“小胳膊”算是鳍状肢吗?这个就见仁见智吧。图片来源自[13]。
而且那对“鳍状肢”的功能也不是像企鹅那样扑扇着划水,而是蹬着海床推动身体往前悠。形象地说,那不是划船的“桨”,而更像是撑船的“篙”。
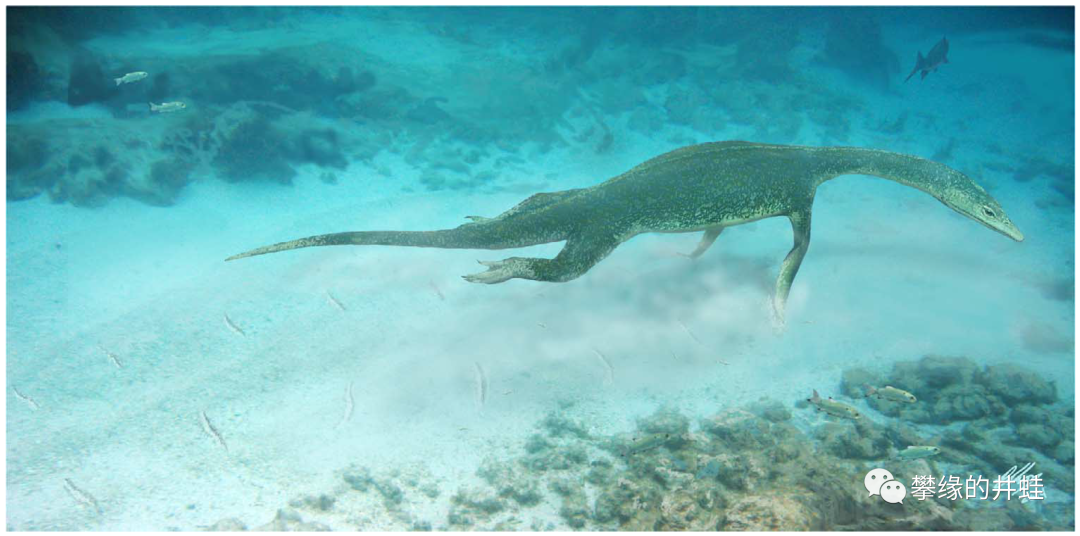
鸥龙用前肢的尖端点着海床前进。有人认为这样可以方便搜寻躲藏在沉积物中的鱼虾。这种运动方式会在泥沙表面戳出一对又一对长条形的凹坑(图片左侧)。研究者真的找到了这样的痕迹化石,命名为“双桨迹
Dikoposichnus
”。图片来源自[14],图作者:Brian Choo。
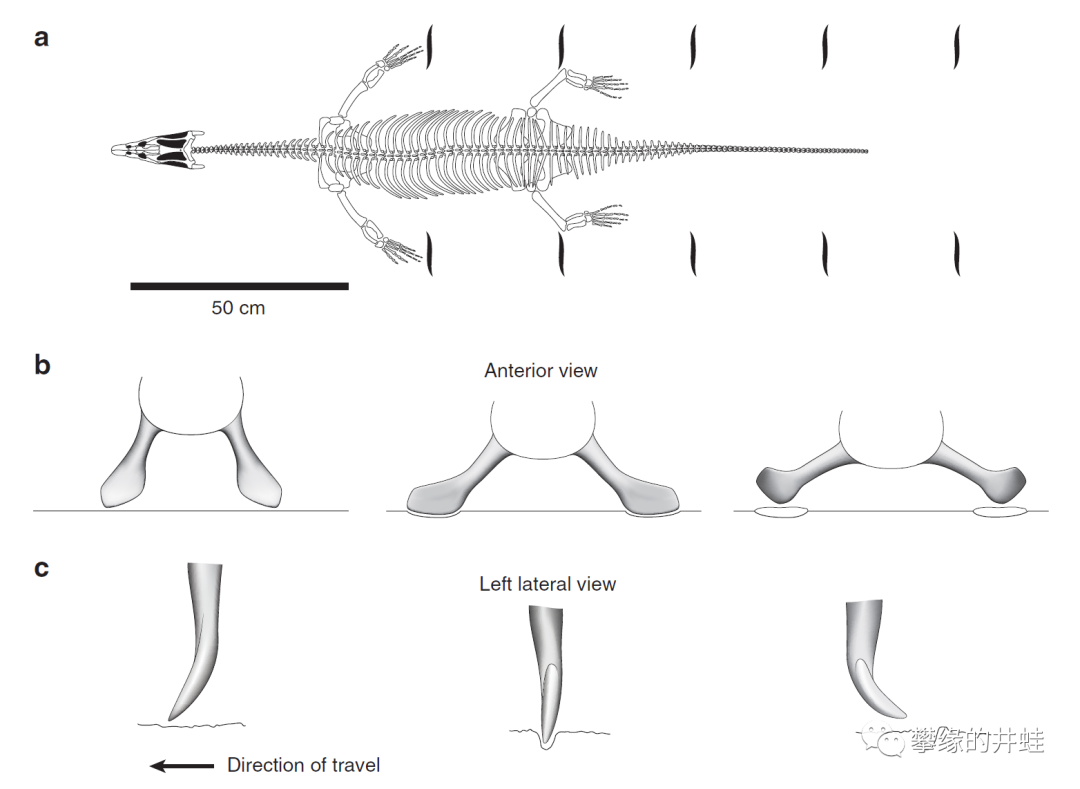
鸥龙的运动方式,和双桨迹化石的形成过程。图片来源自[14]。
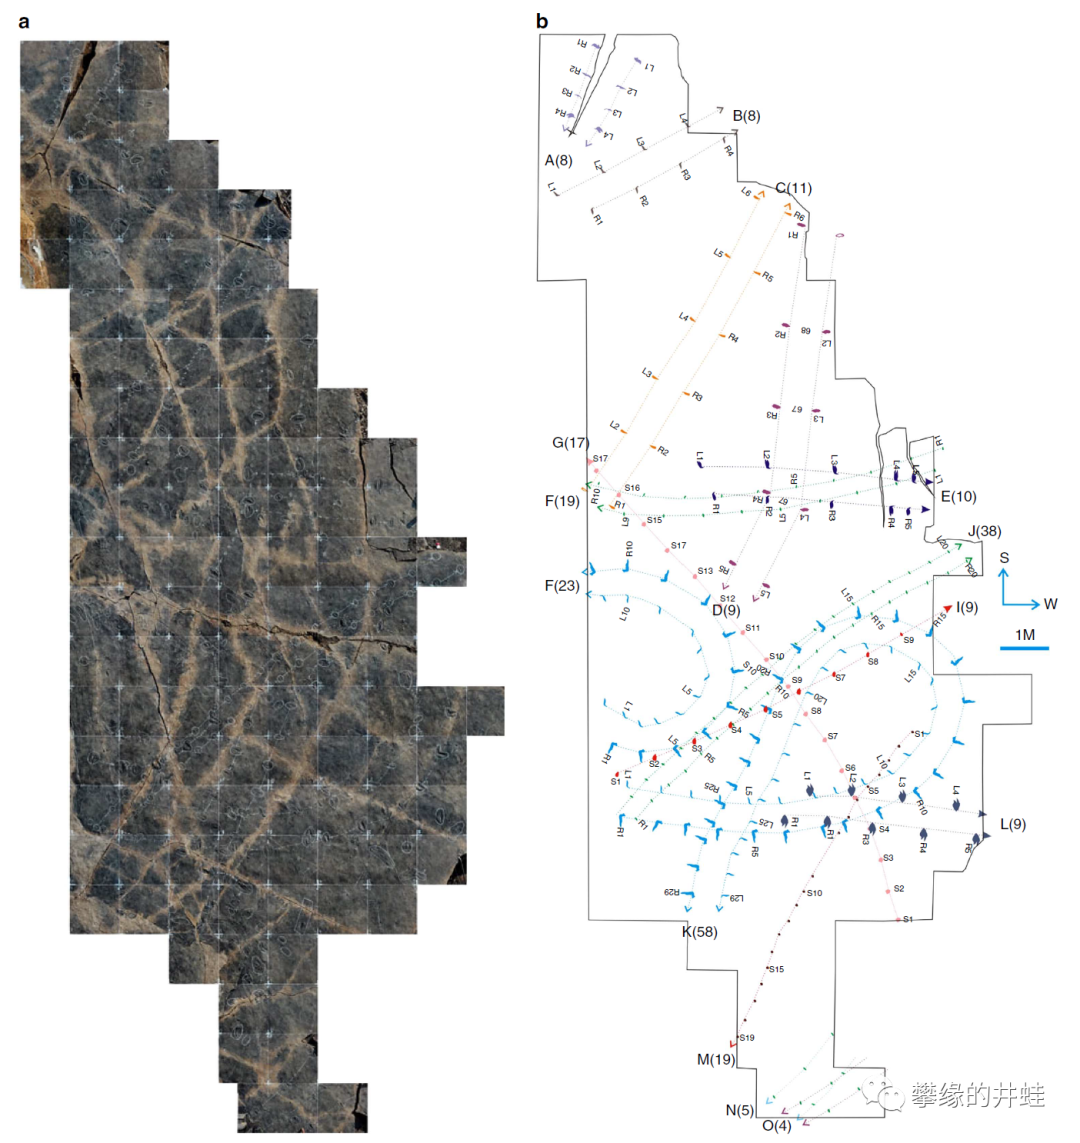
罗平生物群发现的中三叠世海爬足迹化石:罗平双桨迹
Dikoposichnus
luopingensis
。这里曾经是一条繁忙的水下通道。图片来源自[14]。
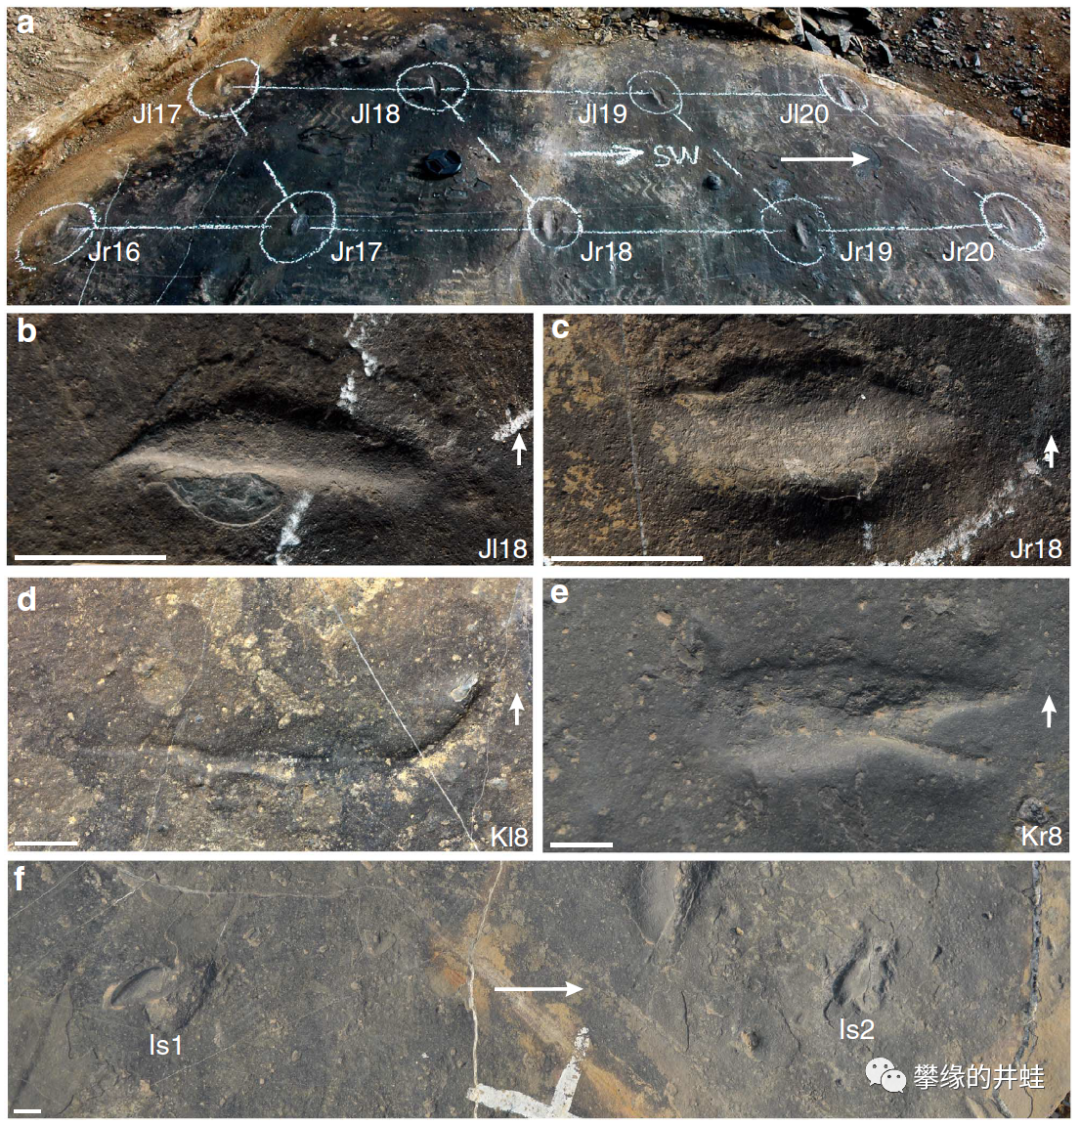
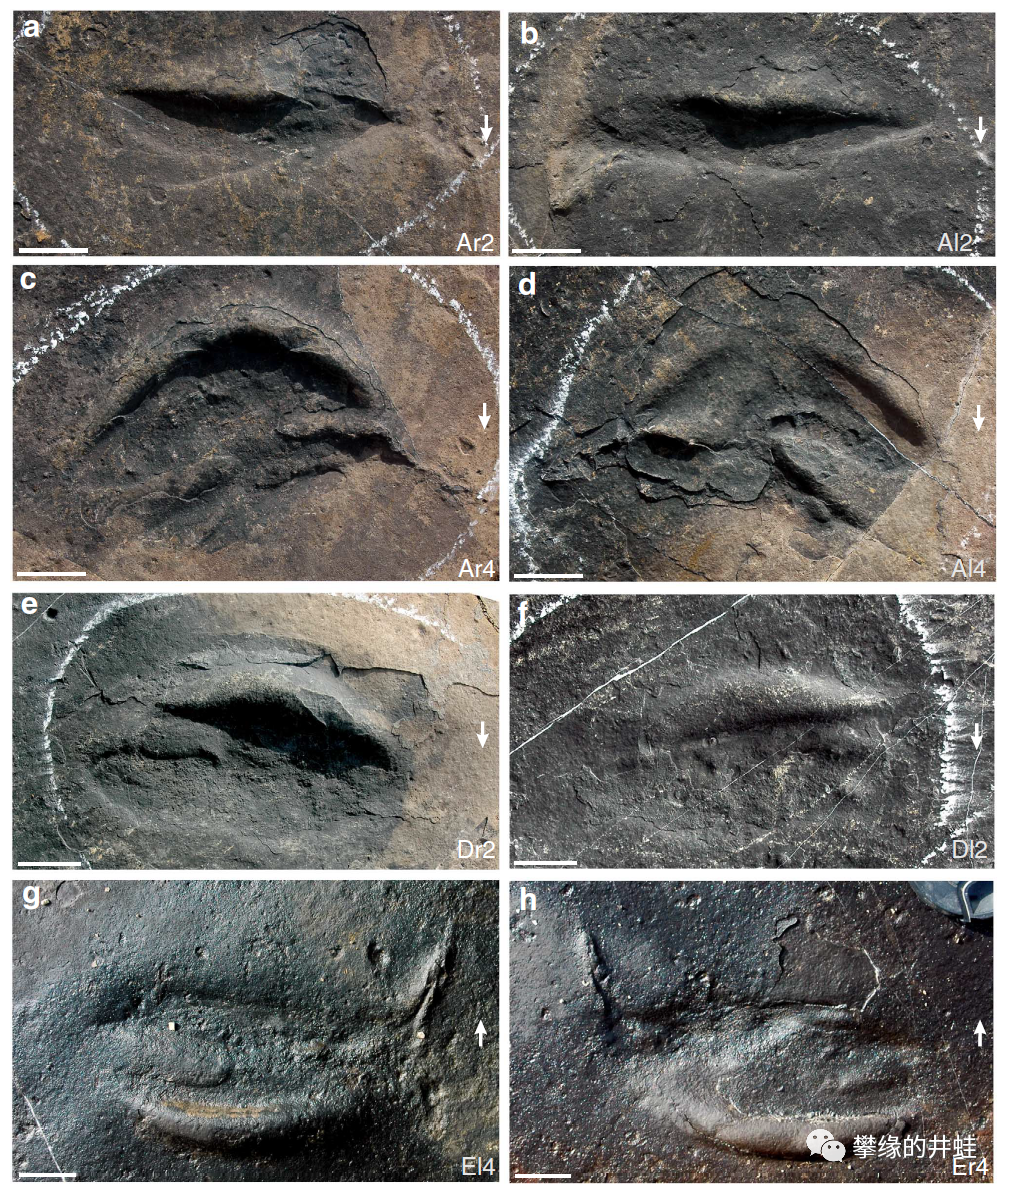
双桨迹
足迹化石。这就是鸥龙用前脚尖铲出来的小窝儿。图片来源自[14],标尺长度3厘米。
无论怎么看,鸥龙的前肢和真正的“鳍状肢”都还有相当的差距。其实在三叠纪,具有真正“鳍状肢”的始鳍龙类已经出现,那就是纯信龙类(Pistosauroidea)。
纯信龙类是三叠纪众多鳍龙类中演化程度最高的。怎么个“高”法,一看化石立刻就能明白:
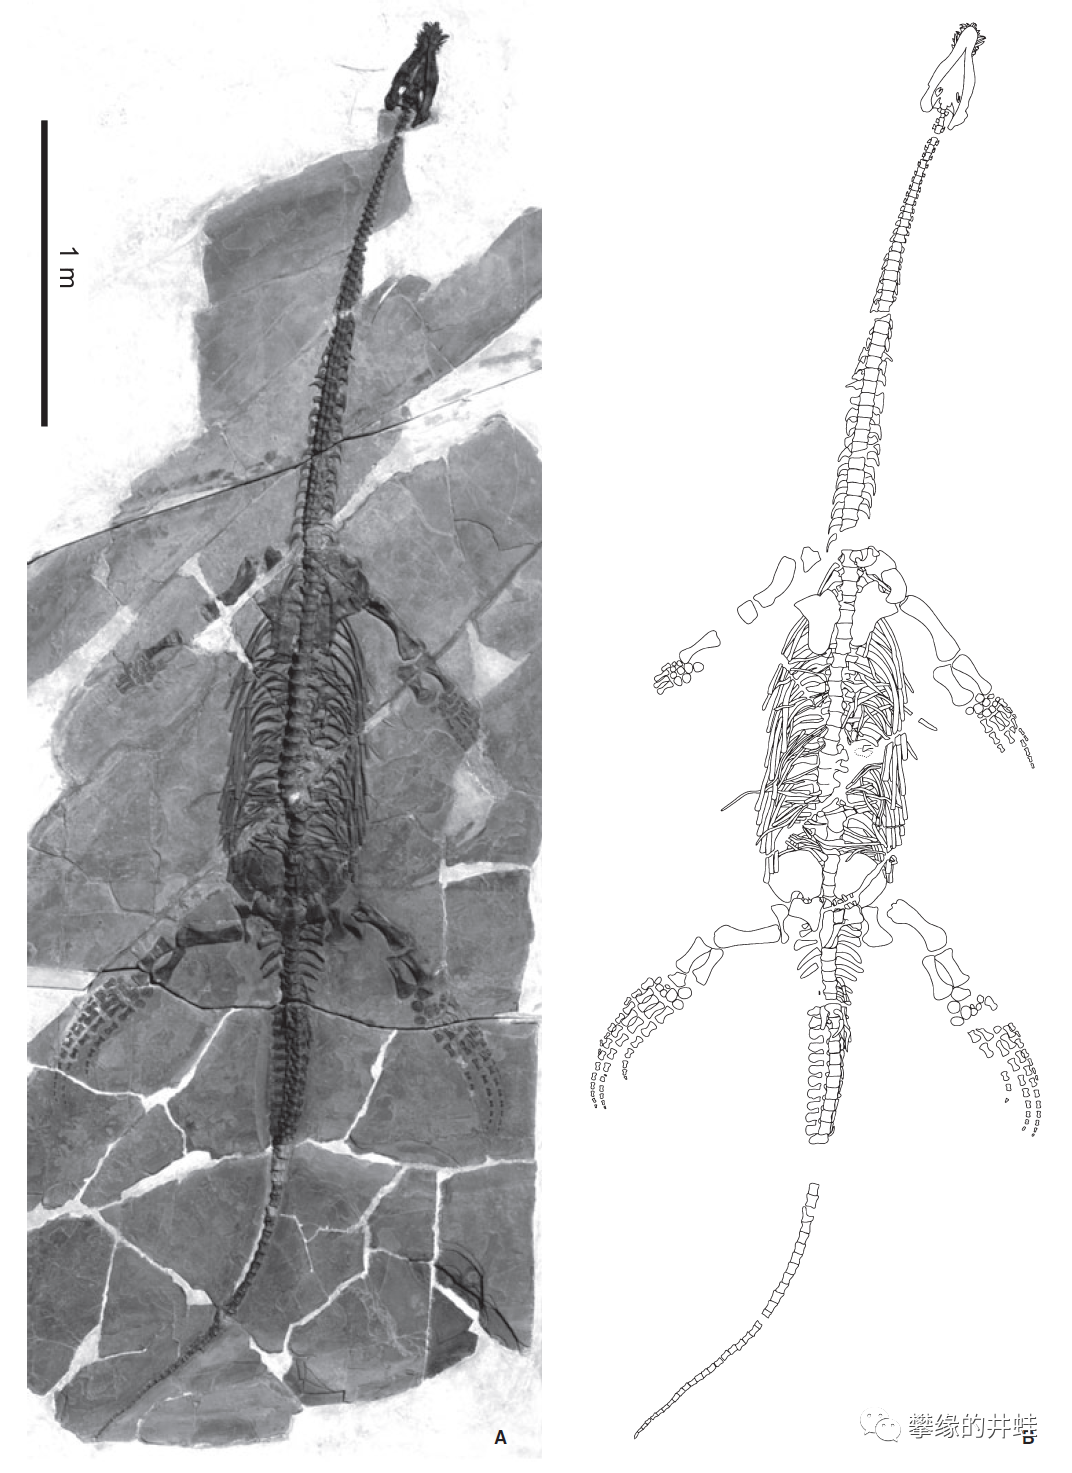
兴义生物群的李氏云贵龙
Yunguisaurus liae
化石。这四舍五入基本上就是一条蛇颈龙了,除了瘦了点。而且这化石太漂亮了。图片来源自[15]。
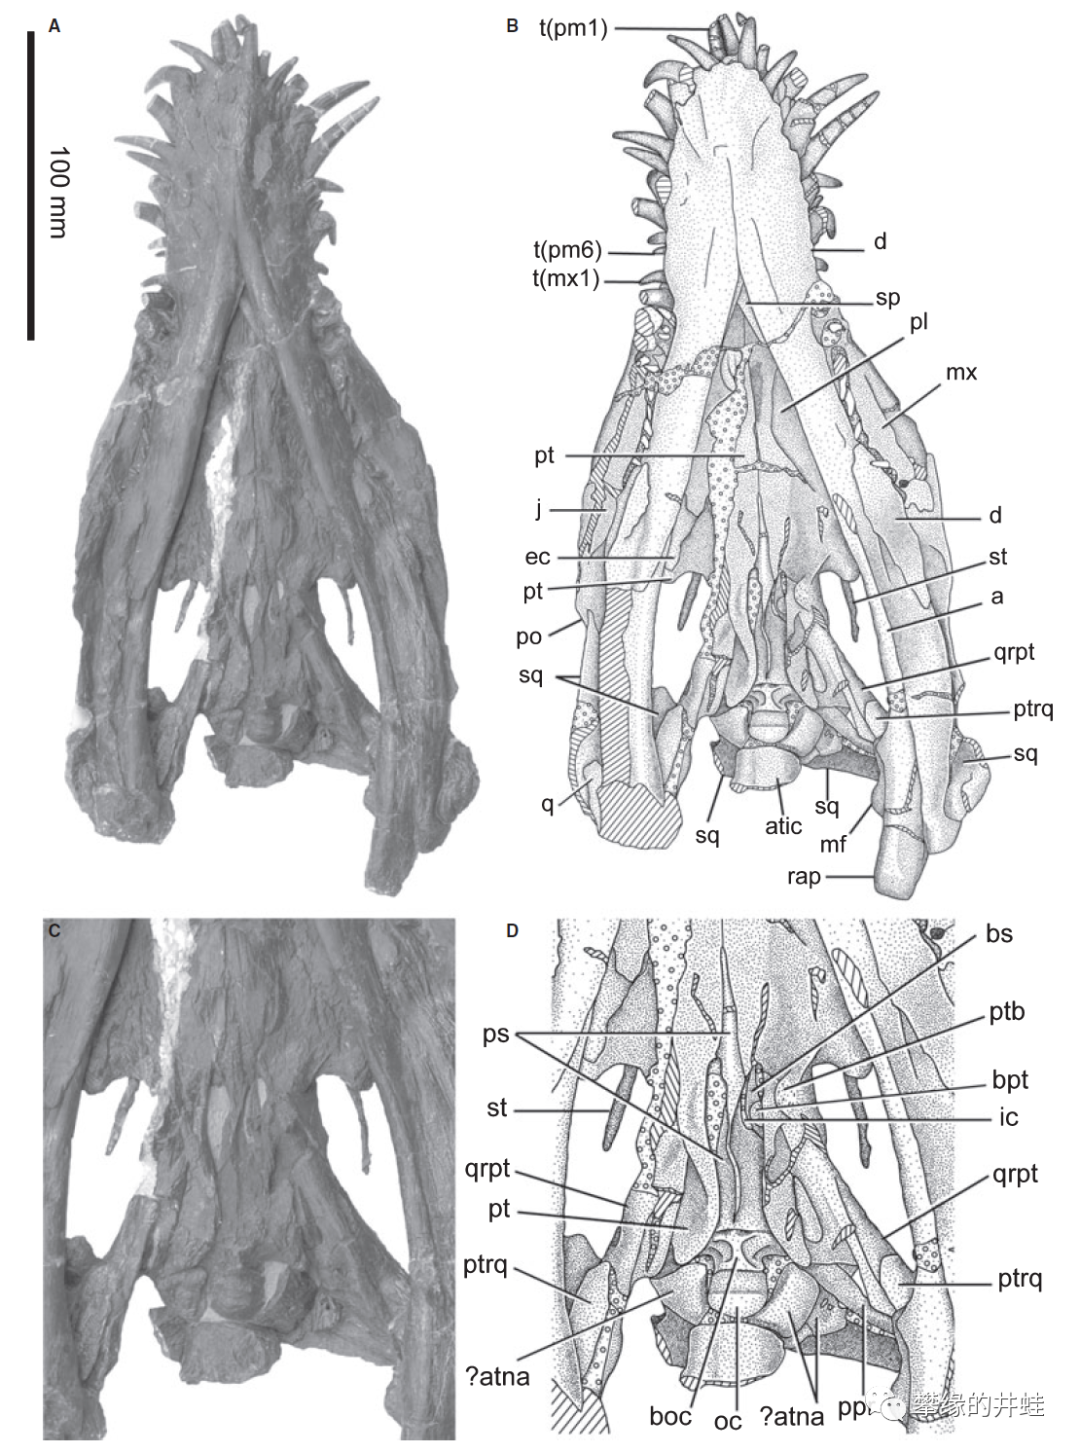
李氏云贵龙头骨结构。图片来源自[15]。
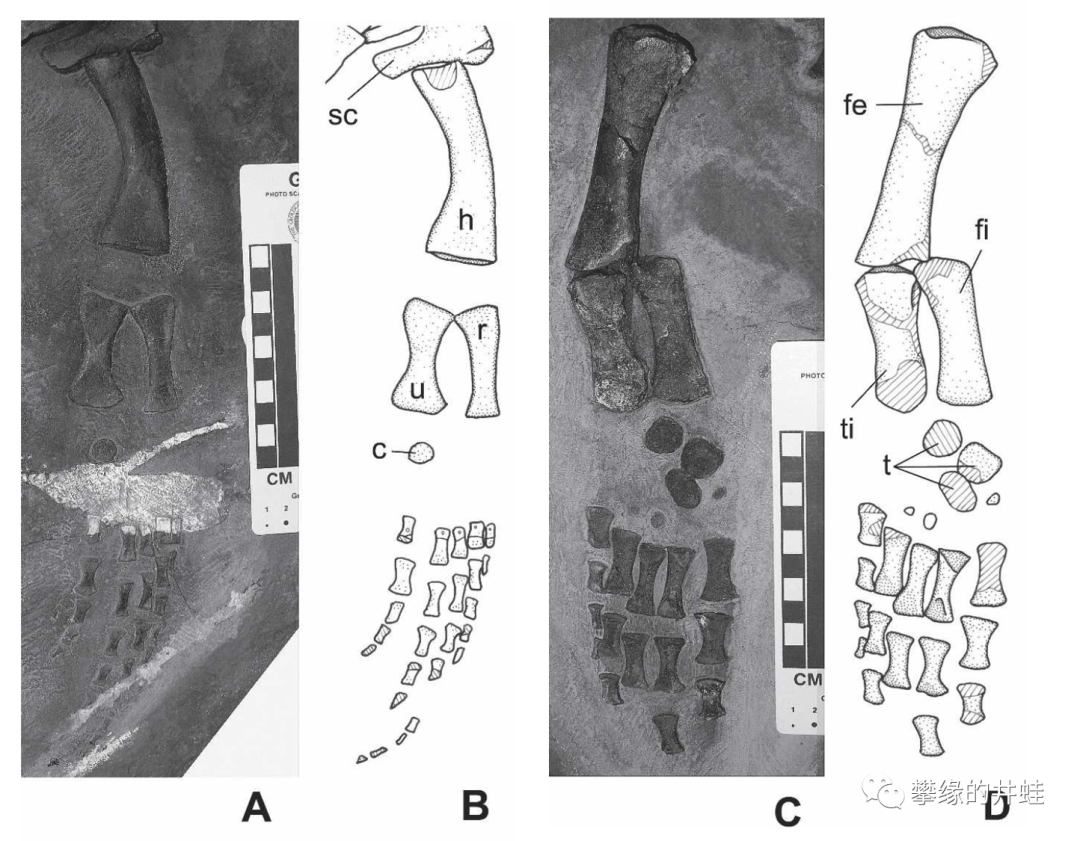
李氏云贵龙的前肢(A、B)和后肢(C、D)。看看,这才叫“鳍状肢”好吧。如果抠字眼的话,纯信龙类才算是货真价实的“鳍龙”。图片来源自[16]。
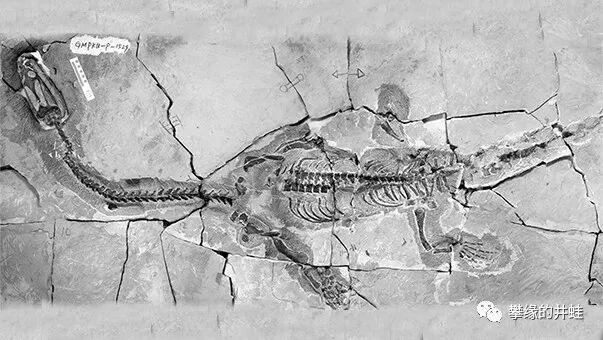
兴义生物群发现的另一种中三叠世纯信龙类:短吻王龙
Wangosaurus
brevirostris
,体长大约2米。图片来源自[17]。
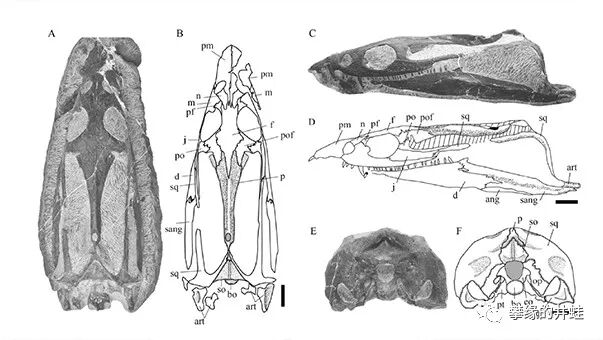
短吻王龙头骨结构。图片来源自[17]。
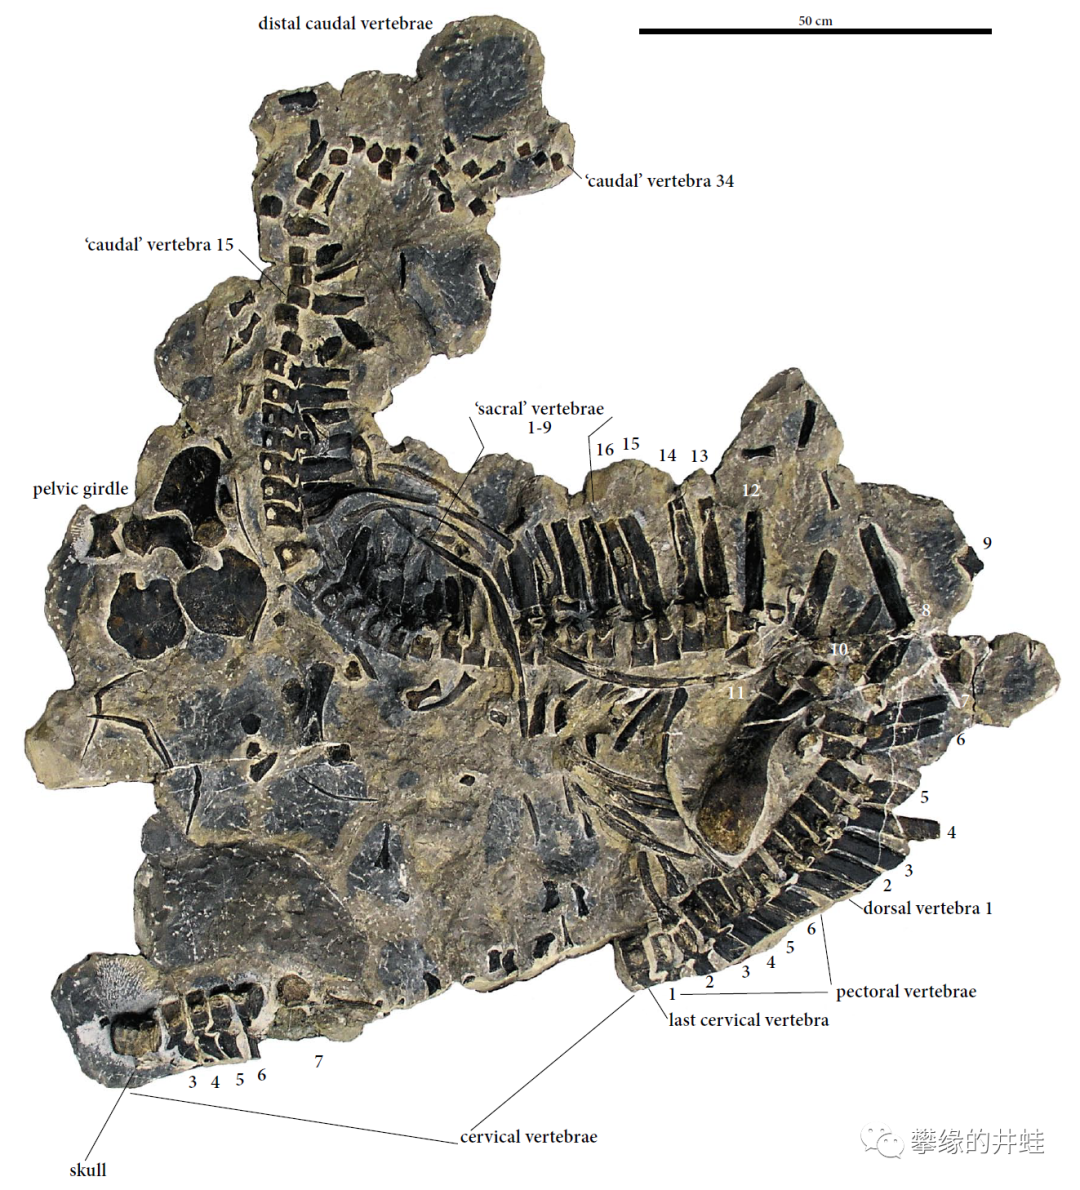
意大利发现的晚三叠世卡尼期纯信龙类:
Bobosaurus
forojuliensis
。图片来源自[18]。
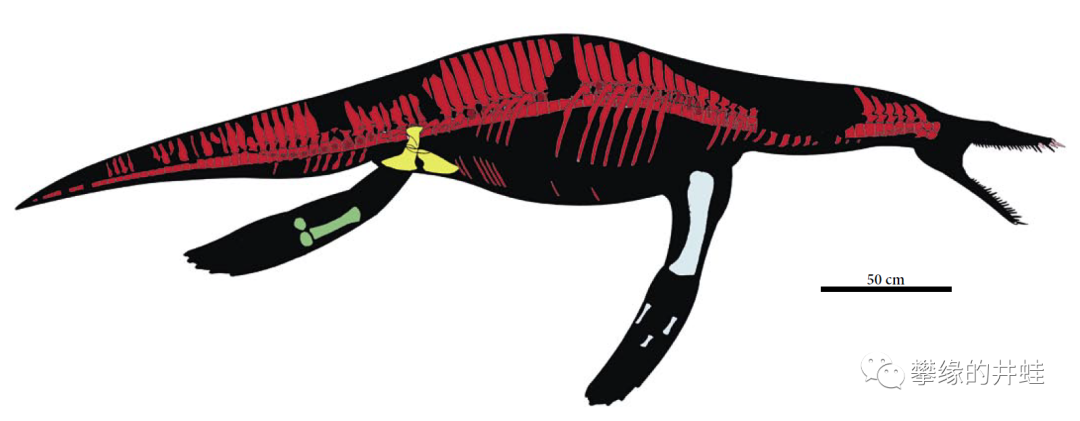
根据多具化石标本复原的
Bobosaurus forojuliensis
的骨骼结构。如果说李氏云贵龙已经初具蛇颈龙的雏形,那
Bobosaurus forojuliensis
就很有几分上龙的气质了。图片来源自[18]。
关于
Bobosaurus
我要多说几句。在假鳄类那回(参见第二百八十四回
忽雷本纪2:主龙第一帝国(下)),我把“
Poposaurus
”翻译成了“波波龙”,现在看应该是“坡坡龙”才对。本回的
Bobosaurus
才是货真价实的“波波龙”。有点尴尬,算了,不改了。
这是虚假的波波龙
Poposaurus gracilis
:
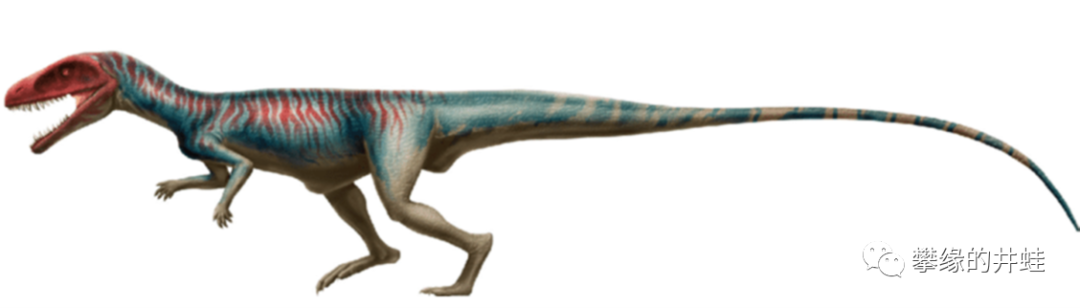
图片来源自[19]。
这是真实的波波龙
B
obosaurus forojuliensis
:
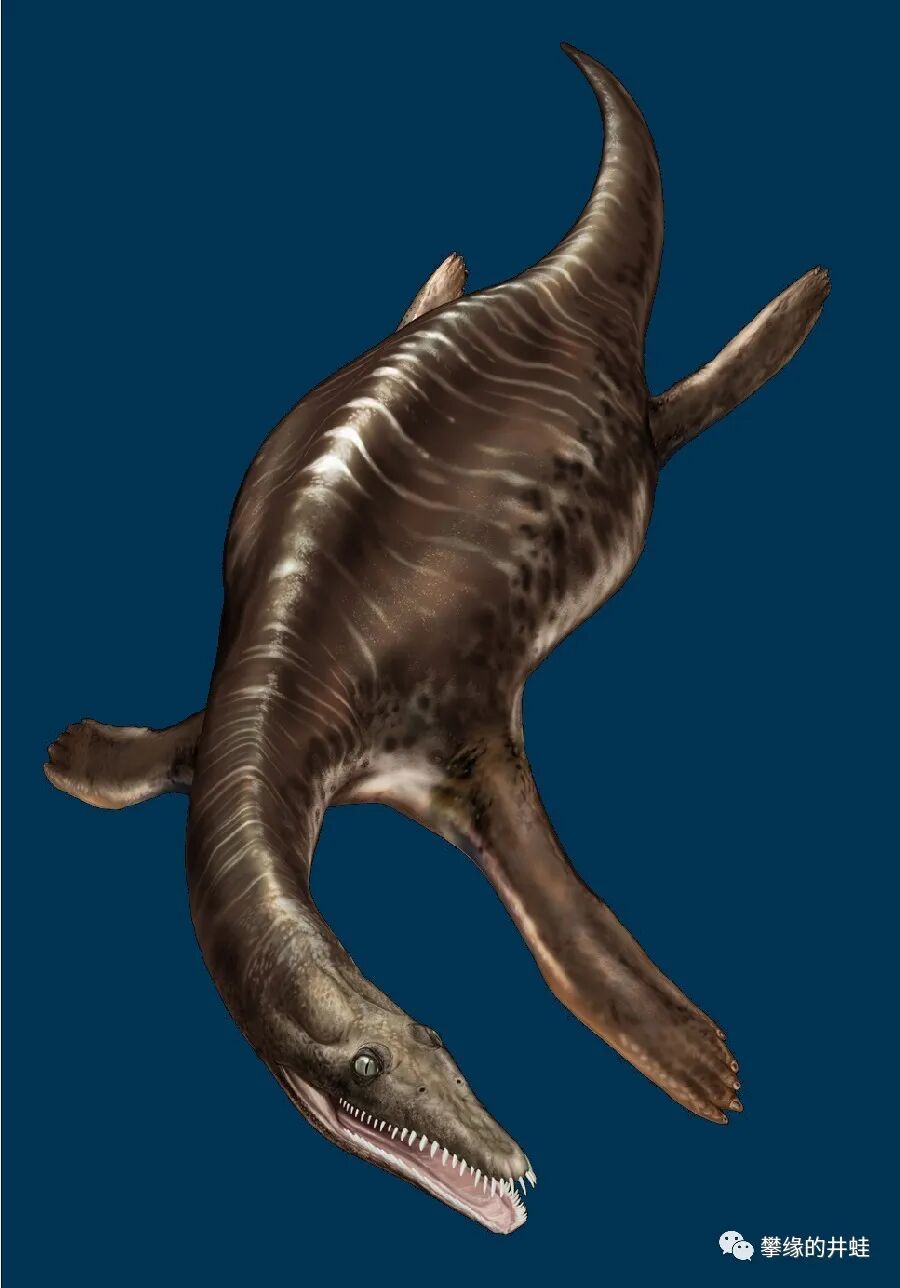
图片来源自网络。
纯信龙类的四肢变成划水的“桨”,不必再去蹬海底;躯体也更加趋近“泛龟形”。它们的游泳能力更强,活动范围也从近海大陆架转向开阔的远洋,那里有无尽的空间和充足的给养,让纯信龙类的后裔在侏罗纪成长为庞然巨物。
当鳍龙类努力打磨“泛龟形”身体的同时,鱼龙类也在“鱼形化”的道路上不断精进。比湖北鳄目和鼻喙类演化程度更高的鱼龙超目(Ichthyopterygia)成为主流。它们与鳍龙类和其他海爬混群杂居,占据的生态位穿插交错,既竞争又互补。
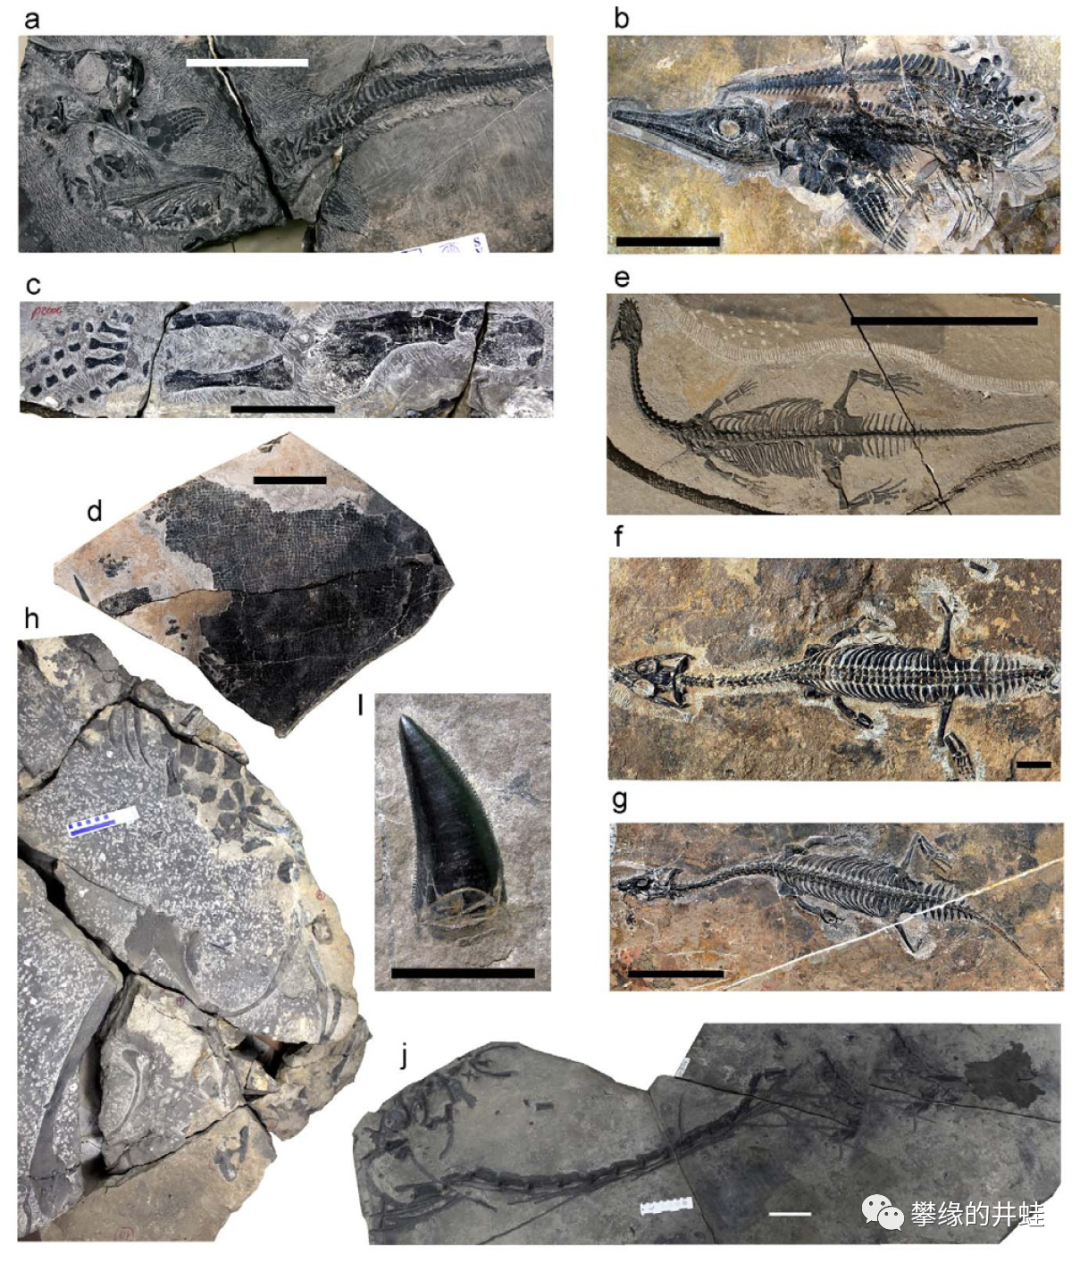
一些罗平生物群的海爬化石。a始祖异齿鱼龙
Phalarodon atavus
;b疑似盘县混鱼龙
Mixosaurus cf. panxianensis
;c疑似独特须齿龙(也称“奇异滤齿龙”)
cf.
Atopodentatus
;d 云贵中国龙龟
Sinosaurosphargis
yunguiensis
;e利齿滇东龙
Diandongosaurus
acutidentatus
;f丁氏滇肿龙
Dianopachysaurus
dingi
;g鸥龙属未定种
Lariosaurus
sp.
;h张氏幻龙;i疑似黔鳄
cf.
Qianosuchus
;j东方恐头龙
Dinocephalosaurus
cf. orientalis
。鱼龙类、鳍龙类、龙龟类、主龙类、原龙类的海爬群聚一堂,共襄(下海)盛举。“那种勃勃生机万物竞发的境界”,让井蛙深慕不已。图片来源自[9],f,i标尺长度1厘米;其他标尺长度10厘米。
鱼龙超目的基干包括诸如巢湖龙
Chaohusaurus
、泅鱼龙
Parvinatator
、歌津鱼龙
Utasusaurus
、短尾鱼龙
Grippia
、狼獾鱼龙
Gulosaurus
等在内的早期鱼龙。尤其以巢湖龙和歌津鱼龙化石最丰富、保存最完好,也最有代表性。
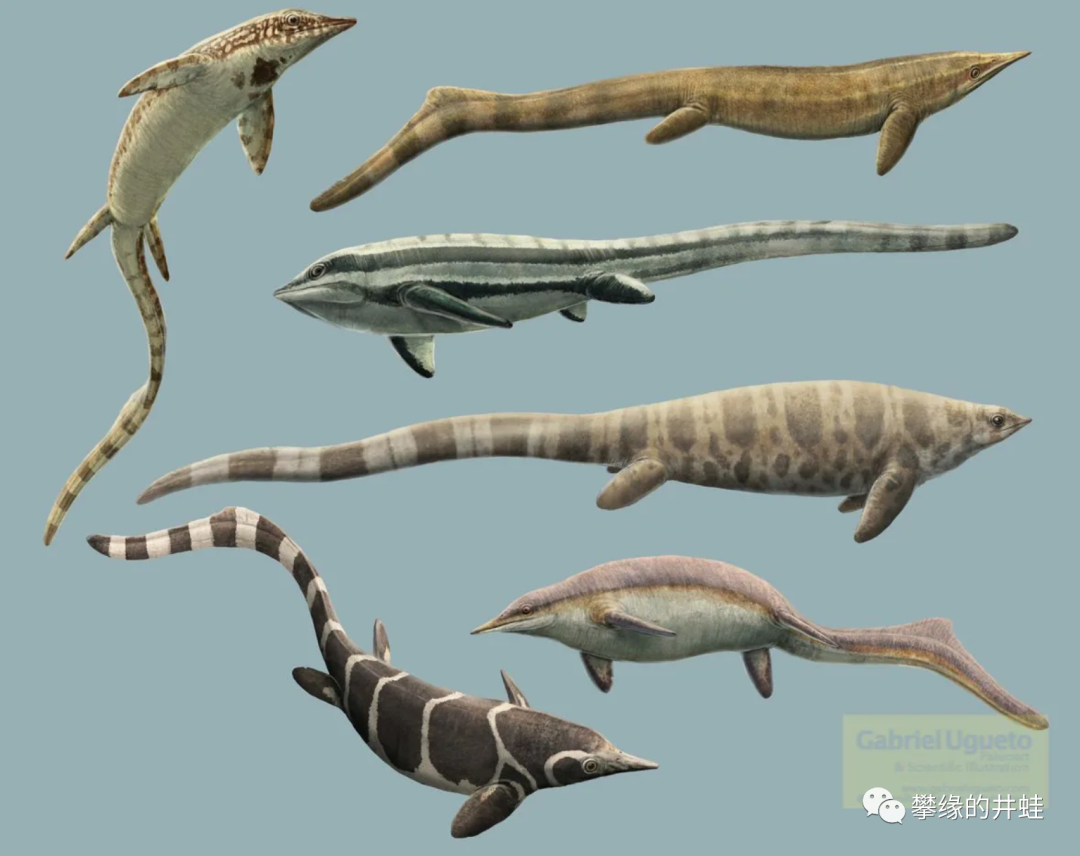
柔腕短吻龙(右二),小头刚体龙(右三),和基干鱼龙超目的复原图(其他)。具体是哪些种类就不清楚了。图片来源见水印。
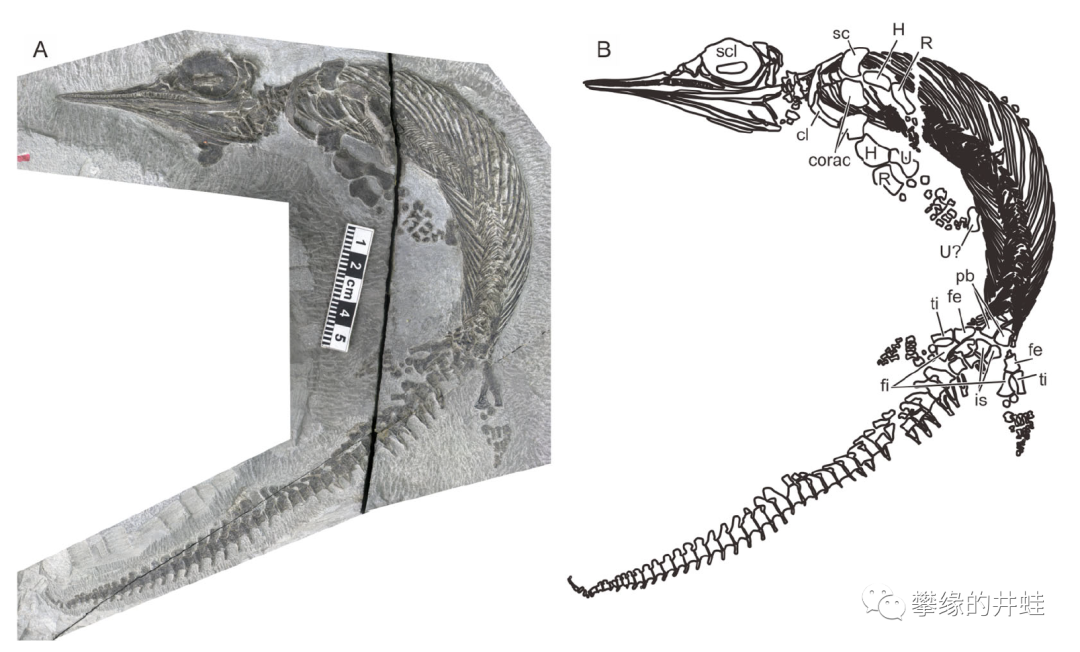
巢县巢湖龙
Chaohusaurus chaoxianensis
化石。时代:早三叠世奥伦尼克期;产地:安徽省巢湖市马家山剖面。图片来源自[17]。
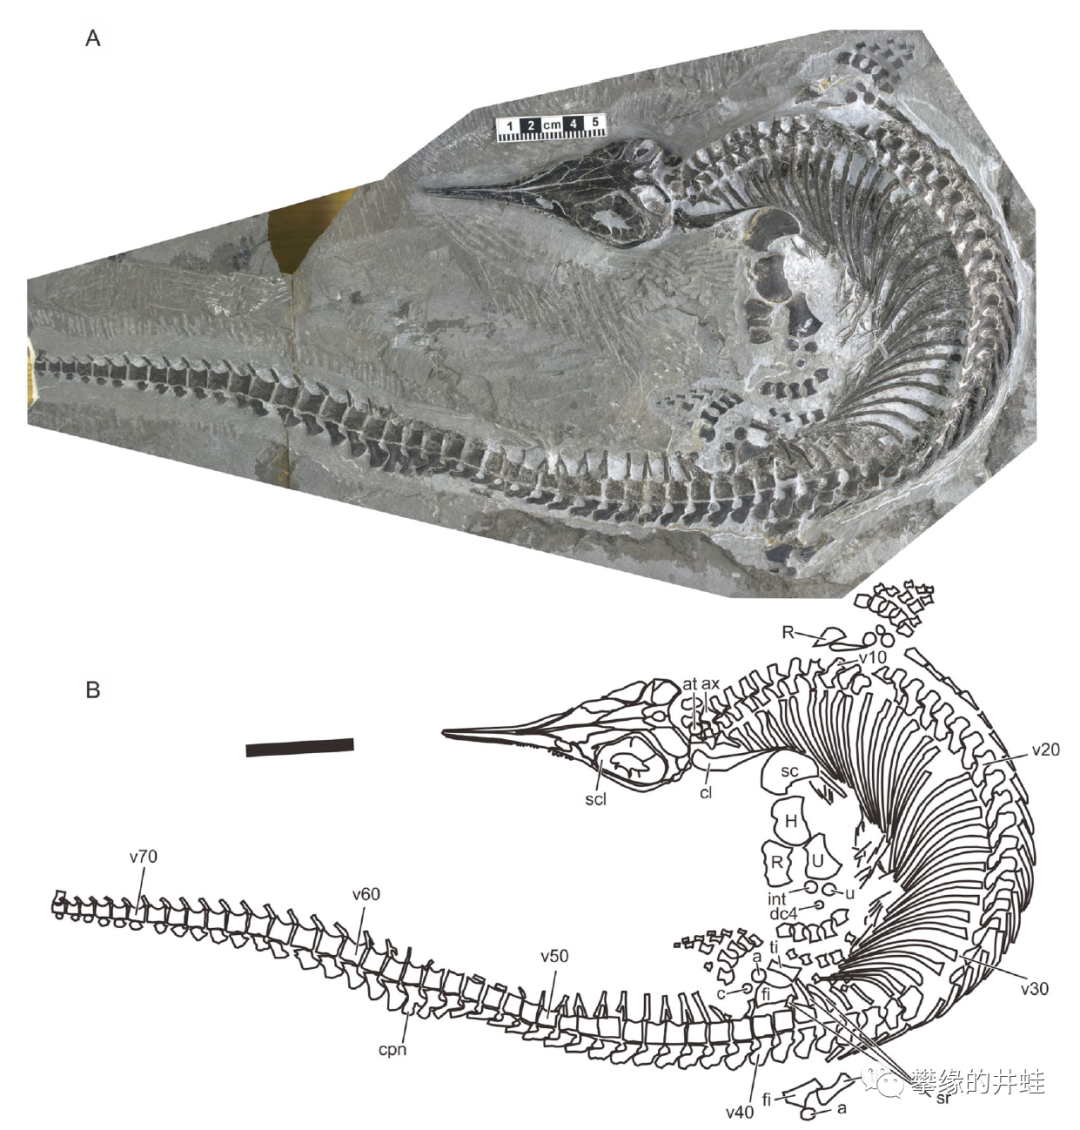
马家山发现的另一种巢湖龙:短腿巢湖龙
Chaohusaurus
brevifemoralis
模式标本(AGB740)。图片来源自[20],标尺长度5厘米。
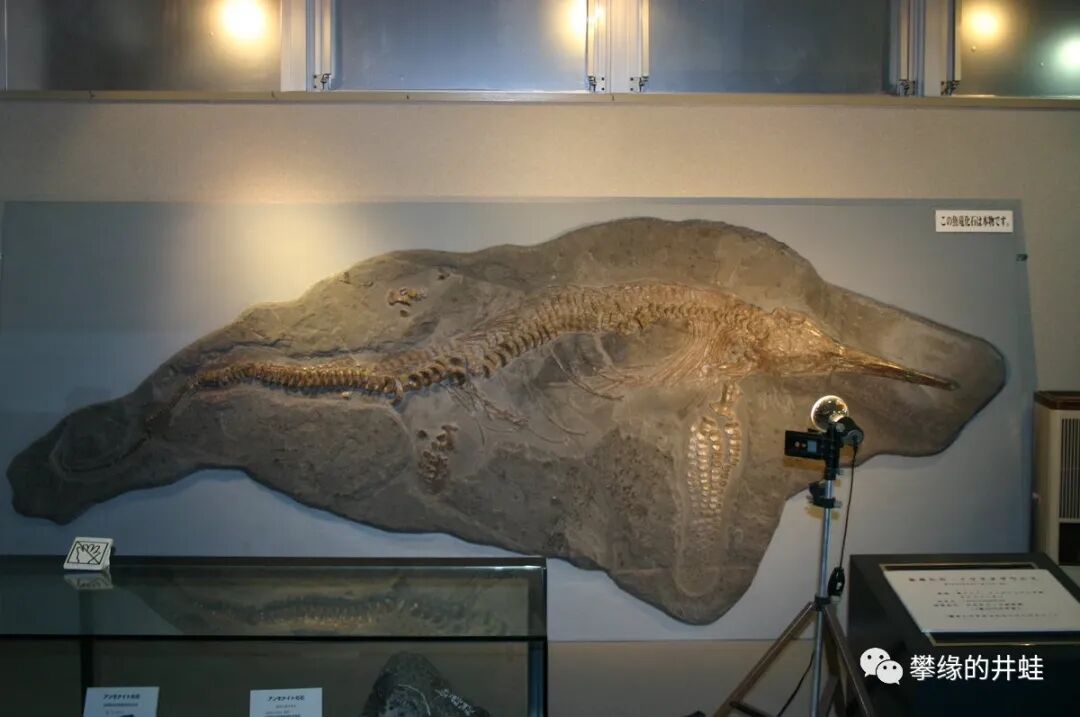
歌津鱼龙
Utatsusaurus hataii
化石。产自日本宫城县下三叠统上奥伦尼克阶大泽累组(Osawa Formation)地层,体长从.4至4米不等。图片来源自[21]。
巢湖龙和歌津鱼龙的尾部,前半部分和后半部分骨骼开始出现弯折和分异,表明原始的“尾鳍”开始出现。口鼻部分也延长,形成尖细的“筷子嘴”。它们距离“水生大蜥蜴”的外观越来越远,越来越接近我们熟悉的“鱼龙”形象。
和恐头龙、鳍龙类一样,鱼龙也很早就解锁了“胎生(或者卵胎生)”技能。巢湖龙是目前已知最早的胎生鱼龙。
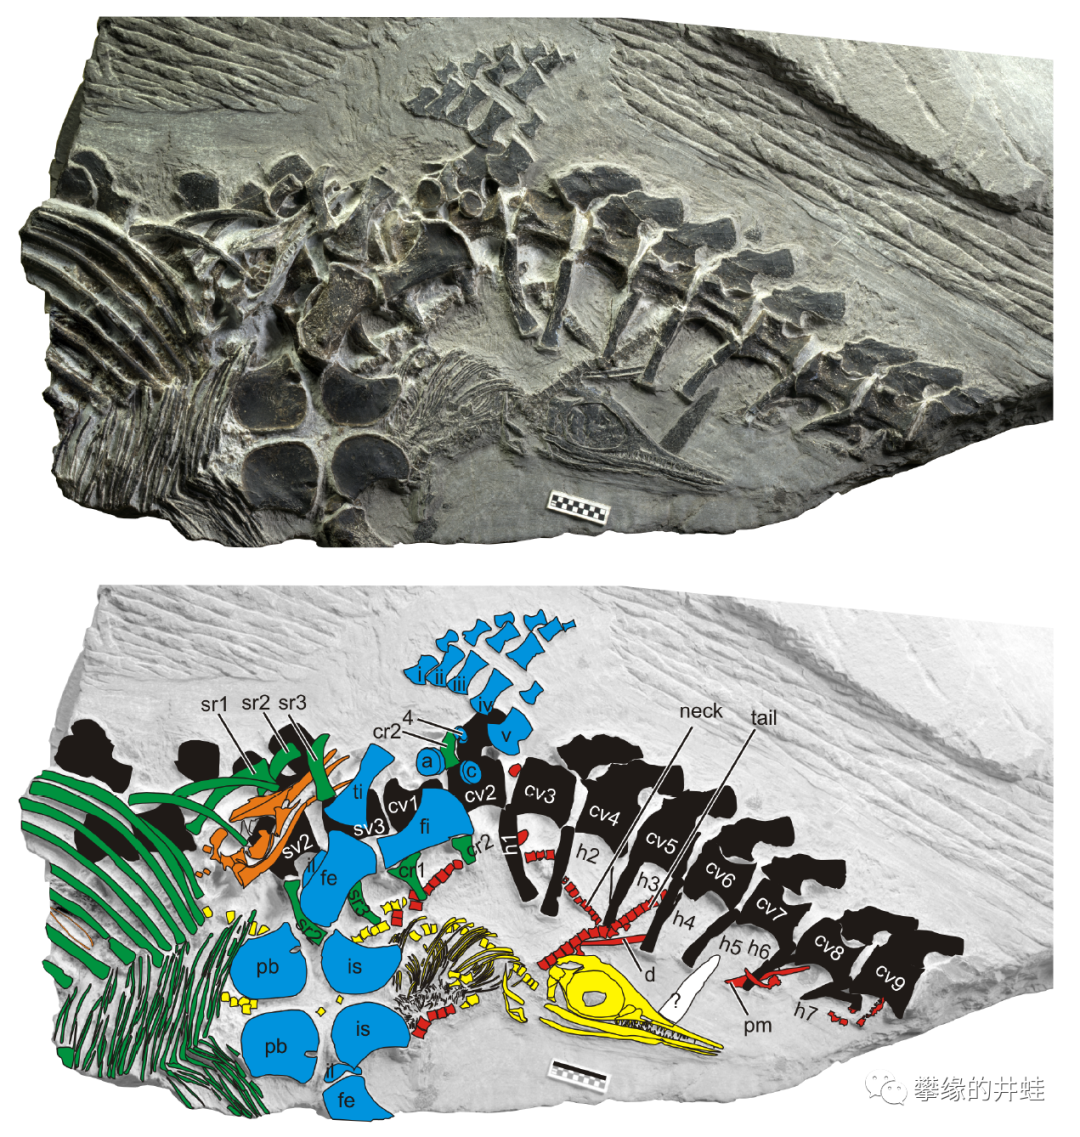
安徽巢湖马家山发现的巢湖龙(未定种)化石,在它的腹部后端保存有3条胚胎的骨骼:胚胎(黄色)和胚胎2(橙红色)的头骨清晰可辨,胚胎3(红色)比较破碎。图片来源自[22],标尺长度1厘米。
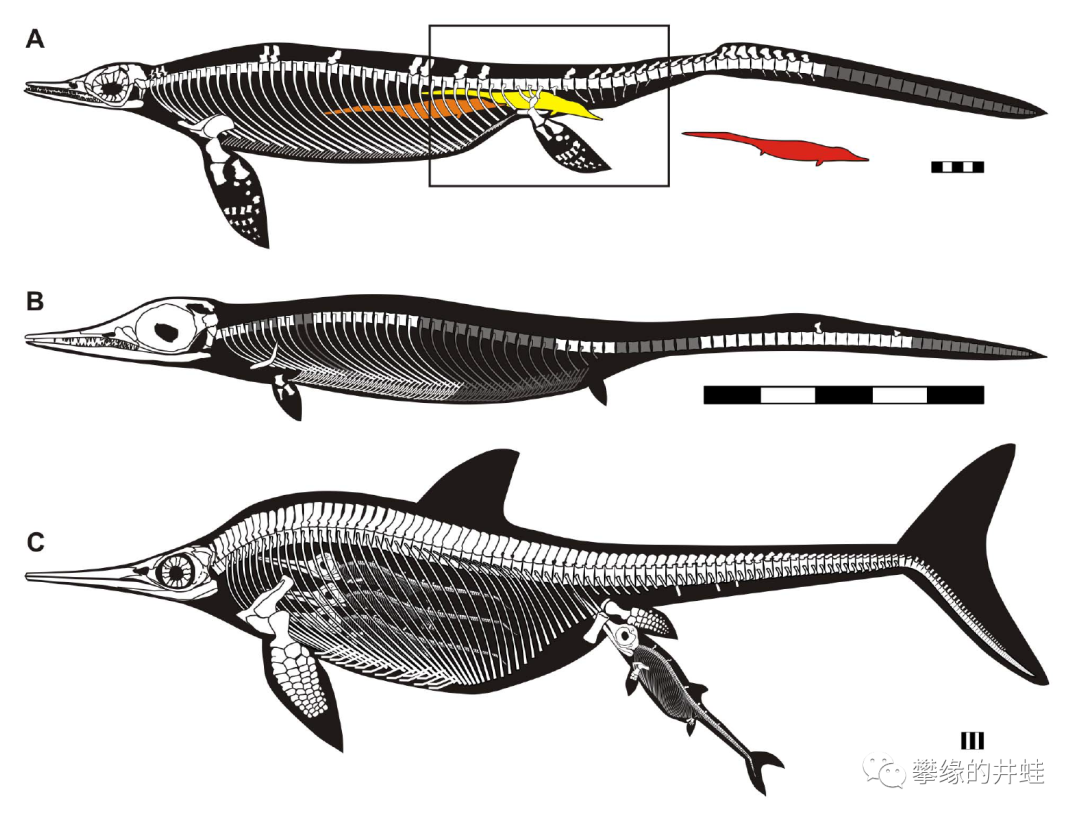
巢湖龙的胚胎头部都朝向母体的尾部,表明它们出生时是头先出来(图A),这很可能导致新生幼体(图B)溺水。演化程度更高的鱼龙,比如6000万年后,中侏罗世的狭翼鱼龙
Stenopterygius
(图C)就已经修补了这个缺陷,它们调转胎位,让幼体的尾巴先出来,减少了溺水危险。图片来源自[22],标尺长度5厘米。
水下分娩的羊膜动物,比如和鱼龙趋同演化的鲸豚类,新生儿都是尾巴先出来。这也算是一种常规操作了。
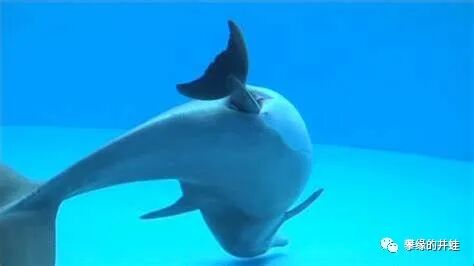
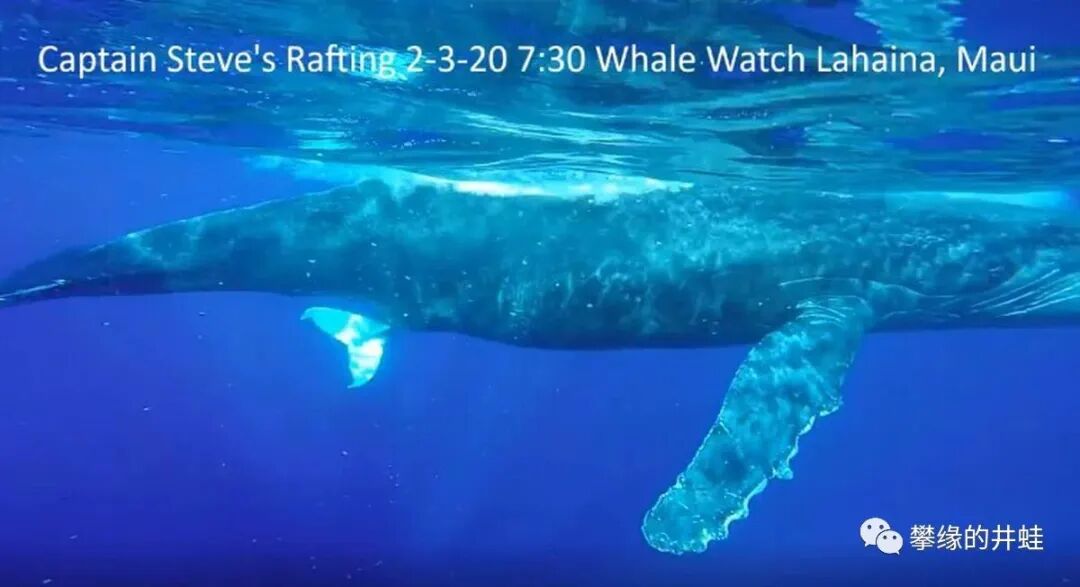
分娩中的海豚和鲸。小baby先出尾巴后出头,然后在母亲的帮助下到海面呼吸生命中的第一口空气。图片来源自网络。
同为海兽的鳍脚类因为在陆地上分娩,完全没有溺水风险,它们的新生儿和其他绝大多数陆地分娩的哺乳动物一样,头先出来,随即在空气中呼吸。
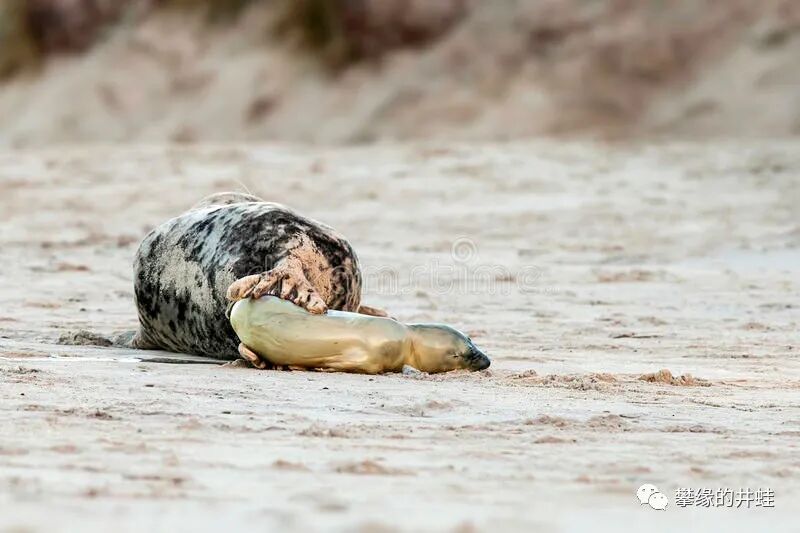
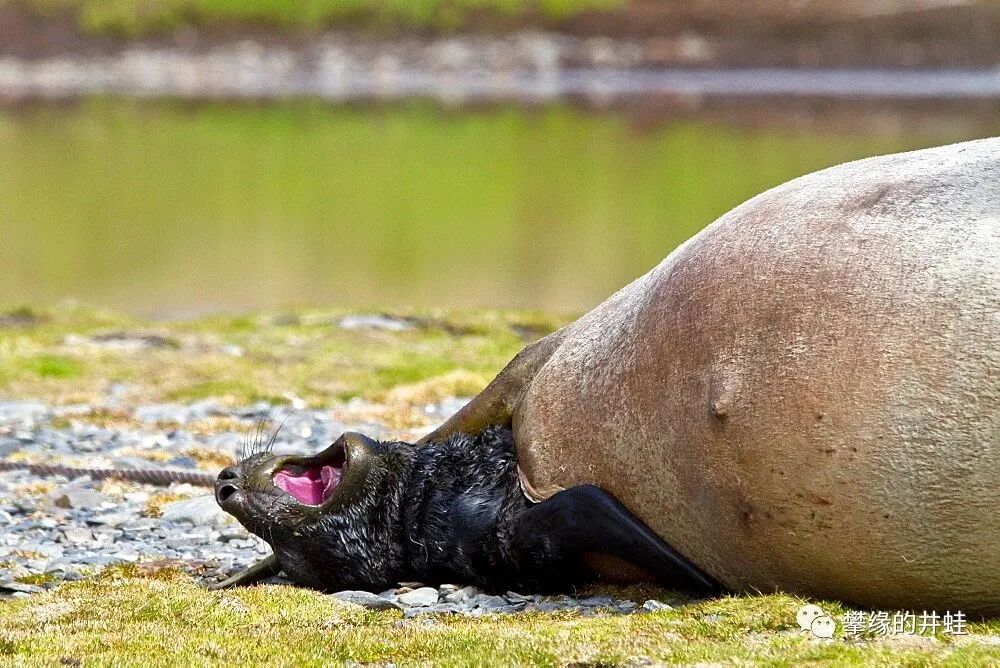
分娩中的灰海豹(上图)和象海豹(下图)。新生的小海豹一露头,就可以自由地呼吸空气。图片来源自网络。
巢湖龙的身体结构不可能是在陆地上生产。如果鱼龙类是在下海之后从产卵转为产下幼体,那它们完全可以直接演化成“尾巴先出来”。所以这很可能指出了另一种可能:即鱼龙的陆生祖先就已经完成了卵生到(卵)胎生的转换,包括湖北鳄目在内的所有水生鱼龙形态类都是直接产下幼体的。所以像巢湖龙这样比较原始的鱼龙依然和陆地分娩的动物一样,绝大多数个体都是先生出幼体的头部,幼体有一定概率因为溺水而夭折。极少数胎位不正,先生出尾巴的雌性鱼龙个体(如果在陆地上这很可能是不利的,容易造成难产)幼体成活率更高,经过自然选择的不断迭代,先产出尾巴的鱼龙逐渐占据优势,成为主流。后世的鲸豚类大概率也经过了同样的过程。
鱼龙类更明显的变化是体形,从巢湖龙、歌津鱼龙这样的“鳗鱼形”,逐渐转变为“海豚形”——我更喜欢称其为“剑鱼形”。这个趋势,后来的海爬乃至海兽也都有不同程度的重现。
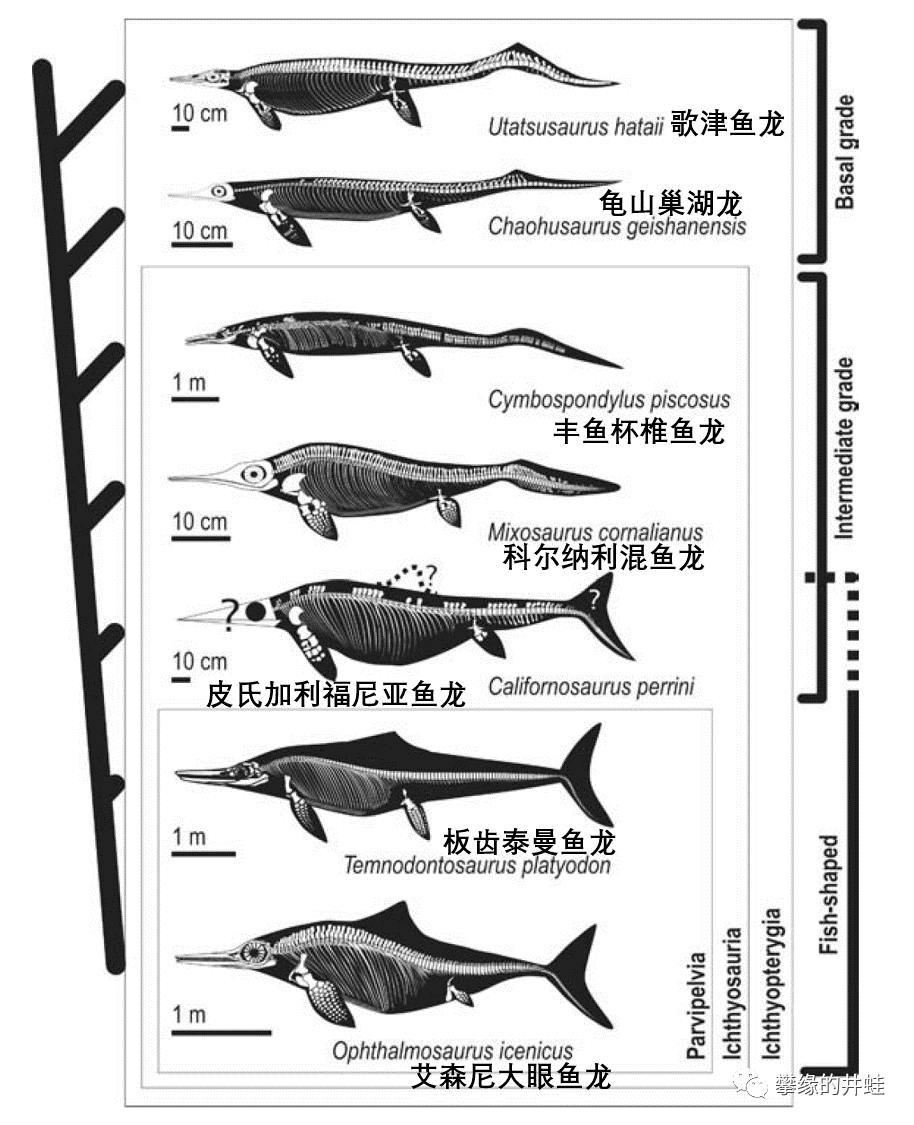
鱼龙体形的变化趋势(自上到下)。歌津鱼龙、巢湖龙和杯椎鱼龙这些早期鱼龙都是 “鳗鱼形”:细长的面条身材,没有背鳍,尾鳍下大上小。后期鱼龙的躯干更加紧凑敦实,“背鳍”出现,尾鳍也从“歪尾形”变为上下对称的“正尾形”,成为经典的“剑鱼形”鱼龙。图片来源自[23]。
混鱼龙科(Mixosa
uridae)生活在中三叠世到晚三叠世早期,它们的身体的介于“鳗鱼形”和“剑鱼形”之间,骨骼特征也混合了早期鱼龙和后期鱼龙的特征。
“混鱼龙”因此得名。
混鱼龙科是中三叠世鱼龙的优势类群,化石遍布欧洲、亚洲和北美,包括两个重要的属:
混鱼龙属
Mixosaurus
和异齿鱼龙属
Phalarodon
。
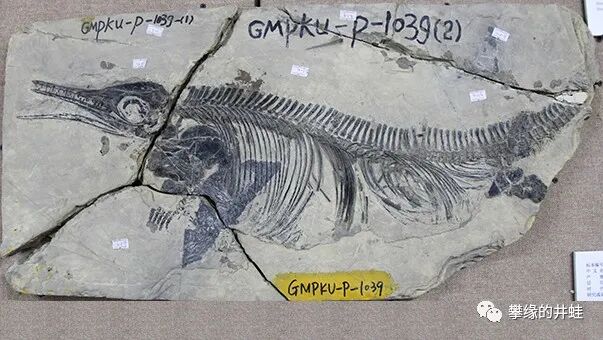
学名:盘县混鱼龙
Mixosaurus panxianensis
化石。产地:贵州省盘州市羊圈村。时代:中三叠世安尼期。层位:关岭组上段。图片来源自[17]。
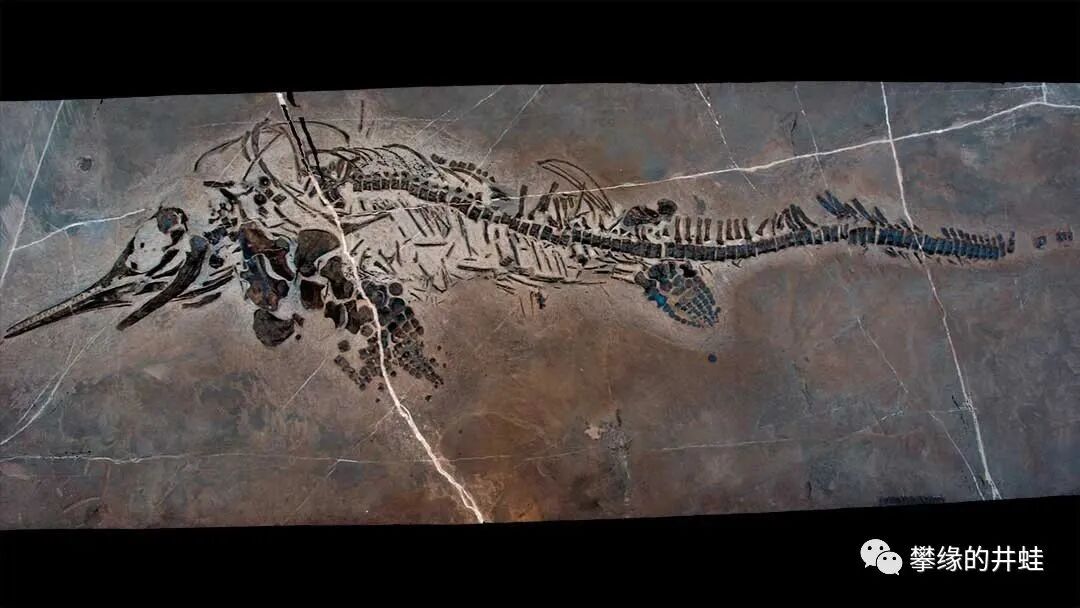
欧洲发现的某种混鱼龙化石。图片来源自[24]。
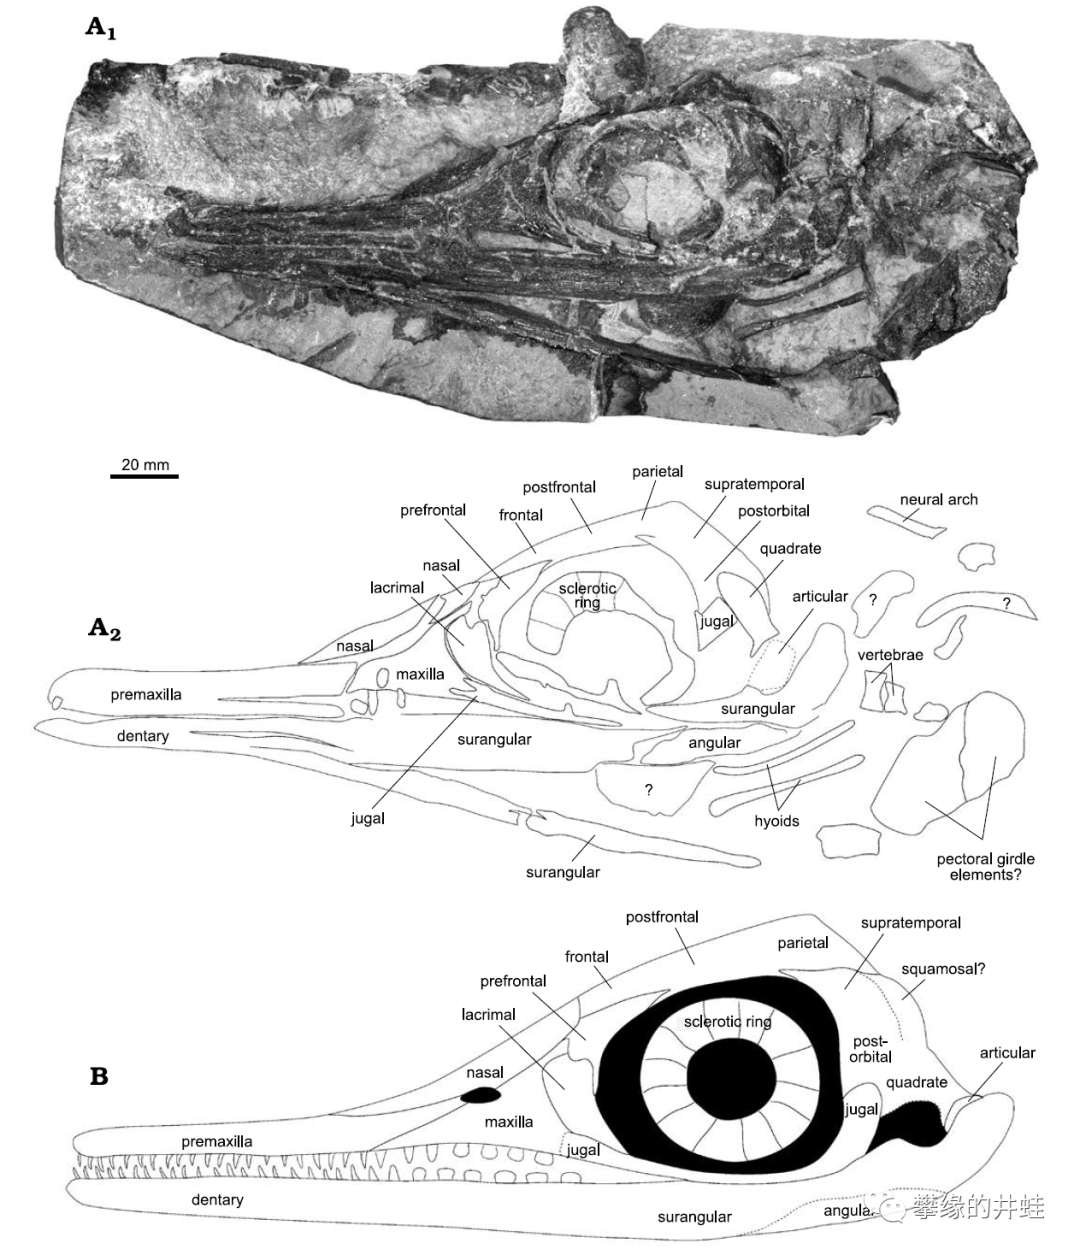
挪威斯瓦尔巴群岛发现的中三叠世弗氏异齿鱼龙
Phalarodon fraasi
头骨化石和复原图。“异齿鱼龙”得名于它们口腔前部和后部的牙齿形态功能有分异。前部牙齿尖细,适合捕捉猎物,后部牙齿钝圆,适合磨碎猎物。这可能用来高效捕食菊石一类的猎物。图片来源自[25]。
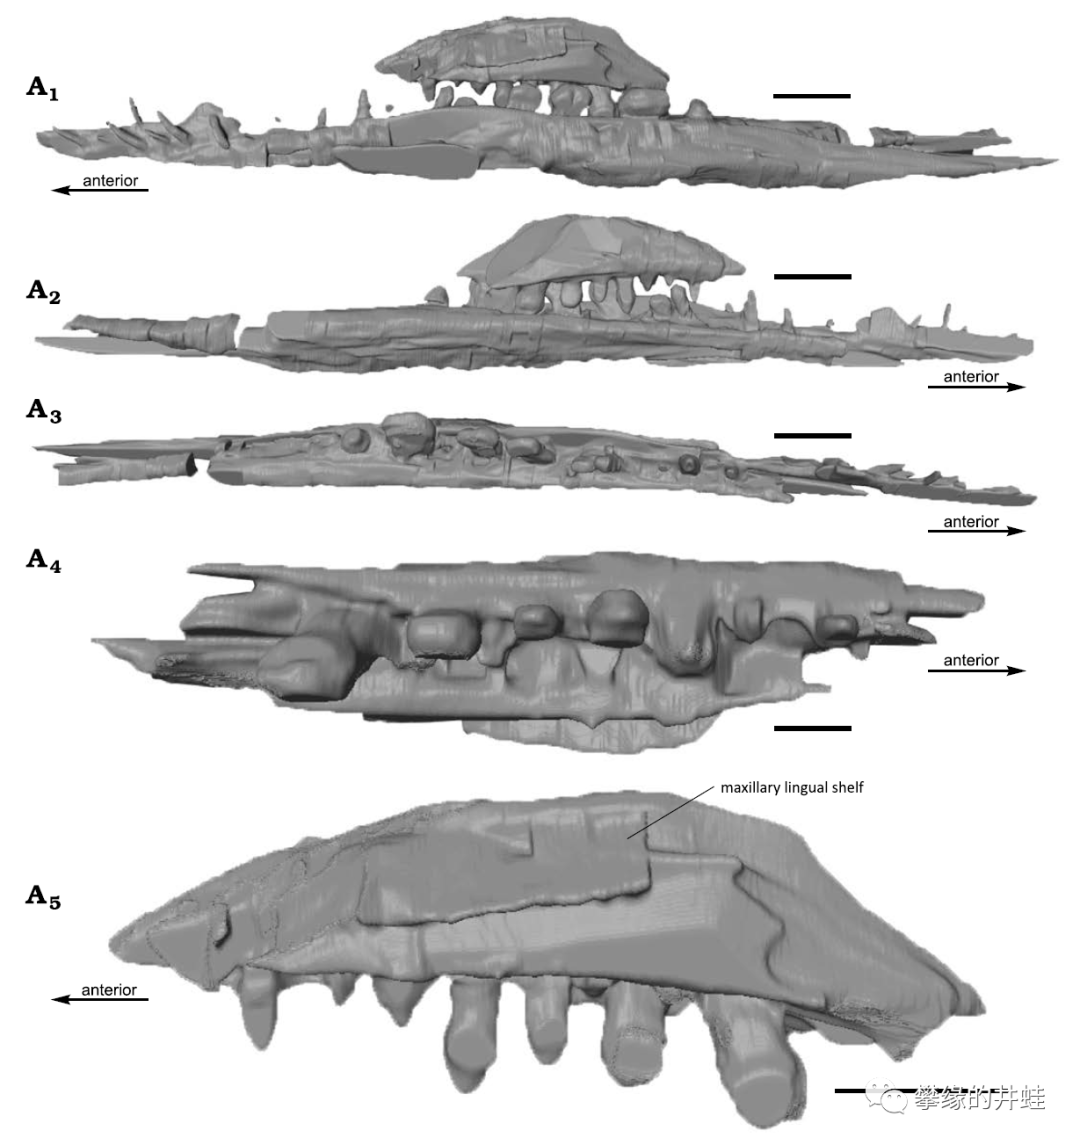
弗氏异齿鱼龙上下颌的3D复原,牙齿形态的差别飞行明显。所以异形齿也不是合弓纲的专利。图片来源自[25],标尺长度1厘米。
顺便提一句:有一类生活在早三叠世末期到中三叠世的海爬
Omphalosaurus
,
学界倾向于认为是一种鱼龙但尚未定论。它的嘴里全都是扁圆的磨盘牙,显然是和楯齿龙一样嗑贝壳的。
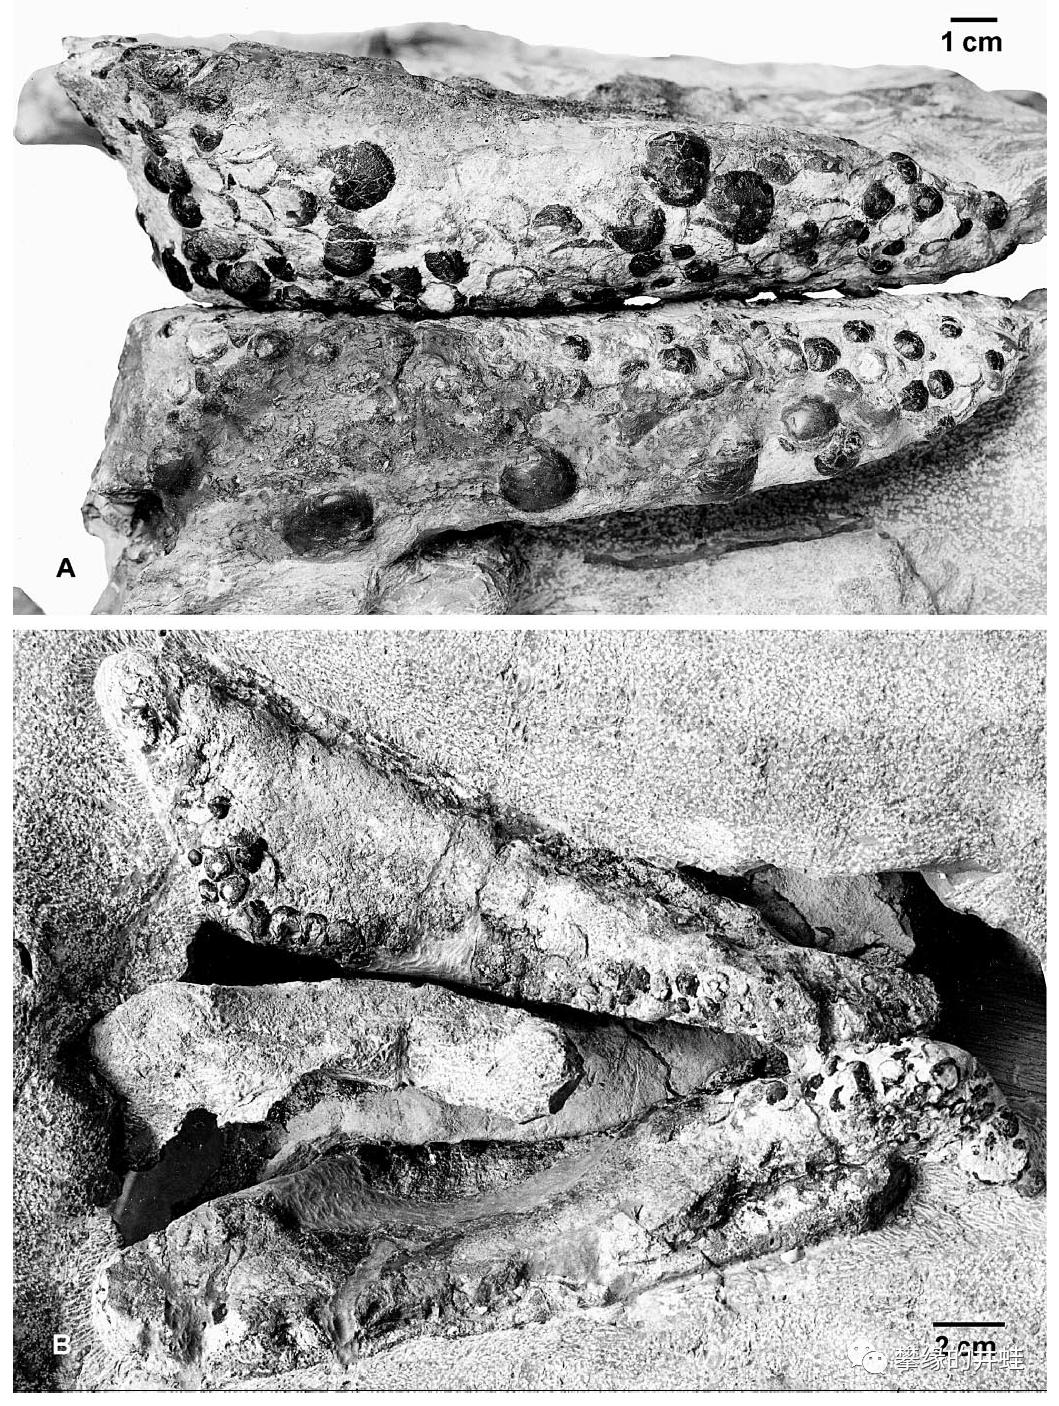
Omphalosaurus
的颌骨和牙齿。产地欧洲Dürrnberg mountain(什么山?)。图片来源自[26] 。
值得一提的是始祖异齿鱼龙
Phalarodon atavus
,曾经被命名为
Contectopalatus atavus
,始祖混鱼龙
Mixosaurus
atavus
和始祖鱼龙
Ichthyosaurus atavus
。因为发现和命名时间早(1851年),属名一直变来变去,但种名总是“始祖”。绝大多数混鱼龙科的鱼龙体长不到两米,但在斯图加特州立自然博物馆有一块巨大的颌骨碎片(SMNS 56315)被鉴定为始祖异齿鱼龙,把它的极限体型提到了5米以上[27]。
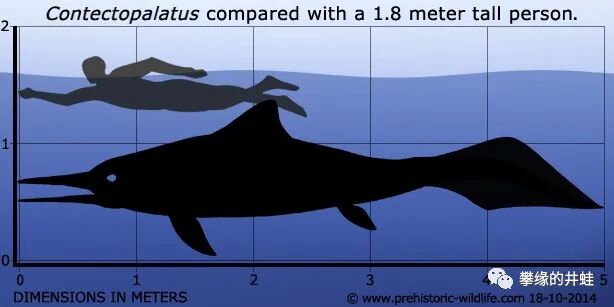
5米长的始祖异齿鱼龙体型,当然图中用的是
Contectopalatus atavus
这个学名。图片来源尖水印。
始祖异齿鱼龙的模式标本产自德国壳灰岩盆地(Muschelkalk Basin),但在我国罗平生物群也发现了这种鱼龙的化石。
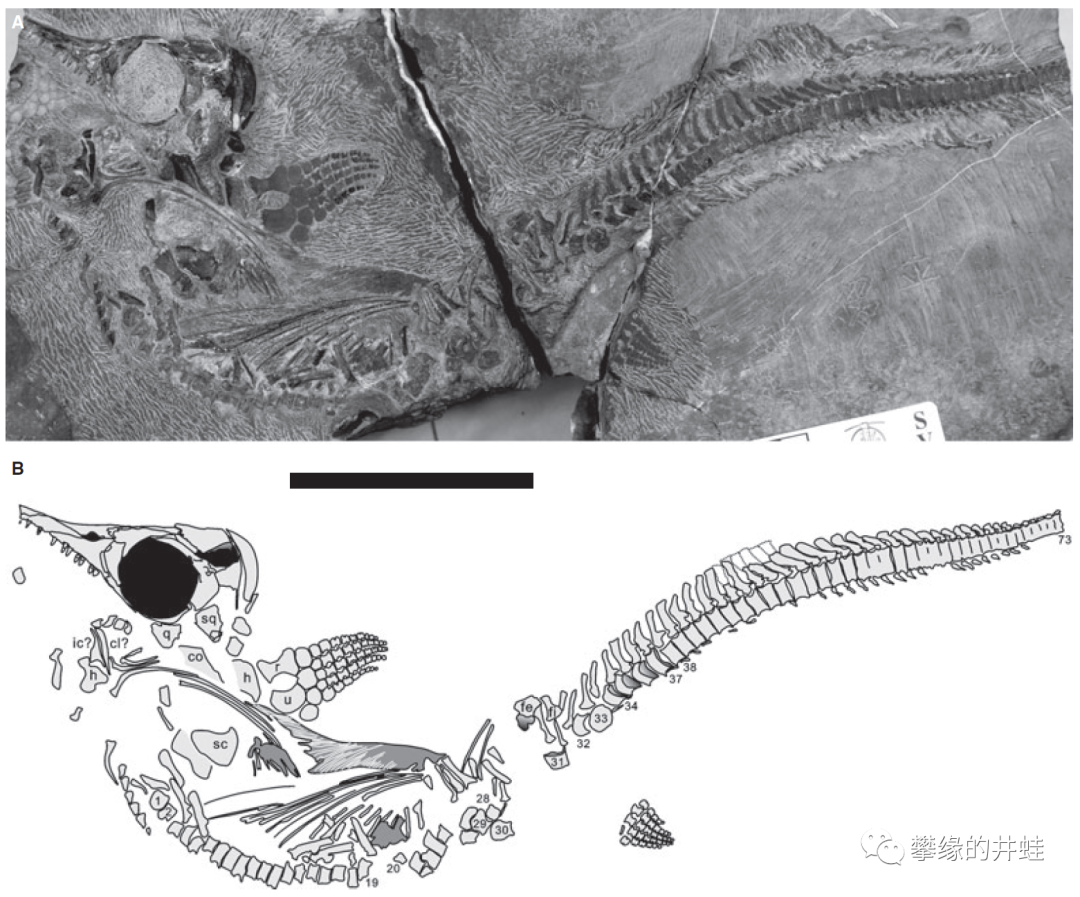
罗平生物群发现的始祖异齿鱼龙化石。显然这还是个小家伙。图片来源自[28],标尺长度10厘米。
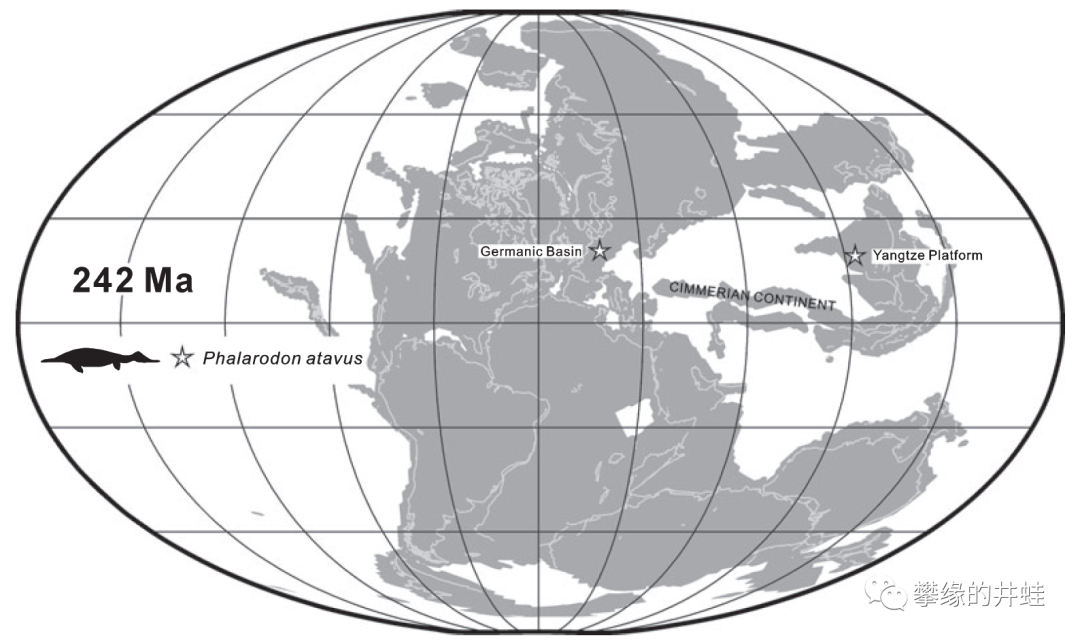
始祖异齿鱼龙的地理分布。整个特提斯海都是它们的势力范围。图片来源自[28]。
想象一下,5米级别的始祖异齿鱼龙基本上已经可以和张氏幻龙、巨型幻龙这样的大型鳍龙分庭抗礼了。不知道它们碰面时,会是怎样的情景。
然而同时期还有体型更大、战斗力更强的鱼龙,即使是张氏幻龙、巨型幻龙恐怕也要退避三舍的存在。
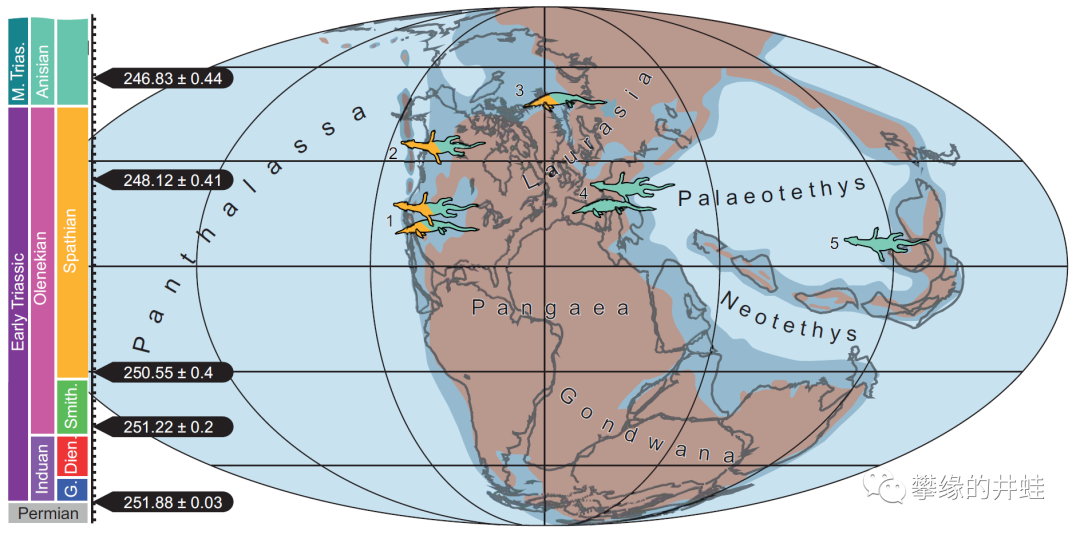
早三叠世奥伦尼克期到中三叠世安尼期海洋顶级掠食者的分布。大型幻龙(幻龙形标志)和大型鱼龙(鱼龙形标志)差不多都是伴生的。
图中数字标示化石产地和物种依次为:
美国内华达州和爱达荷州:
海帝鱼龙
Thalattoarchon
和疑似大型幻龙;
2加拿大不列颠哥伦比亚省:疑似大型幻龙;
3挪威斯瓦尔巴群岛(Svalbard):疑似杯椎鱼龙;
4欧洲中部:布氏杯椎鱼龙
Cymbospondylus
buchseri
和巨型幻龙
Nothosaurus giganteu
;
5中国南方:张氏幻龙
Nothosaurus
zhangi
。
图片来源自[11]。
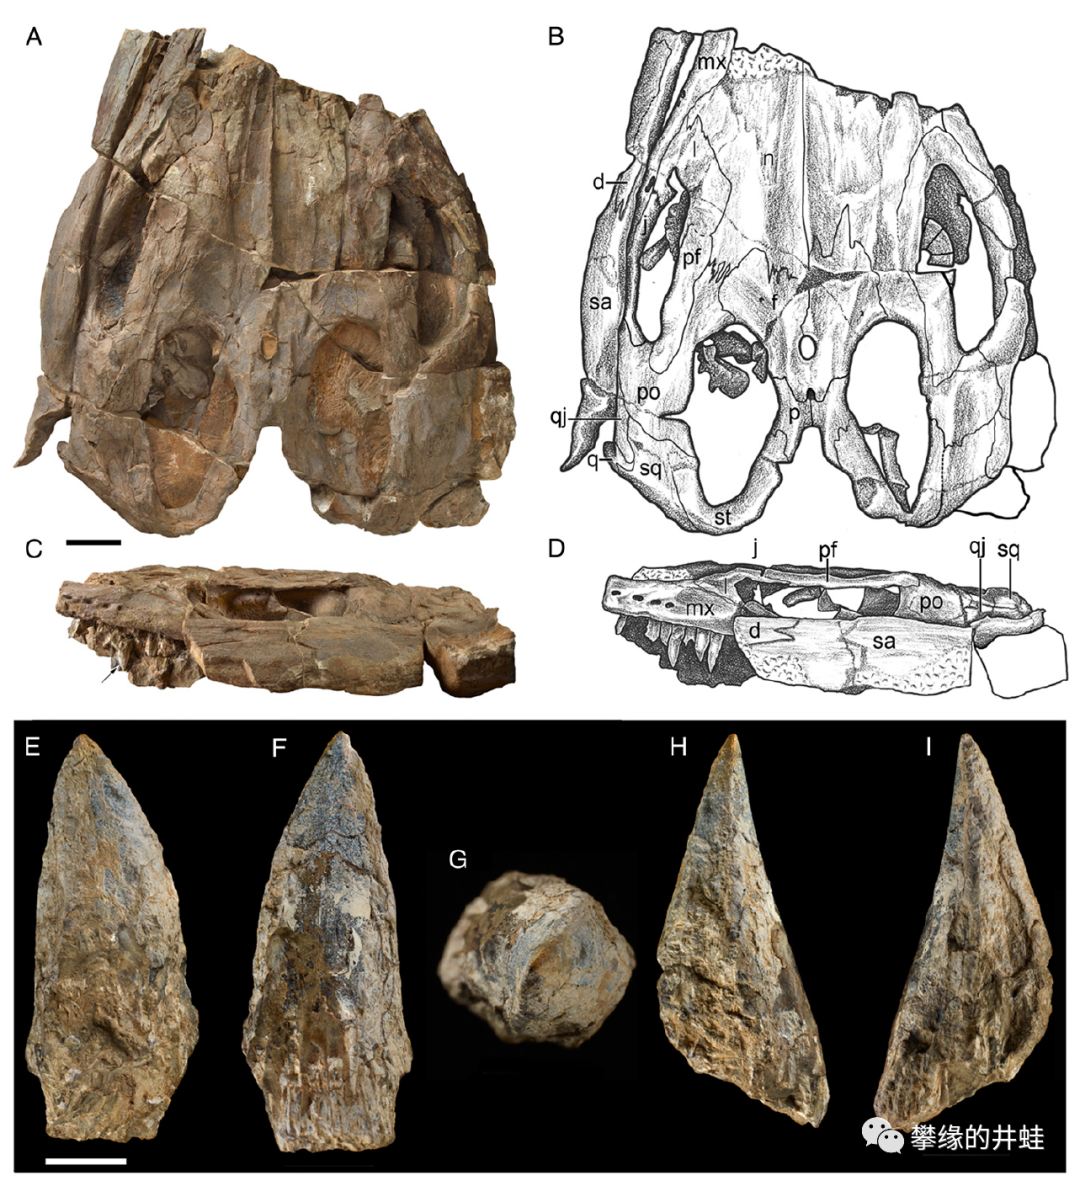
内华达州奥古斯塔山脉(Augusta Mountains)出土的食蜥海帝鱼龙
Thalattoarchon
saurophagis
模式标本(FMNH PR 3032),中三叠世安尼期。图片来源自[29],A-D图标尺长度10厘米,E-I图标尺长度1厘米。
人们对食蜥海帝鱼龙的了解差不多全部来自这半个头骨。但就是这半个头骨,为它赢得了霸气四射的学名:食蜥海帝鱼龙
Thalattoarchon
saurophagis
,直译为“以龙(蜥)为食的海洋统治者”。可见它的发现给古生物学家造成了多大的冲击。
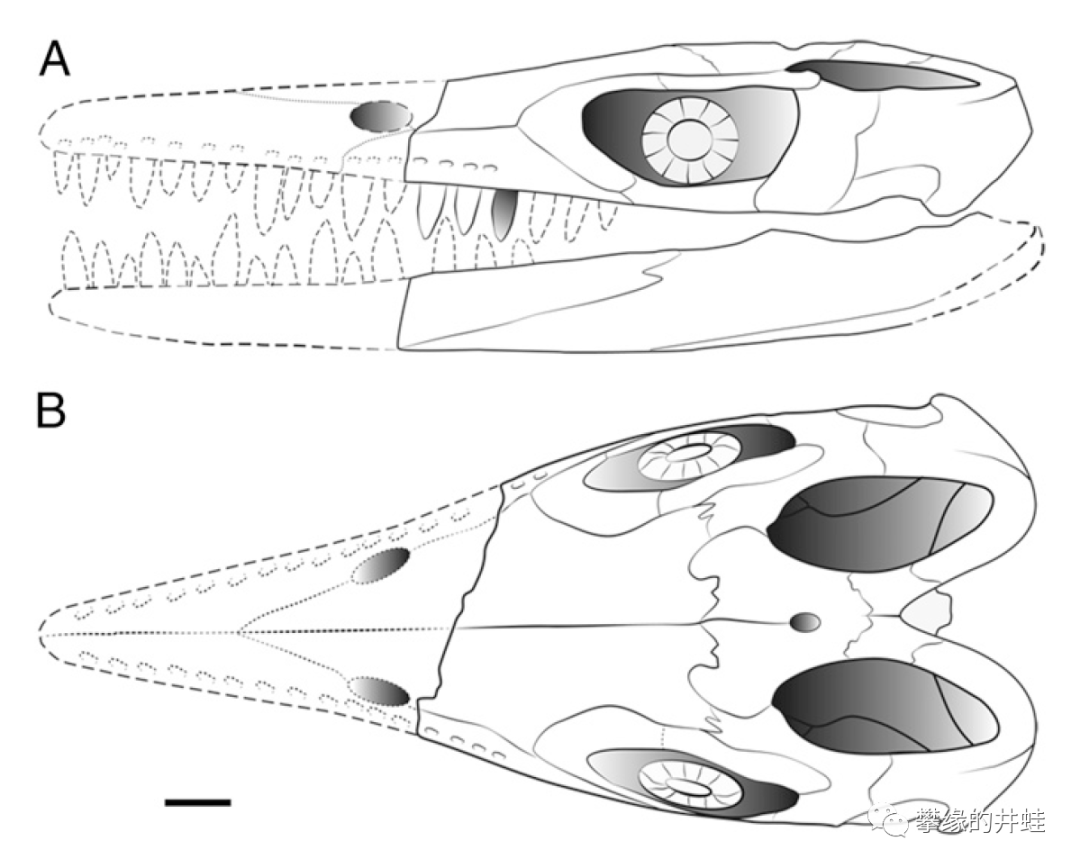
食蜥海帝鱼龙头骨复原图。补全吻部(虚线部分)的话,头骨全长超过米,推测体长至少8.6米,是真正的海洋巨怪。图片来源自[29],标尺长度10厘米。
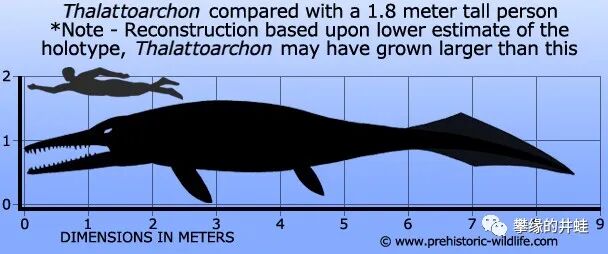
食蜥海帝鱼龙的体型。图片来源见水印。
食蜥海帝鱼龙的头骨非常厚实,附着有强大的咬合肌。保存下来的几枚牙齿全都呈锋利的匕首状,完全不同于食鱼动物的小尖牙。可以肯定,这是一种专门猎捕中大型猎物,擅长撕扯切割大块血肉的海洋杀手。在它的食谱上,各种大小海爬占了大头。
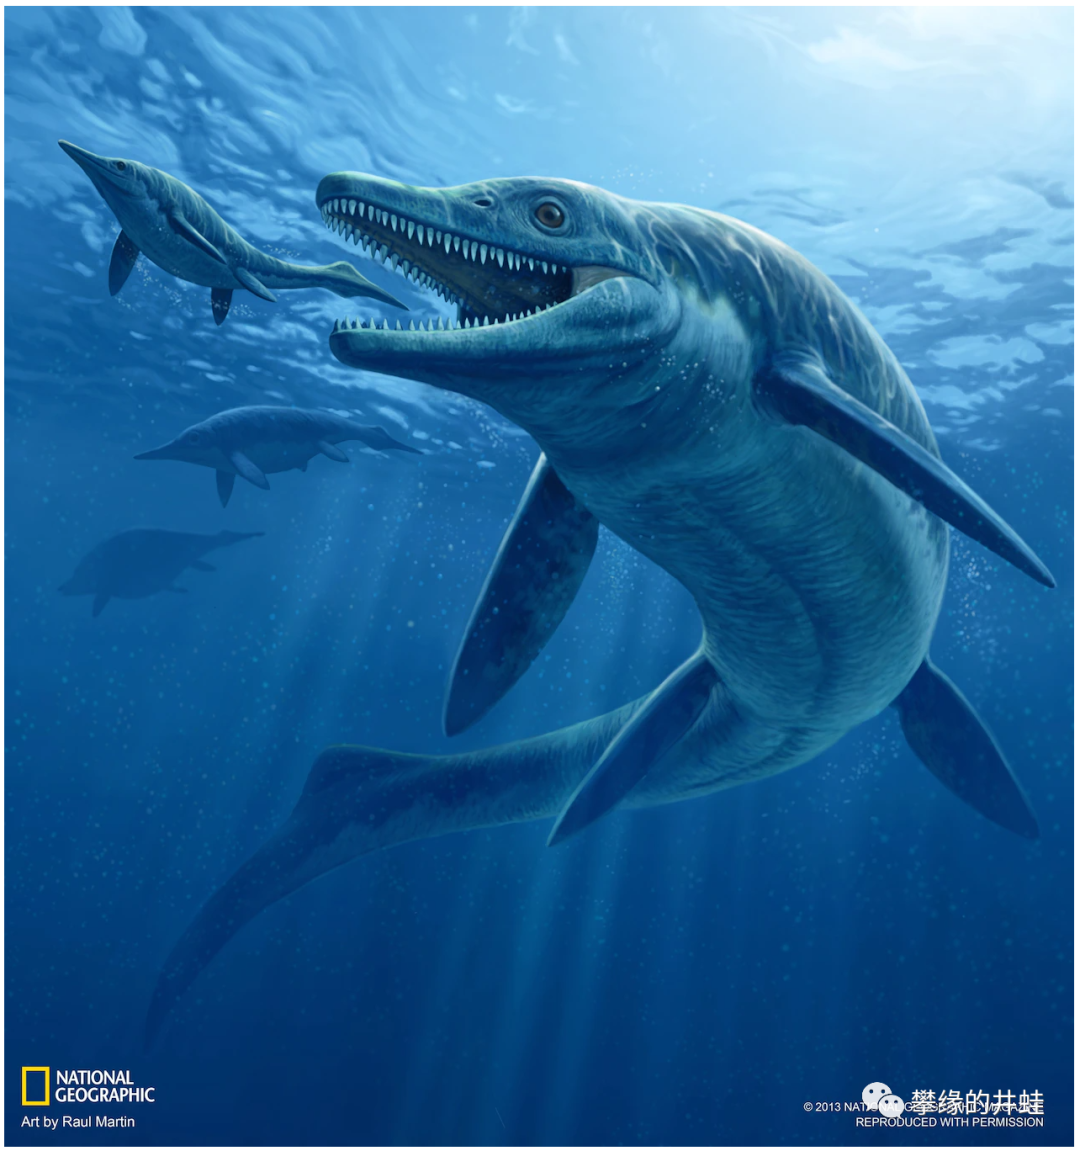
食蜥海帝鱼龙复原图,正在猎捕小型鱼龙。图片来源见水印。
无论体型、力量还是武器,食蜥海帝鱼龙都肯定凌驾于张氏幻龙和巨型幻龙。除此之外,掠食性鱼龙很可能还都有着贪婪凶暴的秉性。在之前的回目(参见第二百七十六回
九龙颂8:等闲入海即乘潮)里,井蛙介绍过三叠纪的另一桩凶案:5米长的贵州鱼龙
Guizhouichthyosaurus
硬是吞食了一条4米长的新浦龙
Xinpusaurus
。
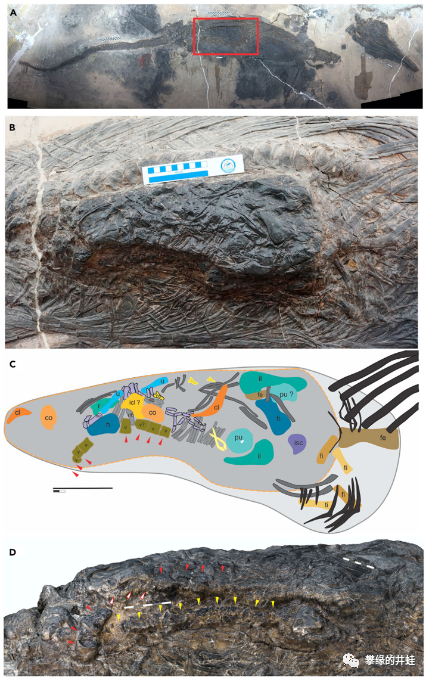
贵州兴义生物群(晚三叠世安尼期)地区出土的贵州鱼龙化石(A图),它的胃里挤满了没有完全消化的新浦龙(海龙类)残骸(B、C图)。图片来源自[30]。
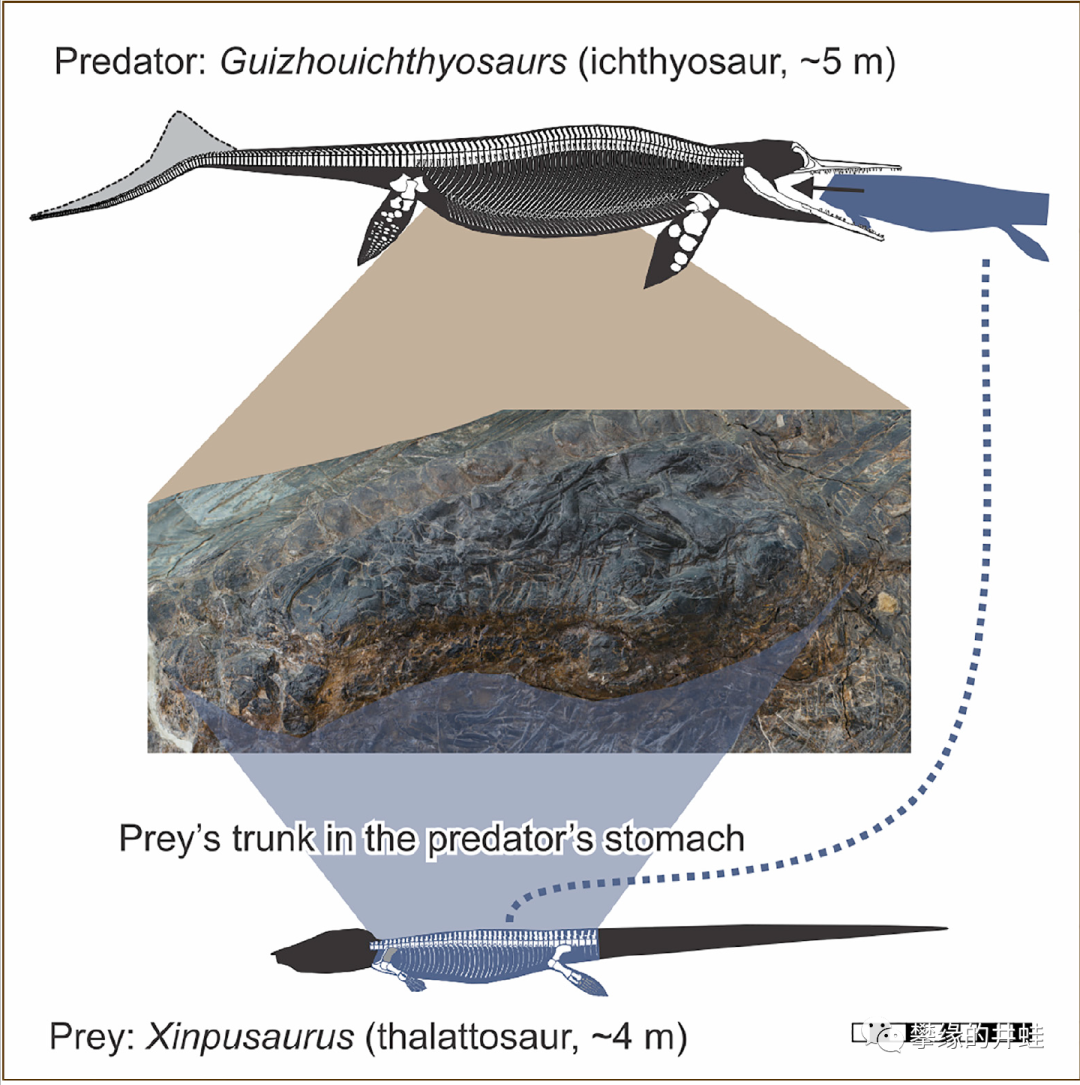
猎手(贵州鱼龙)和猎物(新浦龙)的体型对比。图片来源自[30]。
如果食蜥海帝鱼龙也会攻击比自己略小的猎物的话,那它身边的大型幻龙多半在劫难逃。但食蜥海帝鱼龙也远不是三叠纪鱼龙的战力巅峰。狠角色层出不穷,完全压倒了鳍龙类。来看这张三叠纪鱼龙的演化谱系图:
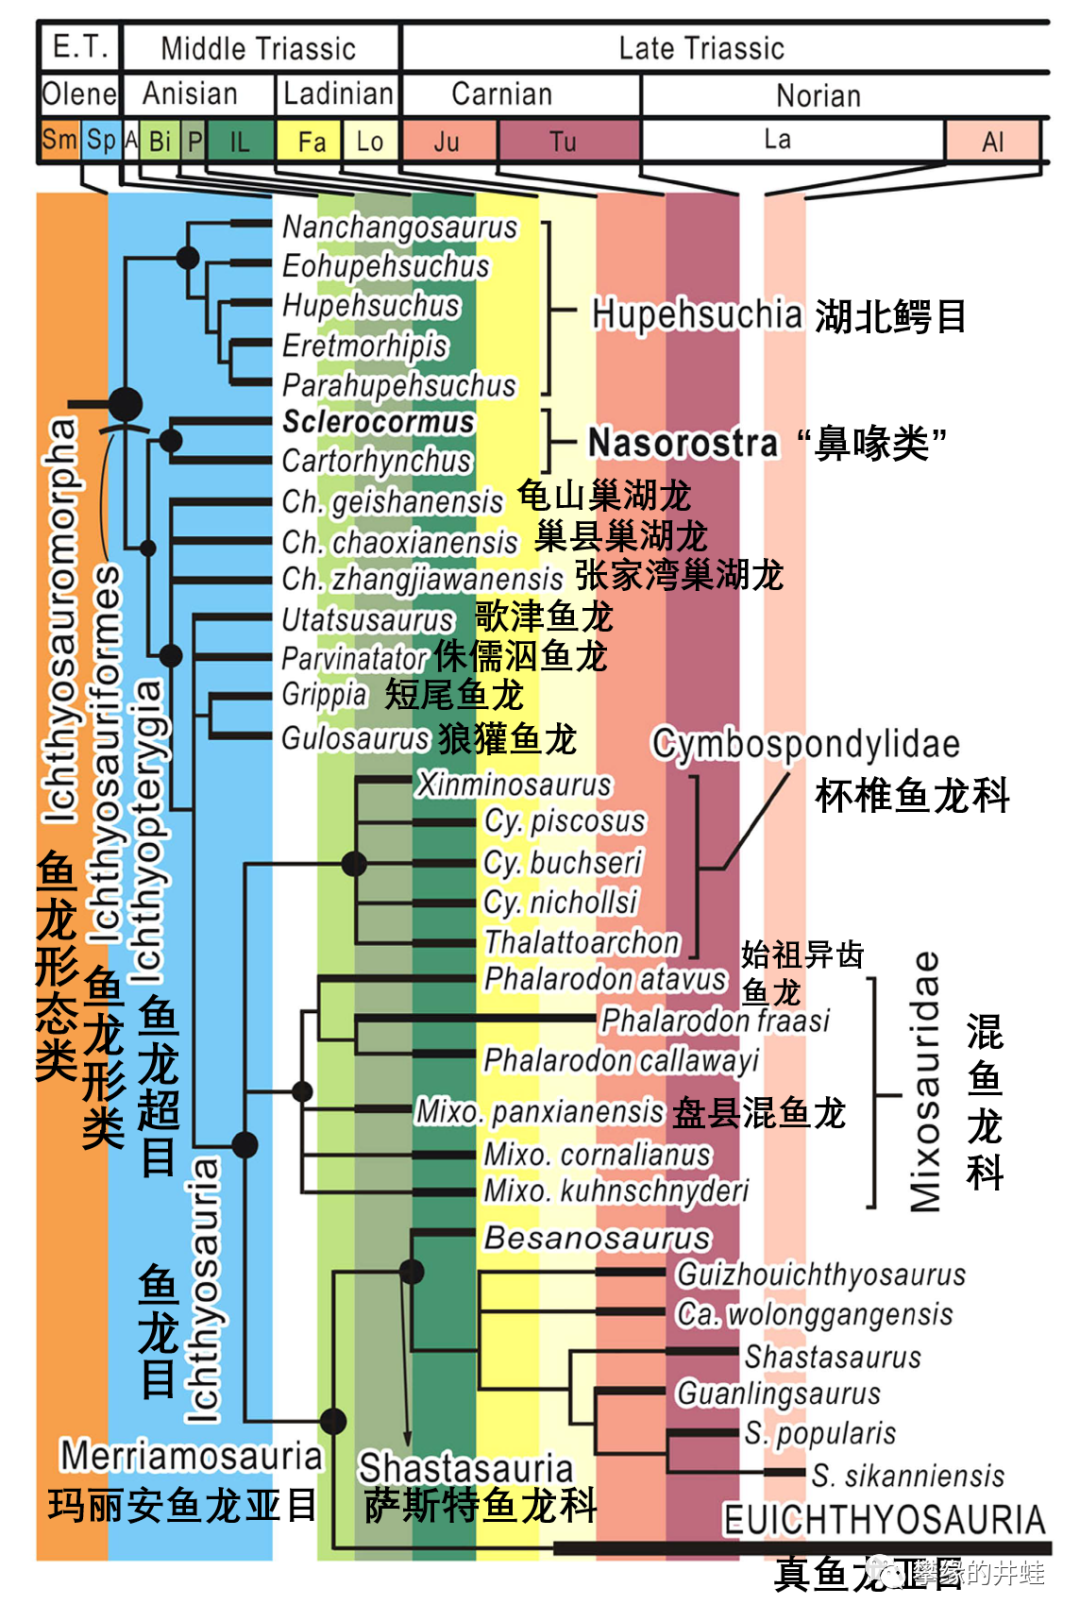
图片来源自[31]。
本回跳过了两个特别重要的鱼龙类群:杯椎鱼龙科(Cymbospondylidae)和萨斯特鱼龙科(Shastasauria)。这两个科包括了绝大多数巨型鱼龙。下回我们就一起看看那些现实中和传说中可以媲美巨鲸的远古海怪。
地球名片
生物分类:动物界-脊索动物门-脊椎动物亚门-羊膜类-蜥形纲-双孔类-龙形类-主龙形态类-泛龟类-鳍龙类
存在时间:早三叠世 至 晚白垩世
现存种类:无
化石种类:未找到完整统计
生活环境:海洋
代表特征:中生代海爬一大类群,早期种类身体蜥蜴形,后期种类身体泛龟形,拥有较长的脖子和桨状的四肢
主要类群:楯齿龙类,肿肋龙类,幻龙类,纯信龙类
参考文献
[1] Qiling Liu, Tinglu Yang, Long Cheng, et
al., An injured pachypleurosaur (Diapsida: Sauropterygia) from the Middle
Triassic Luoping Biota indicating predation pressure in the Mesozoic. Scientific
Reports, : 288, 202, doi: 0.038/s4598-02-0309-z
[2] Qiang Li, Jun Liu, An Early
Triassic sauropterygian and associated fauna from South China provide insights
into Triassic ecosystem health. COMMUNICATIONS BIOLOGY, 3 :63, 2020, doi: 0.038/s42003-020-0778-7
[3] Guang
‑
Hui Xu, Yi Ren, Li
‑
Jun Zhao, et al., A
long
‑
tailed marine reptile from China provides new insights into the
Middle Triassic pachypleurosaur radiation. Scientific Reports, 2:7396, 2022,
doi: 0.038/s4598-022-309-2
[4] https://sketchfab.com/3d-models/uw5485-corosaurus-alcovensis-skeleton-3ddd268dca944990b5f87f9d5bbcde
[5] A. G. Sennikov, Peculiarities of
the Structure and Locomotor Function of the Tail in Sauropterygia. ISSN 062-3590,
Biology Bulletin, 209, Vol. 46, No. 7, pp. 75–762. .
Pleiades Publishing, Inc., 209. Russian Text . The Author(s), 208, published in
Zoologicheskii Zhurnal, 208, Vol. 97, No. 8, pp. 04–054
[6] https://www.muschelkalkmuseum.org/
[7] Cheng Ji, Da-Yong Jiang, Olivier
Rieppel, et al., A new specimen of Nothosaurus youngi from the Middle Triassic
of Guizhou, China. Journal of Vertebrate Paleontology, 34: 2, 465-470, 204,
DOI: 0.080/02724634.203.808204
[8] Shang Q H, Li C, Wang W, Nothosaurus
luopingensis sp. nov. (Sauropterygia) from the Anisian, Middle Triassic of
Luoping, Yunnan Province, China. Vertebrata PalAsiatica, 60(4): 249–270, 2022, DOI:
0.965/j.cnki.2096-9899.220524
[9] Jun Liu, Shi-xue Hu, Olivier Rieppel, et
al., A gigantic nothosaur (Reptilia: Sauropterygia) from the Middle Triassic of
SW China and its implication for the Triassic biotic recovery. SCIENTIFIC REPORTS,
4 : 742, 204, DOI: 0.038/srep0742
[10]
文芠
,
张启跃
,
刘俊
, et al., 中三叠世安尼期罗平生物群海生爬行类研究新进展. 地球学报, Vol. 4, pp. 385-393, 205
[11] Scheyer, T.M., Neuman, A.G.,
Brinkman, D.B., A large marine eosauropterygian reptile with affinities to
nothosauroid diapsids from the Early Triassic of British Columbia, Canada. Acta
Palaeontologica Polonica 64 (X): xxx–xxx, 209, doi: org/0.4202/app.00599.209
[12] Wen-Bin Lin, Da-Yong Jiang,
Olivier Rieppel, et al., A new specimen of Lariosaurus xingyiensis (Reptilia,
Sauropterygia) from the Ladinian (Middle Triassic) Zhuganpo Member, Falang
Formation, Guizhou, China, Journal of Vertebrate Paleontology, 207, DOI: 0.080/02724634.207.278703
[13] https://heissinger.de/saurier-ausstellung/
[14] Qiyue Zhang, Wen Wen, Shixue
Hu, et al., Nothosaur foraging tracks from the Middle Triassic of southwestern
China. NATURE COMMUNICATIONS, 5: 3973, DOI: 0.038/ncomms4973
[15] TAMAKI SATO, LI-JUN ZHAO,
XIAO-CHUN WU, A NEW SPECIMEN OF THE TRIASSIC PISTOSAUROID YUNGUISAURUS, WITH
IMPLICATIONS FOR THE ORIGIN OF PLESIOSAURIA (REPTILIA, SAUROPTERYGIA). Palaeontology,
pp. –22, 203, DOI: 0.257/342-844-4.3.79
[16] YEN-NIEN CHENG, TAMAKI SATO, XIAO-CHUN
WU, et al., FIRST COMPLETE PISTOSAUROID FROM THE TRIASSIC OF CHINA. Journal of
Vertebrate Paleontology, 26(2): 50–504, 2006
[17] http://geomuseum.pku.edu.cn/
[18] Fabio Marco Dalla Vecchia, COMMENTS ON THE
SKELETAL ANATOMY OF THE TRIASSIC REPTILE BOBOSAURUS FOROJULIENSIS
(SAUROPTERYGIA, PISTOSAUROIDEA). GORTANIA. Geologia, Paleontologia,
Paletnologia, 38, 206
[19] EMMA R. SCHACHNER , RANDALL B.
IRMIS, ADAM K. HUTTENLOCKER, et al., Osteology of the Late Triassic Bipedal
Archosaur Poposaurus gracilis (Archosauria: Pseudosuchia) from Western North
America. THE ANATOMICAL RECORD, 209, DOI: 0.002/ar.24298
[20] Huang J-d, Motani R, Jiang D-y,
et al., The new ichthyosauriform Chaohusaurus brevifemoralis (Reptilia,
Ichthyosauromorpha) from Majiashan, Chaohu, Anhui Province, China. PeerJ 7: e756,
DOI: 0.777/peerj.756
[21] https://www.mkanyo.jp/onsendayori/206/0/utatsusaurus.html
[22] Motani R, Jiang D-y, Tintori A,
et al., Terrestrial Origin of Viviparity in Mesozoic Marine Reptiles Indicated
by Early Triassic Embryonic Fossils. PLoS ONE, 9(2): e88640, 204, doi: 0.37/journal.pone.0088640
[23] Ryosuke Motani, EVOLUTION OF FISH-SHAPED
REPTILES
(REPTILIA: ICHTHYOPTERYGIA) IN THEIR
PHYSICAL ENVIRONMENTS AND CONSTRAINTS. Annu. Rev. Earth Planet. Sci., 33: 395–420,
2005, doi: 0.46/annurev.earth.33.092203.22707
[24] https://mufomi.org/eu/mufomi-euskara/
[25] Roberts, A.J., Engelschiøn,
V.S., Hurum, J.H., First three-dimensional skull of the Middle Triassic
mixosaurid ichthyosaur Phalarodon fraasi from Svalbard, Norway. Acta
Palaeontologica Polonica 67 (): 5–62, 2022, doi: 0.4202/app.0095.202
[26] P. MARTIN SANDER, CHRISTIANE
FABER, THE TRIASSIC MARINE REPTILE OMPHALOSAURUS: OSTEOLOGY, JAW ANATOMY, AND EVIDENCE
FOR ICHTHYOSAURIAN AFFINITIES. Journal of Vertebrate Paleontology, 23(4): 799–86,
2003
[27] MICHAEL W. MAISCH, ANDREAS T. MATZKE, THE
CRANIAL OSTEOLOGY OF THE MIDDLE TRIASSIC ICHTHYOSAUR CONTECTOPALATUS FROM
GERMANY. PALAEONTOLOGY, VOLUME 44
[28] JUN LIU, RYOSUKE MOTANI,
DA-YONG JIANG, et al., THE FIRST SPECIMEN OF THE MIDDLE TRIASSIC PHALARODON
ATAVUS (ICHTHYOSAURIA: MIXOSAURIDAE) FROM SOUTH CHINA, SHOWING POSTCRANIAL
ANATOMY AND PERI-TETHYAN DISTRIBUTION. Palaeontology, Vol. 56, Part 4, pp.
849–866, 203, doi: 0./pala.202
[29] Nadia B. Fröbisch, Jörg
Fröbisch, P. Martin Sander, et tal., Macropredatory ichthyosaur from the Middle
Triassic and the origin of modern trophic networks. PNAS, vol. 0, no. 4, 393–397,203, doi: 0.073/pnas.267500
[30] Da-Yong Jiang, Ryosuke Motani, Andrea
Tintori, et al., Evidence Supporting Predation of 4-m Marine Reptile by
Triassic Megapredator. iScience, 23, 0347, 2020, doi: 0.06/j.isci.2020.0347
[31] Jiang, D.-Y.et al. A large
aberrant stem ichthyosauriform indicating early rise and demise of
ichthyosauromorphs in the wake of the end-Permian extinction. Sci. Rep. 6,
26232, 206, doi: 0.038/srep26232
 攀缘的井蛙约 19 分钟